蛋白酶是一类可将蛋白质降解为短肽和氨基酸的水解酶[1],广泛存在于植物、动物和微生物中,相比其他来源,微生物来源的蛋白酶具有易于大规模生产、产酶周期短、生产成本低等优势[2]。尽管微生物具有丰富的代谢多样性和遗传可塑性,但天然菌株的产酶能力通常有限,难以直接满足工业化生产对经济性和效率的严格要求。通过菌种选育、基因工程等手段可定向获得产酶活力更高、酶学性质更优(如耐碱性、耐热性、耐有机溶剂)的菌株[3-5],以适应极端工业环境的应用需求[6-7]。因此,从特定环境或体系中发掘具有优异特性或能产高活性蛋白酶菌株,对拓展微生物功能多样性认知、挖掘微生物基因资源、丰富工业酶制剂资源库具有重要意义。
酒源环境,包括酒曲、酒醅或酒渣等,是蕴含丰富微生物资源的特殊生态位。在传统酿酒过程中,微生物群落通过协同作用代谢产生多种酶系,这些酶系对酿酒原料的降解及酒体风味物质的形成具有至关重要的作用[8]。酒源环境中的微生物经过长期自然驯化和人工选择,通常蕴含着能够高效分解蛋白质且能适应特定酿造微环境(如较高乙醇体积分数、偏酸条件、微氧环境)的特色菌株[9-12]。从该特定环境中筛选产蛋白酶菌株,不仅更易分离得到产酶活力高、环境耐受性强的菌种,该类菌株所产蛋白酶通常更适配酿造体系及高有机溶剂环境下的催化反应,具备独特功能优势,拥有良好的菌种挖掘潜力和工业化应用前景。国内外学者已从酒源环境中分离并鉴定出多种产蛋白酶菌株,近年来主要集中于霉菌[13]和细菌[14]等类群。然而,目前关于这些菌株的研究多集中于常规理想条件下的筛选与基础酶学性质表征,对真实酿造中后期普遍存在的乙醇胁迫如何影响菌株生长动态和产酶时序的认知仍显不足。因此,深入探究酒源菌株在乙醇胁迫下的生长响应与产酶特性具有重要意义。
本研究从小曲白酒发酵醪液中分离筛选高产蛋白酶菌株,通过形态学观察、生理生化实验及分子生物学技术对菌株进行鉴定,通过单因素试验及响应面试验对发酵条件进行优化,探究菌株在乙醇胁迫条件下的生长动态及产蛋白酶特性,并分析其所产蛋白酶的酶学性质,旨在评估该菌株及蛋白酶在高有机溶剂环境下的应用潜力,为新型蛋白酶制剂的开发提供理论依据与菌种资源。
1 材料与方法
1.1 材料与试剂
小曲白酒发酵醪液为本实验室保藏。
脱脂奶粉(分析纯) 生工生物工程(上海)股份有限公司;福林酚(分析纯) 上海麦克林生化科技有限公司;干酪素、细菌基因组DNA提取试剂盒、苯甲基磺酰氟(phenylmethanesulfonyl fluoride,PMSF)、乙二胺四乙酸(ethylenediaminetetraacetic acid,EDTA)(均为分析纯) 北京索莱宝科技有限公司;蔗糖、果糖、麦芽糖、葡萄糖、NaOH、NaCl、Na2CO3(均为分析纯) 天津市大茂化学试剂厂。
LB培养基:氯化钠5.0 g/L、胰蛋白胨10.0 g/L、酵母浸出粉5.0 g/L,加入蒸馏水1 L,pH值自然;脱脂奶粉琼脂培养基:琼脂粉15.0 g/L、脱脂奶粉30.0 g/L,pH 7.0。以上培养基均于121 ℃灭菌20 min。
1.2 仪器与设备
SW-CJ-1FD超净工作台 苏州安泰空气技术有限公司;Allegra 64R高速冷冻离心机 美国贝克曼库尔特有限公司;722紫外分光光度计 上海菁华科技仪器有限公司;FlexCycler2聚合酶链式反应(polymerase chain reaction,PCR)扩增仪 德国耶拿分析仪器股份公司;PH100数码生物显微镜 江西凤凰光学仪器有限公司;721BR 16103凝胶成像系统 美国Bio-Rad公司。
1.3 方法
1.3.1 产蛋白酶菌株的分离及初筛
取白酒发酵醪液进行梯度稀释,从摇匀的母液中吸取1 mL菌液转移至新管中,利用无菌生理盐水稀释成不同梯度的稀释液,分别取10-2、10-3、10-4、10-5、10-6梯度稀释菌液0.1 mL涂布于LB平板培养基,倒置在恒温培养箱中37 ℃培养24~48 h。挑取单菌落在LB表面进行四区划线进行纯化,随后将培养基倒置放于恒温培养箱中,37 ℃培养24 h,重复2~3次获得纯单菌落。
采用牛津杯-琼脂扩散法筛选产蛋白酶菌株。向无菌培养皿中倒入厚度约2 mm的脱脂奶粉琼脂培养基,冷却至凝固后,放置牛津杯,随后覆盖厚度约2 mm的接种层脱脂奶粉琼脂培养基,待接种层完全凝固后,无菌环境中移去牛津杯,形成规则的加样孔。将-20 ℃保存的菌株接种于LB液体培养基,37 ℃、160 r/min培养活化12 h。取10 µL经梯度稀释104的待测菌液,接种于加样孔中,37 ℃培养48 h。观察并测定蛋白水解圈直 径(D)和菌株生长直径(d),通过计算D/d值评价菌株所产蛋白酶活力,D/d值越大,表明菌株的蛋白酶活力 越强[15]。
1.3.2 产蛋白酶菌株的复筛
将初筛菌株活化后接种到LB培养基,37 ℃培养24 h。将发酵液于10 000 r/min、4 ℃离心10 min,吸取上清液制备成粗酶液[16]。参照于瑶[17]的方法并稍作修改,采用福林酚法测定蛋白酶活力。以L-酪氨酸质量浓度(x)为横坐标、OD680 nm值(y)为纵坐标,绘制L-酪氨酸标准曲线并建立回归方程。取1 mL粗酶液,40 ℃预热2 min,加入1 mL预热的1 g/100 mL酪蛋白溶液,摇匀,40 ℃水浴反应10 min,加入2 mL 0.4 mol/L三氯乙酸溶液终止反应,过滤后取上清液。将1 mL上清液、5 mL 0.4 mol/L Na2CO3溶液和1 mL稀释3倍的福林酚试剂依次加入试管中,40 ℃水浴20 min,冷却至室温,测定OD680 nm值。空白对照组先加入2 mL三氯乙酸后再加入1 mL酪蛋白溶液,其余步骤与样品管一致。在上述反应条件下,以每分钟 催化水解酪蛋白生成1 μg酪氨酸所需的酶量为1个酶活力单位(U)。蛋白酶活力按下式计算:
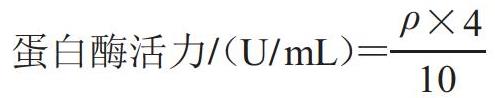
式中:ρ为由标准曲线计算得到的反应液中酪氨酸质量浓度/(μg/mL)。
1.3.3 菌株的鉴定
形态学观察:将分离纯化的菌株接种于LB培养基培养。参照《常见细菌系统鉴定手册》[18]和《伯杰细菌鉴定手册》[19]的方法进行鉴定。
生理生化实验:使用生化鉴定管开展菌株葡萄糖、蔗糖、麦芽糖、果糖、乳糖、海藻糖和木糖醇发酵试验。
分子生物学鉴定:采用细菌基因组DNA提取试剂盒提取菌株的基因组DNA,并利用16S rRNA基因通用引物27F(5′-AGAGTTTGATCMTGGCTCAG-3′)和1492R(5′-TACGGYTACCTTGTTACGACTT-3′)进行PCR扩增。PCR扩增体系(20 μL):DNA模板(10 ng/µL)1 μL、引物27F与1492R(10 µmol/L)各1 µL、2×Phanta Flash Master Mix聚合酶10 μL、无菌水7 μL。PCR扩增程序:98 ℃预变性30 s;98 ℃变性10 s,53 ℃退火5 s,72 ℃延伸7 s,30个循环;72 ℃延伸1 min。扩增产物送至生工生物工程(上海)有限公司进行测序,测序结果在NCBI数据库中进行比对分析,利用MEGA 11.0软件构建系统发育树。
1.3.4 发酵条件优化单因素试验
分别考察发酵时间(8、12、24、36、48 h)、初始pH值(4、5、6、7、8、9)、发酵温度(28、31、34、37、40 ℃)对菌株所产蛋白酶活力的影响。
1.3.5 乙醇胁迫下菌株生长曲线与产酶曲线绘制
按上述最优培养条件,在不同乙醇体积分数(0%、2%、4%、6%、8%)的LB培养基中培养菌株,每隔4 h检测发酵液的OD600 nm值与蛋白酶活力,绘制菌株生长曲线与产酶曲线。
1.3.6 培养基组成优化
1.3.6.1 单因素试验
分别考察碳源种类(葡萄糖、蔗糖、乳糖、麦芽糖、可溶性淀粉,固定质量浓度10 g/L)和最佳碳源质量浓度(10、12、14、16、18 g/L)、氮源种类(蛋白胨、黄豆粉、尿素、硝酸钠、硫酸铵,固定质量浓度10 g/L)和最佳氮源质量浓度(8、9、10、11、12 g/L)、无机盐种类(氯化钠、氯化镁、氯化钾、硫酸锰、氯化钙,固定质量浓度1 g/L)和最佳无机盐质量浓度(0.1、0.3、0.5、0.7、0.9、1.0 g/L)对菌株产蛋白酶活力的影响。
1.3.6.2 响应面试验
在单因素试验结果的基础上,分别以碳源质量浓度(A)、氮源质量浓度(B)、无机盐质量浓度(C)为自变量,以蛋白酶活力(Y)为响应值,根据Box-Behnken中心组合设计原理设计3因素3水平响应面试验。Box-Behnken试验设计因素与水平见表1。
表1 Box-Behnken试验设计因素与水平
Table1 Factors and levels for Box-Behnken design
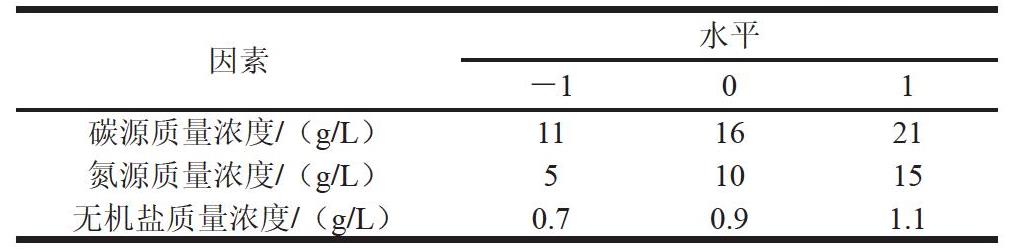
因素水平-101碳源质量浓度/(g/L)111621氮源质量浓度/(g/L)51015无机盐质量浓度/(g/L)0.70.91.1
1.3.7 菌株所产蛋白酶的酶学性质分析
1.3.7.1 最适温度和温度稳定性
首先,分别测定35、40、45、50、55、60、65 ℃条件下粗酶液的酶活力;其次,为评估其温度稳定性,将粗酶液在上述各温度下保温30 min后测定酶活力。以最高蛋白酶活为100%,计算不同温度处理后的相对酶活力。
1.3.7.2 最适pH值和pH值稳定性
首先,分别配制柠檬酸-柠檬酸钠(pH 4、5、6)、磷酸二氢钾-氢氧化钠(pH 7)、Tris-HCl(pH 8、9)和甘氨酸-氢氧化钠(pH 10)缓冲液,在最适反应温度下测定上述pH值条件下的蛋白酶活力;其次,为评估其pH值稳定性,将粗酶液在上述各缓冲体系下保温处理30 min后测定酶活力。以最高蛋白酶活力为100%,计算不同pH值处理后的相对酶活力。
1.3.7.3 乙醇耐受性
在不同乙醇体积分数(0%、4%、8%、12%、16%、20%)反应体系中,以最适反应温度和pH值反应10 min,以未加乙醇反应体系蛋白酶活力为100%,计算各反应体系的相对酶活力,考察该蛋白酶的乙醇耐受性。
1.3.7.4 抑制剂对蛋白酶活力的影响
在粗酶液中分别加入终浓度1 mmol/L和10 mmol/L EDTA、PMSF,4 ℃保温30 min,测定相应蛋白酶活力,初步考察菌株B2分泌的蛋白酶系组成,以未处理粗酶液的酶活力为100%,计算不同浓度抑制剂处理后的相对酶活力。
1.4 数据处理
实验均重复3次,数据以 ±s表示。采用SPSS 25.0软件进行单因素方差分析。
2 结果与分析
2.1 产蛋白酶菌株筛选
从白酒发酵酒醪液中共分离出46株菌,筛选出 12株D/d值大于3.0的菌株,初步判断这些菌株具有产蛋白酶能力。由表2可知,菌株B1、B2、B12、B16及B18所产蛋白酶活力较强(D/d值大于3.80),对这5株菌进行 复筛。
表2 菌株产蛋白酶能力初筛结果
Table2 Primary‑screening results of protease‑producing capacity for strains
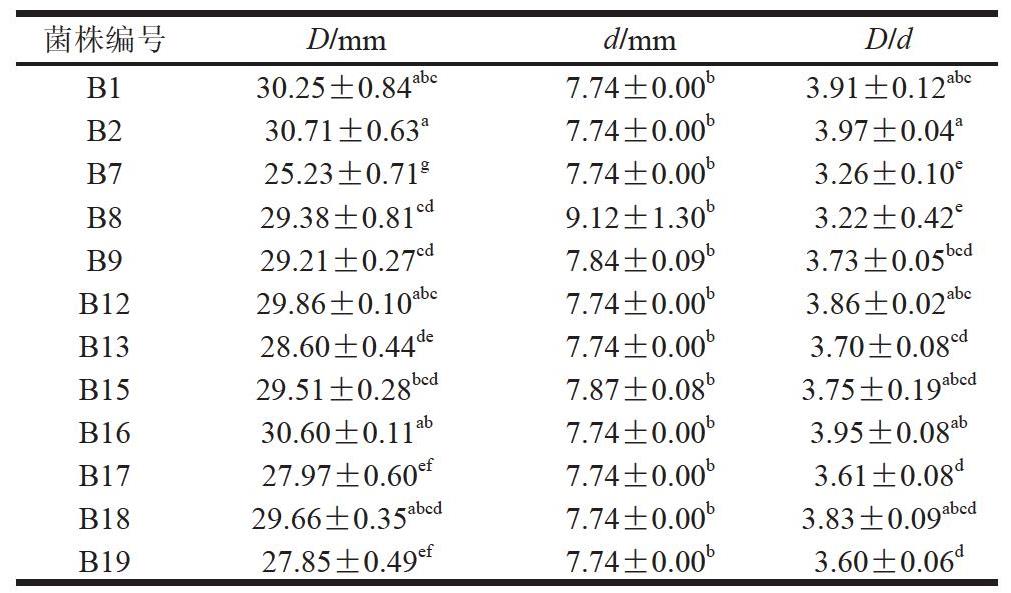
B929.21±0.27cd7.84±0.09b3.73±0.05bcdB1229.86±0.10abc7.74±0.00b3.86±0.02abcB1328.60±0.44de7.74±0.00b3.70±0.08cdB1727.97±0.60ef7.74±0.00b3.61±0.08d菌株编号D/mmd/mmD/dB130.25±0.84abc7.74±0.00b3.91±0.12abcB230.71±0.63a7.74±0.00b3.97±0.04aB725.23±0.71g7.74±0.00b3.26±0.10eB829.38±0.81cd9.12±1.30b3.22±0.42eB1529.51±0.28bcd7.87±0.08b3.75±0.19abcdB1630.60±0.11ab7.74±0.00b3.95±0.08abB1829.66±0.35abcd7.74±0.00b3.83±0.09abcdB1927.85±0.49ef7.74±0.00b3.60±0.06d
注:同列小写字母不同表示差异显著(P<0.05)。表3同。
由表3可知,其中菌株B2所产蛋白酶活力最高,可达28.78 U/mL,故选取B2进行鉴定。
表3 初筛菌株的蛋白酶活力
Table3 Protease activity of strains from primary screening
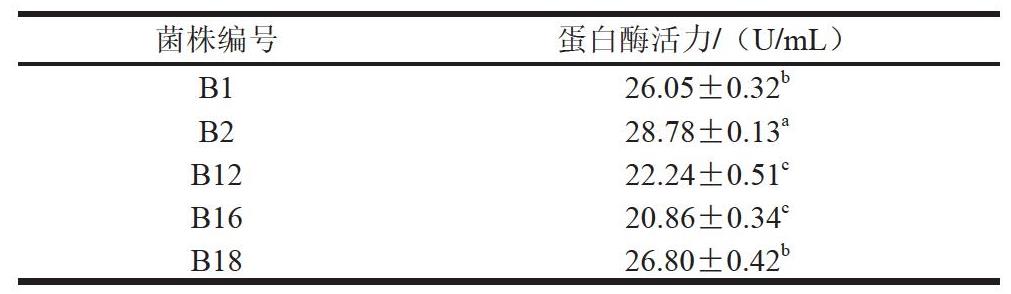
B126.05±0.32bB228.78±0.13aB1620.86±0.34c菌株编号蛋白酶活力/(U/mL)B1222.24±0.51cB1826.80±0.42b
2.2 菌株B2鉴定
2.2.1 形态学观察
如图1A所示,菌株在LB固体培养基上形成圆形菌落,呈乳白色,表面光滑、边缘整齐。如图1B所示,在显微镜下(×1 000)观察,菌体形态呈杆状,单个或者成对排列。革兰氏染色结果表明,菌株为革兰氏阳性菌。
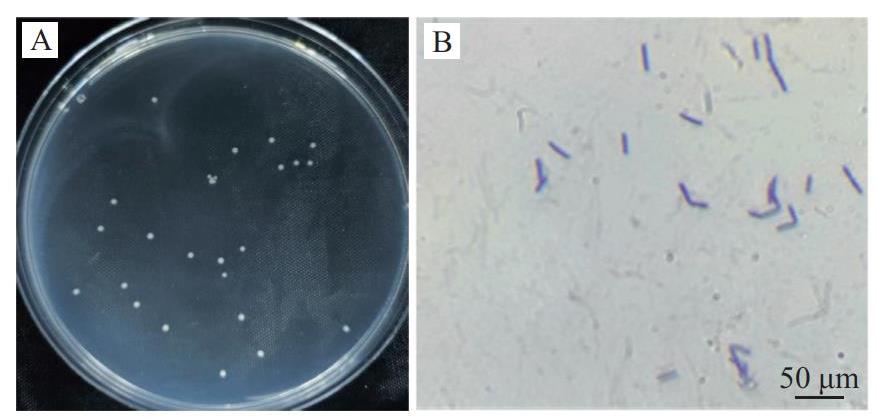
图1 菌株B2的菌落(A)及菌体(B)形态
Fig.1 Morphology of colony (A) and cell (B) of strain B2
2.2.2 生理生化实验
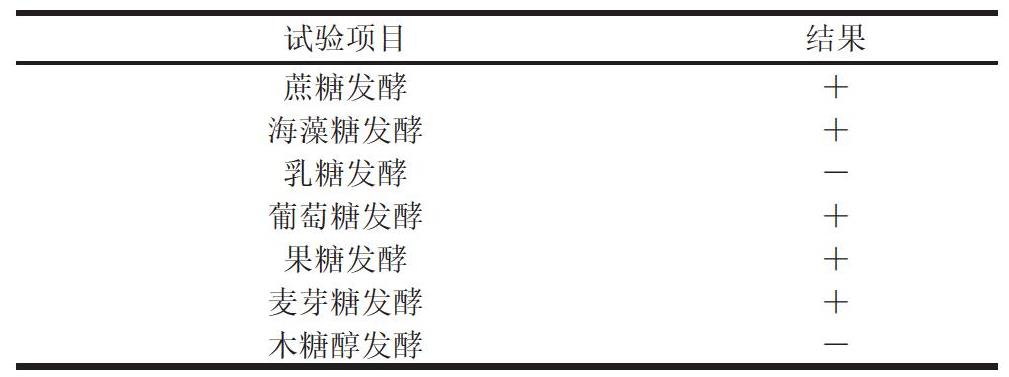
使用生化鉴定管对菌株糖利用能力进行鉴定。由表4可知,菌株B2能水解葡萄糖、果糖、麦芽糖、海藻糖等多种碳源满足自身的生长、代谢和繁殖,不能利用乳糖和木糖醇。
表4 菌株B2生理生化特征
Table4 Physiological and biochemical characteristics of strain B2
试验项目结果蔗糖发酵+海藻糖发酵+乳糖发酵-葡萄糖发酵+果糖发酵+麦芽糖发酵+木糖醇发酵-
注:+.阳性;-.阴性。
2.2.3 分子生物学鉴定
菌株B2的PCR扩增产物条带均在1 500 bp左右,条带清晰、无弥散拖尾,与引物理论预期片段大小一致,可用于后续测序。由图2可知,菌株B2与贝莱斯芽孢杆菌(Bacillus velezensis)聚于一支,同源性最高,达99.3%。结合菌株形态学观察及生理生化实验结果,菌株B2鉴定为贝莱斯芽孢杆菌。
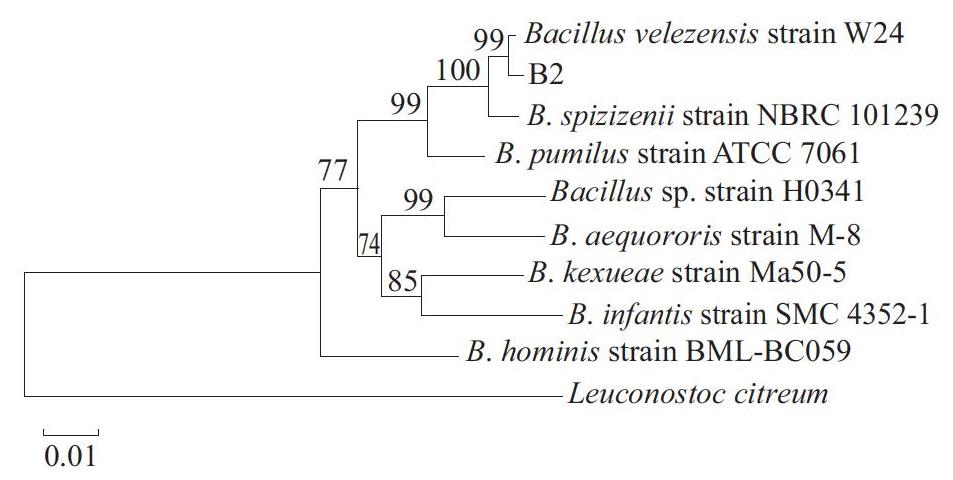
图2 基于16S rRNA基因序列构建的菌株B2的系统发育树
Fig.2 Phylogenetic tree of strain B2 constructed based on 16S rRNA gene sequences
2.3 菌株B2发酵条件优化单因素试验结果
由图3A可知,随着发酵时间在8~48 h范围内延长,蛋白酶活力呈先上升后下降的趋势;发酵24 h时,蛋白酶活力达到最高值,为29.23 U/mL。发酵前期培养基有充足的营养,菌株生长旺盛,促进蛋白酶合成与释放,从而提高产酶量和酶活力;后期培养基中营养物质消耗殆尽,菌体进入衰亡及芽孢形成阶段,蛋白酶合成过程随之停止,胞外已分泌蛋白酶也逐渐失活[20]。因此,最佳发酵时间为24 h。
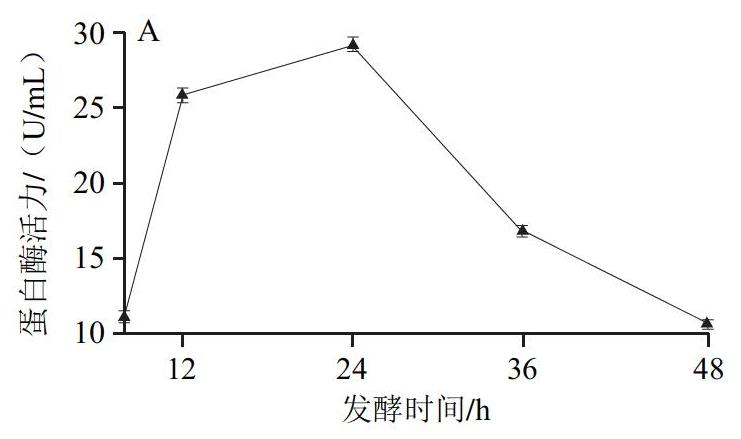
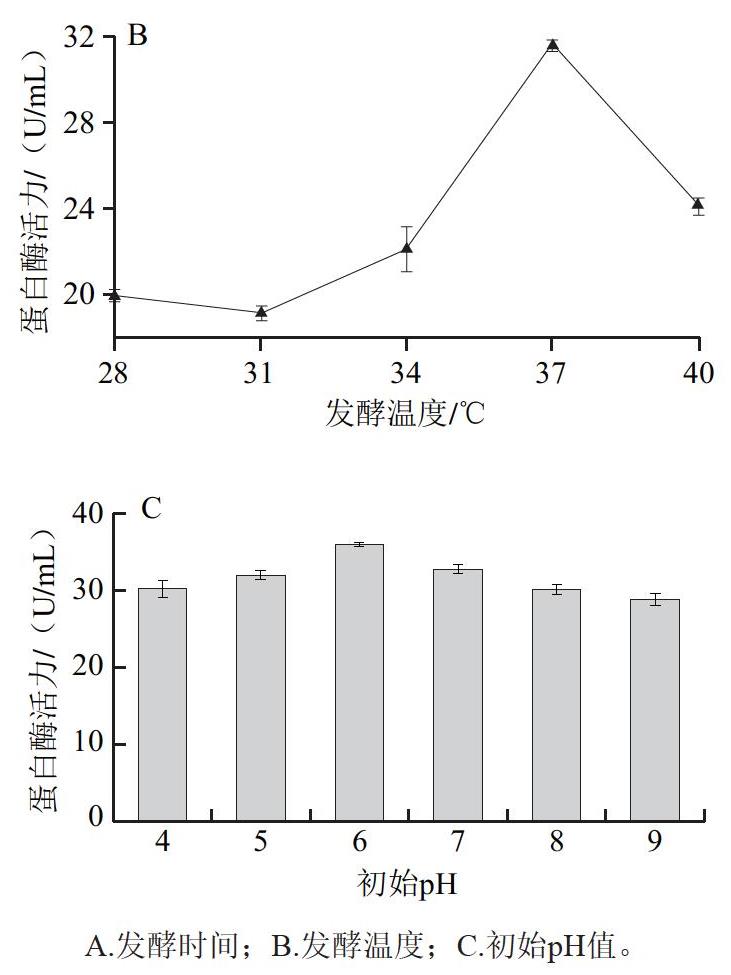
图3 发酵条件对菌株B2产蛋白酶活力的影响
Fig.3 Effects of fermentation conditions on protease-producing activity of strain B2
发酵温度是影响菌株产蛋白酶的关键因素之一[21]。适宜的温度能加速酶促反应,并提高微生物代谢效率,但过高的温度可能损害细胞膜结构,抑制细胞的正常代谢和产酶能力。由图3B可知,随着发酵温度在28~40 ℃范围内升高,蛋白酶活力呈先上升后下降的趋势;当发酵温度为37 ℃时,蛋白酶活力达到最高值,为31.63 U/mL。因此,最佳发酵温度为37 ℃。
pH值是菌株生长的重要环境因子,培养基的初始pH值过高或过低都会抑制微生物的生长、代谢及所产酶活力,进而影响产酶效率[22]。由图3C可知,随着培养基初始pH值在4~9范围内增加,蛋白酶活力呈先上升后下降的趋势;当培养基初始pH值为6时,蛋白酶活力达到最高值,为36.14 U/mL。因此,最佳培养基初始pH值为6。
2.4 乙醇胁迫条件下的菌株B2生长曲线与产酶曲线
环境因素能够影响微生物的生存策略及生理功能[23]。微生物在乙醇胁迫环境下正常存活并维持生理活性的核心前提是具备良好的乙醇耐受能力。由图4A可知,低乙醇体积分数(2%~4%)下,菌株迟滞期较短,与正常培养条件下基本一致,在10~20 h生长速率最快,达到对数生长期;在较高乙醇体积分数(6%)下,菌株需经过8~10 h的迟滞期才能进入对数生长期,而乙醇胁迫条件下菌体最终生物量略低于正常水平(OD600 nm值能达到1.2以上)。这与文献报道的胁迫条件会显著延长菌体迟滞期[24-25]相一致。当乙醇体积分数达8%以上时,菌株基本无增殖,也无产酶能力。
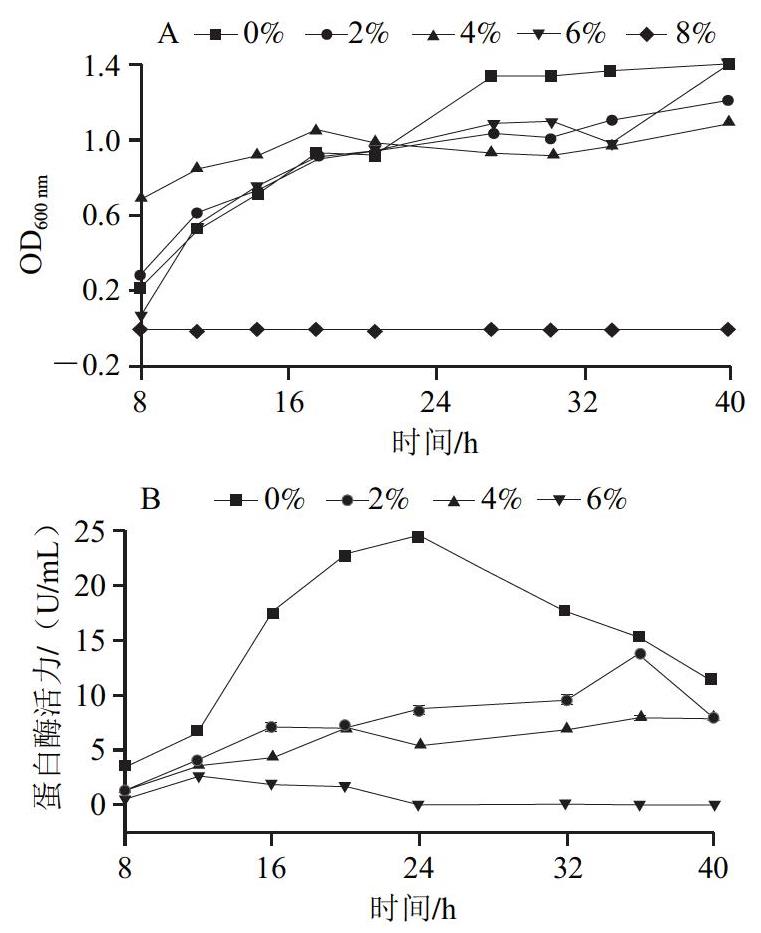
图4 不同乙醇体积分数下菌株B2生长曲线(A)和产酶曲线(B)
Fig.4 Growth curves (A) and enzyme-production curves (B) of strain B2 under different ethanol volume fractions
由图4B可知,正常培养条件下,菌株在培养8~48 h范围内,蛋白酶活力呈先上升后下降的趋势;当培养24 h时,蛋白酶活力最高,随后逐渐降低;但在乙醇胁迫下,菌株产酶受到明显抑制。当乙醇体积分数为2%时,蛋白酶活力最高值出现时间推迟至36 h,且最高蛋白酶活力仅为13.73 U/mL,相较于正常培养条件下的最高值降低约50%;当乙醇体积分数为4%时,随着培养时间延长,菌株产蛋白酶活力先增加后趋于平稳,蛋白酶活力较低;当乙醇体积分数为6%时,菌株产酶受到强烈抑制,酶活力极低。乙醇不仅抑制菌株本身的生长与代谢活动,使产酶量减少,还可能直接影响已分泌蛋白酶的构象,导致酶活力下降。乙醇体积分数为8%时,菌株无法增殖,故未绘制其产酶曲线。
2.5 培养基组成优化单因素试验结果
2.5.1 碳源种类及最佳碳源添加量对菌株产蛋白酶的影响
由图5A可知,以麦芽糖作为唯一碳源时,蛋白酶活力最高,达32.75 U/mL。由图5B可知,随着麦芽糖质量浓度在10~18 g/L范围内的增加,蛋白酶活力整体呈先上升后下降的趋势;当麦芽糖质量浓度为16 g/L时,菌株产蛋白酶活力达到最大值(29.92 U/mL)。因此,确定最佳碳源为麦芽糖,其最适质量浓度为16 g/L。
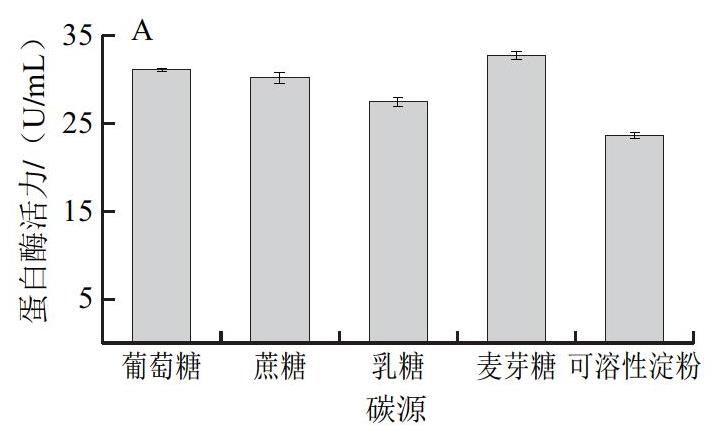
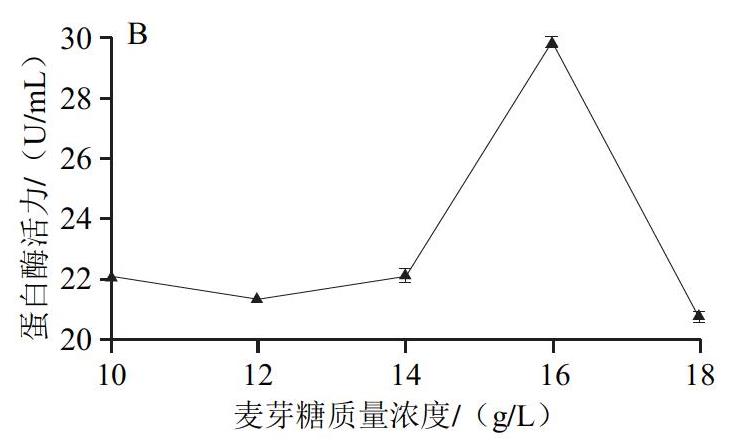
图5 培养基碳源种类(A)及质量浓度(B)对菌株B2产蛋白酶活力的影响
Fig.5 Effects of carbon-source types (A) and contents (B) in medium on protease activity produced by strain B2
2.5.2 氮源种类及最佳氮源添加量对菌株产蛋白酶的影响
由图6A可知,以蛋白胨为唯一氮源时,蛋白酶活力最高,为28.74 U/mL,高于其余氮源。蛋白胨中富含的氨基酸、维生素等组分,可直接参与微生物的转氨或脱氨反应,促进氮的高效利用,从而增强菌体的代谢活力和产酶效率[26]。由图6B可知,随着蛋白胨质量浓度在9~12 g/L范围内的增加,蛋白酶活力呈先上升后下降的趋势;当蛋白胨质量浓度为10 g/L时,菌株所产蛋白酶活力达到最大值(30.08 U/mL)。当蛋白胨质量浓度较低时,贝莱斯芽孢杆菌所产蛋白酶活力出现小幅下降,可能是由于蛋白胨富含小分子肽和氨基酸低浓度下可加快菌体同化代谢、促进菌株增殖,细胞对外源水解酶的需求随之降低,蛋白酶合成下调[27]。因此,确定最佳氮源为蛋白胨,其最适质量浓度为10 g/L。
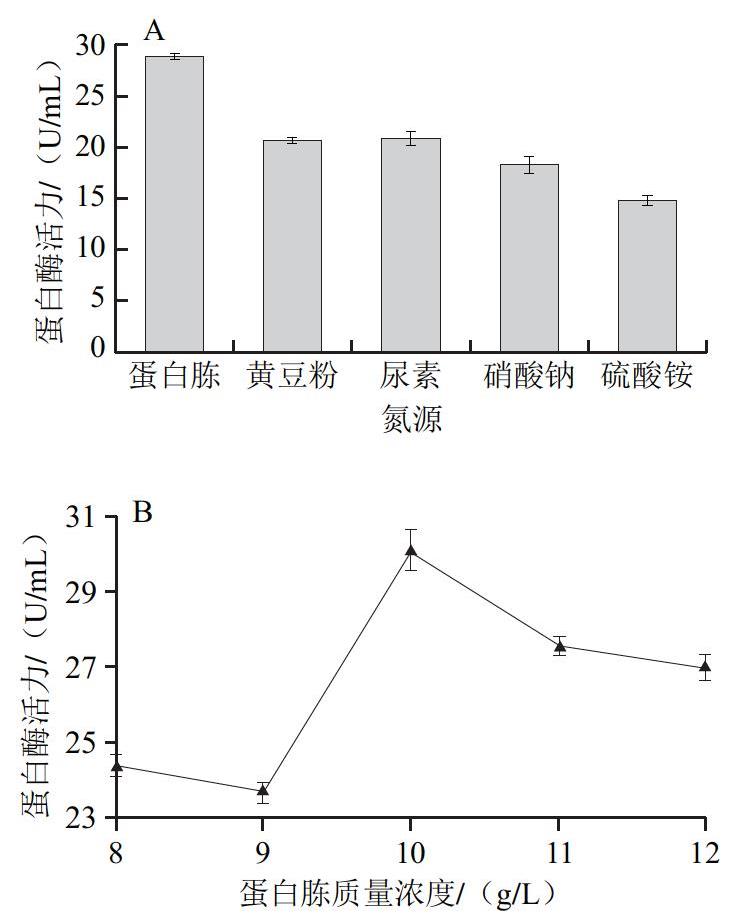
图6 培养基氮源种类(A)及质量浓度(B)对菌株B2产蛋白酶活力的影响
Fig.6 Effects of nitrogen-source types (A) and contents (B) in medium on protease activity produced by strain B2
2.5.3 无机盐种类及最佳无机盐添加量对菌株产蛋白酶的 影响
适量金属离子(尤其是二价金属离子)可显著提高蛋白酶活力[28]。由图7A可知,添加硫酸锰时,蛋白酶活力最高,达30.42 U/mL。由图7B可知,随着硫酸锰质量浓度在0.1~1.0 g/L范围内增加,蛋白酶活力呈先上升后下降的趋势;当硫酸锰质量浓度为0.9 g/L时,菌株所产蛋白酶活力达到最大值(31.98 U/mL)。因此,确定最佳无机盐为硫酸锰,其最适质量浓度为0.9 g/L。
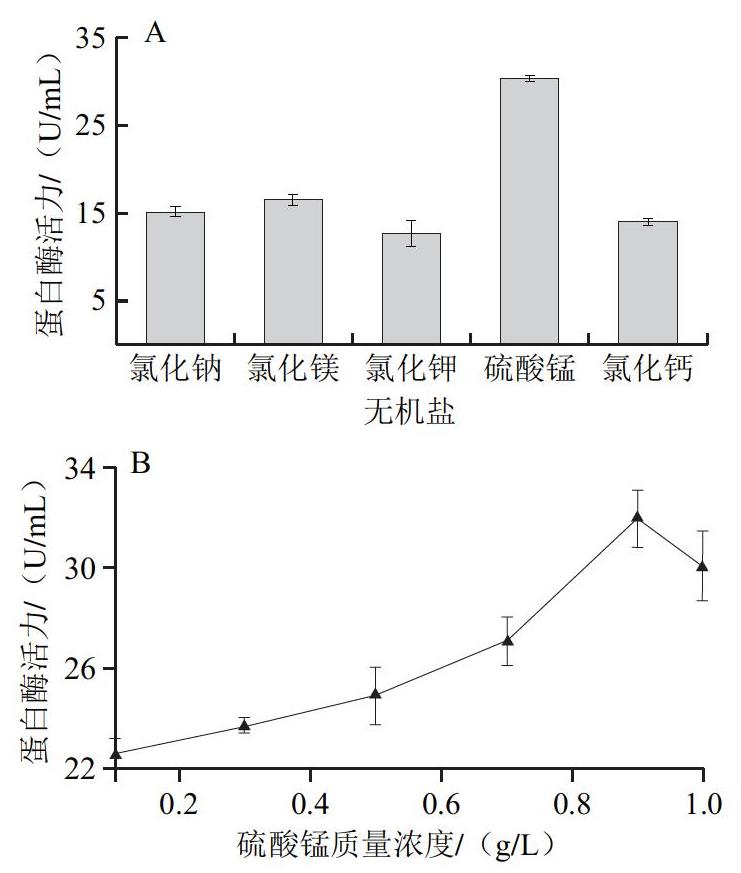
图7 无机盐种类(A)及质量浓度(B)对菌株B2产 蛋白酶活力的影响
Fig.7 Effects of inorganic-salt types (A) and contents (B) on protease activity produced by strain B2
2.6 菌株B2培养基组成优化响应面试验
在单因素试验结果的基础上,分别以碳源质量浓度(A)、氮源质量浓度(B)、无机盐质量浓度(C)为自变量,以蛋白酶活力(Y)为响应值,依据Box-Behnken中心组合设计原理设计3因素3水平的响应面试验,结果见表5,方差分析结果见表6。
表5 培养基组成优化Box-Behnken试验设计结果及分析
Table5 Results and analysis of Box-Behnken design for medium composition optimization
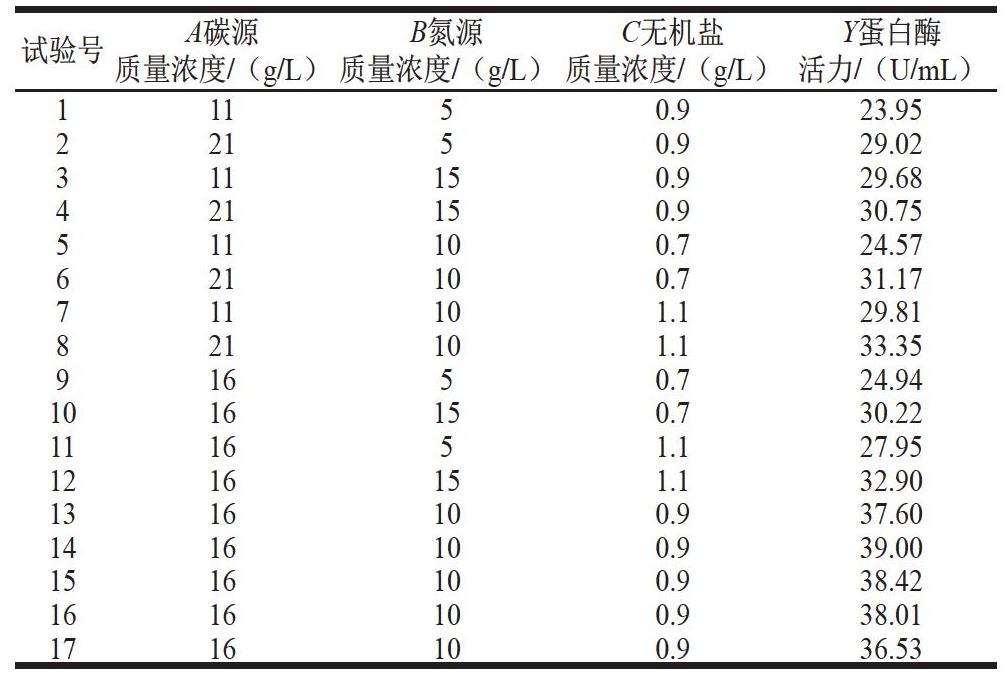
试验号质量浓A度碳/源(g/L)质量浓B度氮/源(g/L)质量浓C无度机/盐(g/L)活力Y/蛋(U白/酶mL)11150.923.9522150.929.02311150.929.68421150.930.75511100.724.57621100.731.17711101.129.81821101.133.3591650.724.941016150.730.22111651.127.951216151.132.901316100.937.601416100.939.001516100.938.421616100.938.011716100.936.53
表6 回归模型方差分析
Table6 Analysis of variance for regression model
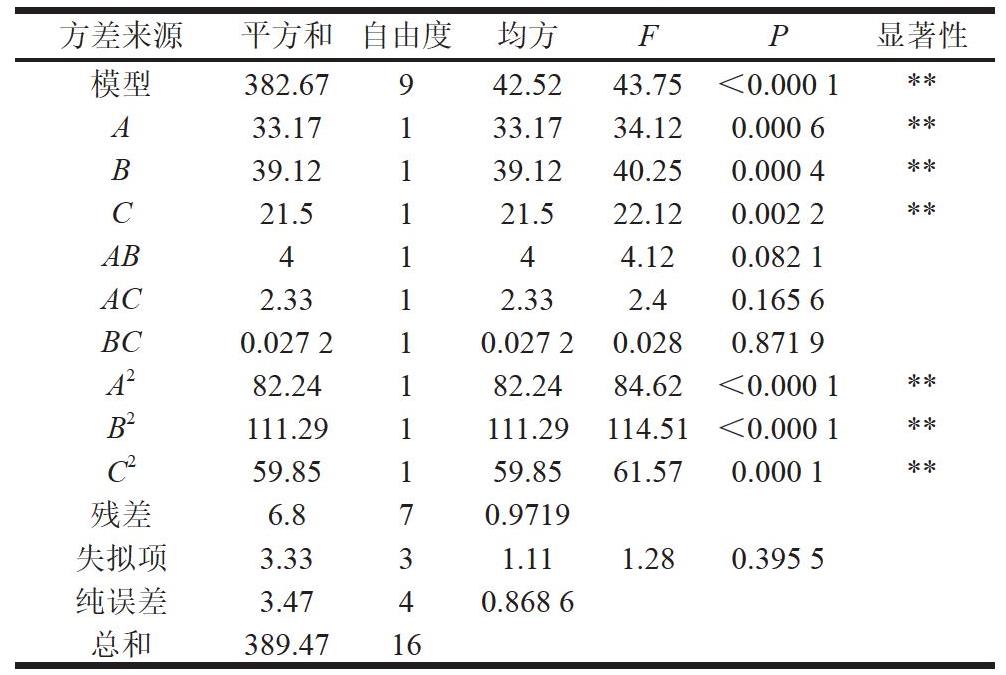
方差来源平方和自由度均方FP显著性模型382.67942.5243.75<0.000 1**A33.17133.1734.120.000 6**B39.12139.1240.250.000 4**C21.5121.522.120.002 2**AB4144.120.082 1AC2.3312.332.40.165 6BC0.027 210.027 20.0280.871 9A282.24182.2484.62<0.000 1**B2111.291111.29114.51<0.000 1**C259.85159.8561.570.000 1**残差6.870.9719失拟项3.3331.111.280.395 5纯误差3.4740.868 6总和389.4716
注:**.影响极显著(P<0.01)。
使用Design-Expert 13.0软件对表5数据进行多元回归分析,所得多元二次回归方程:Y=37.91+2.04A+2.21B+1.64C-1.00AB-0.76AC-0.08BC-4.42A2-5.14B2-3.77C2。由表6可知,模型极显著(P<0.000 1),失拟项不显著(P=0.395 5),表明模型可靠。校正决定系 =0.982 5,说明98.25%目标值的变异性可用该模型解释,模型拟合良好,变异系数为3.12%,表明数据准确度较高,具有可信度,模型拟合度良好,模型具有统计学意义。一次项A、B、C及二次项A2、B2、C2均对蛋白酶活力影响极显著(P<0.01),交互项对蛋白酶活力影响不显著(P>0.05),由F值可知,影响菌株蛋白酶活力的主次顺序为:氮源质量浓度(B)>碳源质量浓度(A)>无机盐质量浓度(C),表明菌株所产酶活力随培养基氮源和碳源质量浓度变化而产生较大波动,培养基无机盐质量浓度对其影响程度相对较小。
响应面越陡峭、等高线越接近椭圆形,表明两因素交互作用对蛋白酶活力影响越显著;反之,响应曲面越平缓、等高线越接近圆形,表明两因素交互作用对蛋白酶活力影响越弱[29]。由图8可知,各因素间交互作用响应曲面较平缓、等高线接近圆形,表明因素之间存在一定的交互作用,但不显著,这与方差分析结果一致。
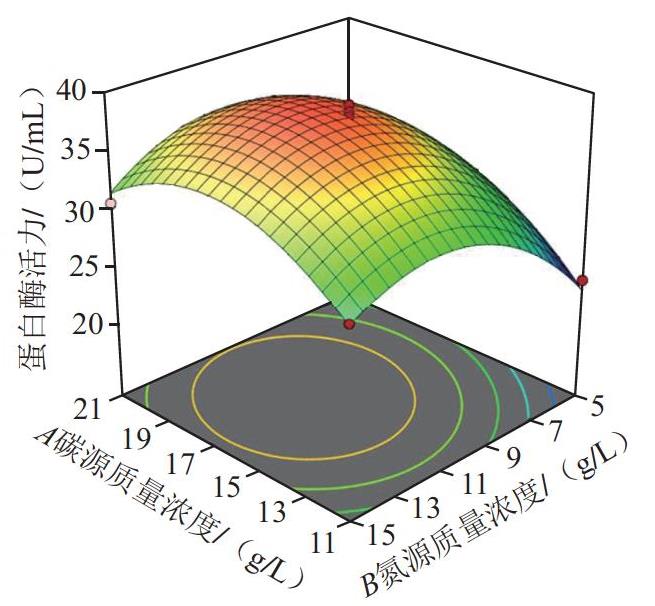
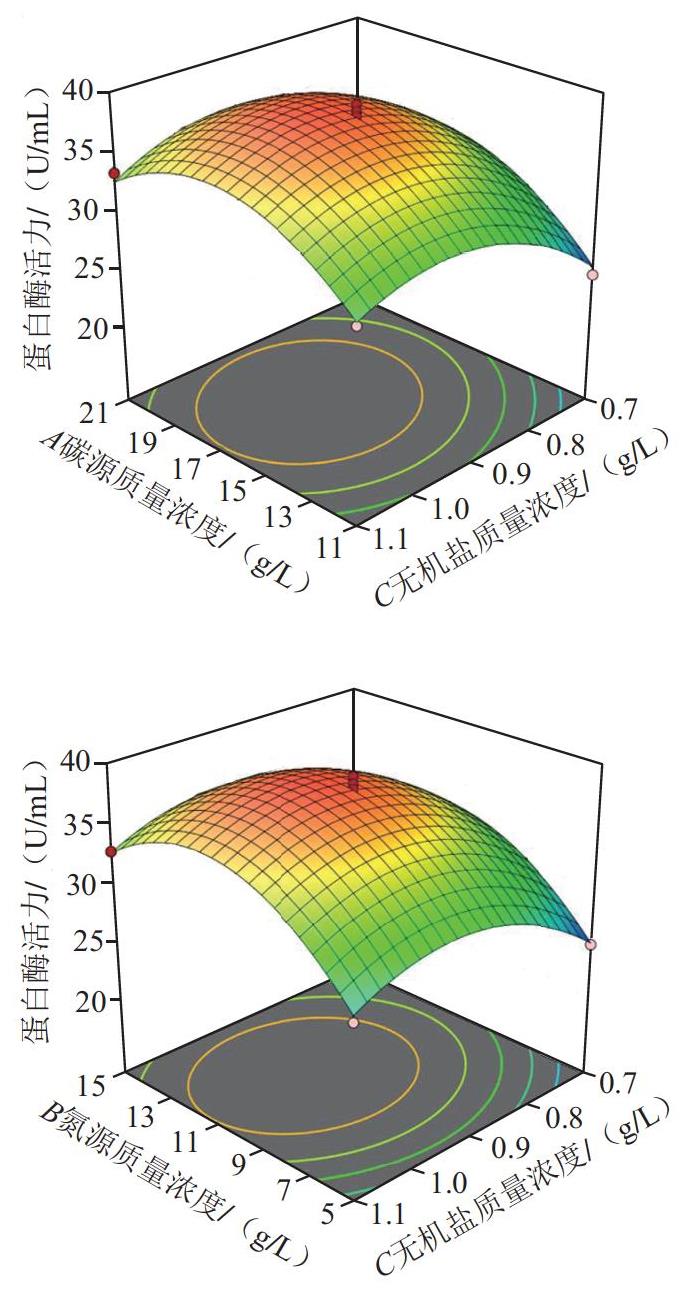
图8 各因素间交互作用对蛋白酶活力影响的响应曲面及等高线图
Fig.8 Response surface and contour plots illustrating interactive effects of various factors on protease activity
利用Design-Expert 13.0软件进行回归模型预测,得到最佳培养基组成为:碳源质量浓度16.96 g/L、氮源质量浓度10.97 g/L、硫酸锰质量浓度0.94 g/L。在此优化条件下,模型预测蛋白酶活力为38.48 U/mL。为方便实际操作,将培养基组成调整为:碳源质量浓度17 g/L、氮源质量浓度11 g/L、无机盐质量浓度0.9 g/L,经实验验证得到实际蛋白酶活力为39.44 U/mL,与预测值接近。表明此模型可用于菌株产蛋白酶活力预测。
2.7 菌株B2所产蛋白酶酶学性质
由图9A可知,随着温度在35~65 ℃范围内增加,相对酶活力呈先上升后下降的趋势,温度为50 ℃时,相对酶活力达到最高值。该酶属于典型的中温蛋白酶。由图9B 可知,该酶在35~50 ℃范围内孵育30 min后仍能保持70%以上的相对酶活力,表现出良好的热稳定性,其最适温度与芽孢杆菌属来源蛋白酶[30]一致;但当孵育温度超过50 ℃,酶活力迅速下降,推测高温破坏蛋白酶空间结构,引发不可逆变性,使其丧失催化功能。综上,菌株B2所产蛋白酶的最适温度为50 ℃,其在中等温度范围内兼具较高活性与稳定性。
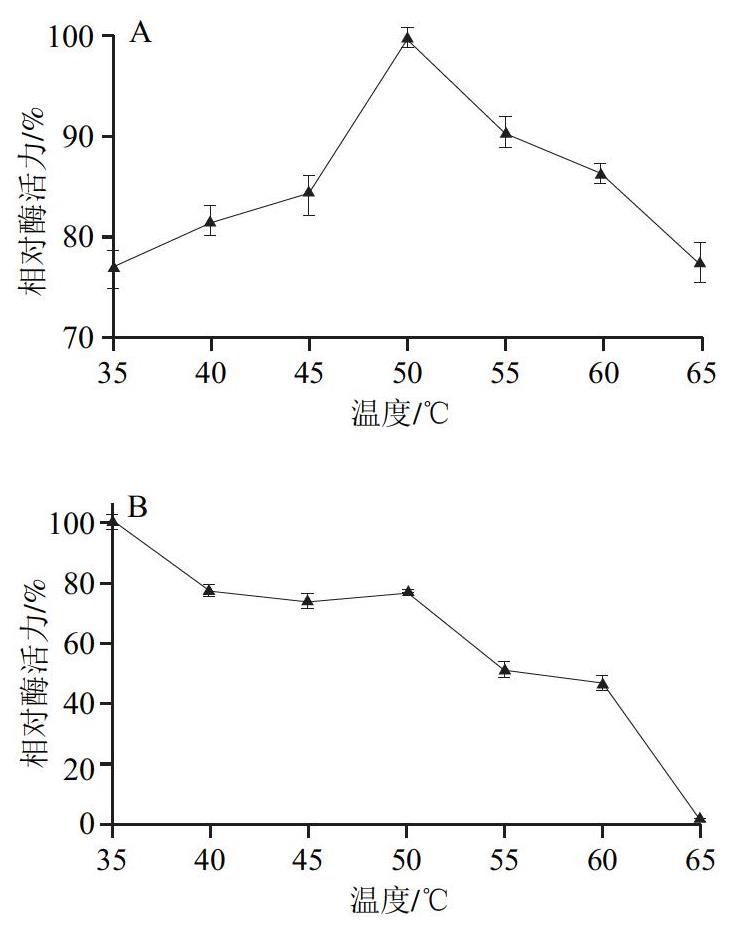
图9 菌株B2所产蛋白酶的最适温度(A)及温度稳定性(B)
Fig.9 Optimal temperature (A) and thermal stability (B) of protease produced by strain B2
由图10A可知,随着pH值在4~10范围内的增加,相对酶活力呈先上升后下降的趋势,pH值为7时,相对酶活力达到最高,表明该蛋白酶的最适pH值为7。由图10B可知,该酶在pH 6~10范围内孵育30 min后仍能保持90%以上的相对酶活力,显示出较宽的pH值稳定区间;当pH值低于6时,相对酶活力迅速下降,低于20%,其原因可能是,酸性条件会影响酶分子空间构象,活性中心关键基团的解离状态受到影响,从而导致催化功能降低甚至丧失[31]。综上,该蛋白酶最适pH值为7,且在中性至弱碱性(pH 6~10)环境中兼具高催化活性与良好稳定性。
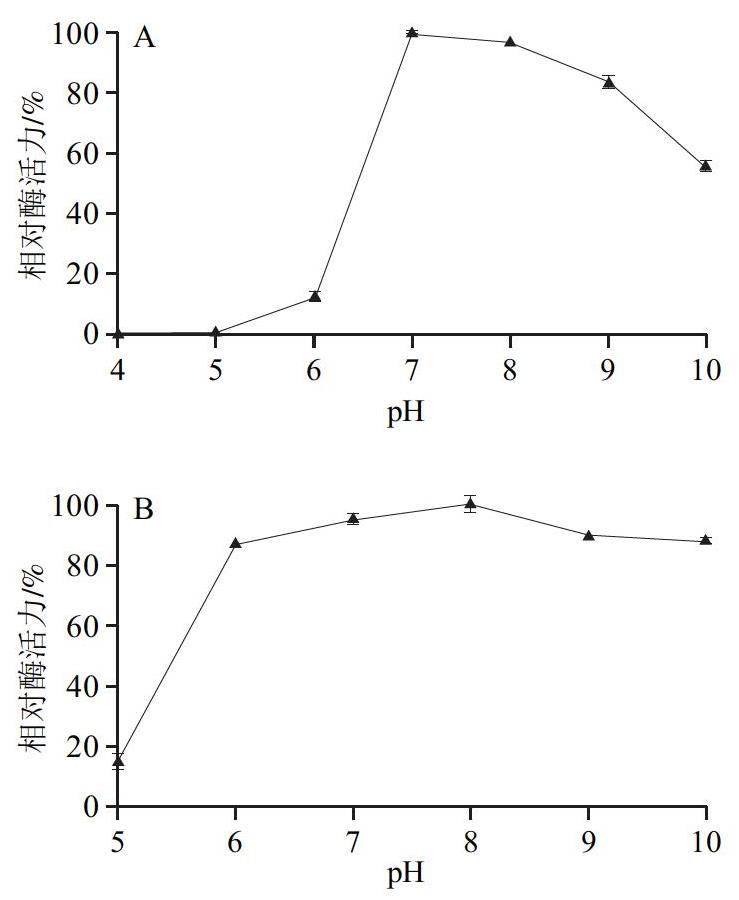
图10 菌株B2所产蛋白酶的最适pH值(A)与pH值稳定性(B)
Fig.10 Optimal pH (A) and pH stability (B) of protease produced by strain B2
乙醇可诱导蛋白酶构象发生改变,当浓度超过一定阈值时,会破坏蛋白酶空间结构,直接表现为酶活力下降甚至丧失[32]。如图11所示,当乙醇体积分数为0%~12%时,相对酶活力保持70%以上;当乙醇体积分数增至16%时,相对酶活力仍可维持在55%以上;乙醇体积分数为20%时,相对酶活力下降至40%。陈伯林[33]研究乙醇对酱油发酵体系中蛋白酶系的影响,发现乙醇对中性蛋白酶活力的抑制作用较明显,特别是乙醇体积分数高于2%后,相对酶活力急剧下降,最低降至38%。以上结果表明,菌株B2所产蛋白酶系具有一定的乙醇耐受性。
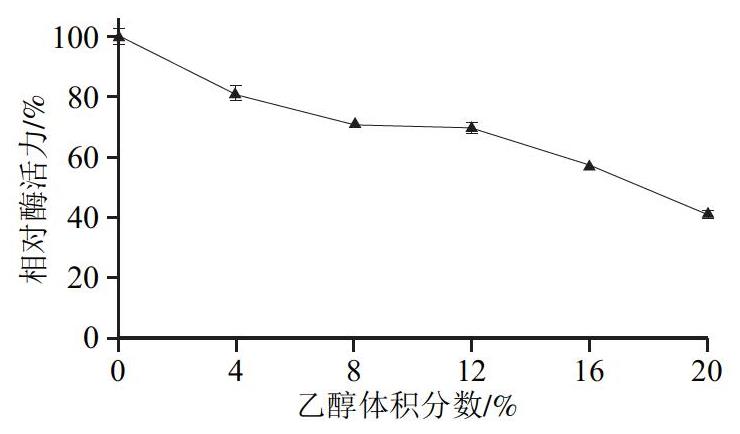
图11 菌株B2所产蛋白酶的乙醇耐受性
Fig.11 Ethanol tolerance of protease produced by strain B2
2.8 菌株所产蛋白酶系组成
如表7所示,终浓度1 mmol/L与10 mmol/L EDTA和PMSF均可抑制粗酶液中的蛋白酶活力,且随着抑制剂浓度的增加,相对酶活力无明显变化,说明低浓度抑制剂即可对该蛋白酶实现最大抑制效果,进一步提高抑制剂浓度并未引起酶活力显著下降,表明抑制效果已趋于饱和。PMSF是丝氨酸蛋白酶的特异性不可逆抑制剂,1 mmol/L PMSF处理后,相对酶活力降至67%,提示粗酶液体系中存在丝氨酸蛋白酶,且丝氨酸蛋白酶在总蛋白酶活力中占比约为33%。EDTA是金属离子螯合剂,能剥夺金属蛋白酶活性中心必需的金属离子,1 mmol/L EDTA处理后,相对酶活力降至74%,初步推测粗酶液体系中存在金属蛋白酶,且金属蛋白酶活力约占总蛋白酶活力的26%。两种抑制剂单独作用后,酶活力并未完全丧失,且两者抑制率之和小于100%,说明粗酶液体系同时存在丝氨酸蛋白酶和金属蛋白酶;除此之外,体系内还可能存在对PMSF和EDTA均不敏感的其他蛋白酶类型,如半胱氨酸蛋白酶、天冬氨酸蛋白酶等[34]。
表7 不同浓度EDTA和PMSF对蛋白酶活力的影响
Table7 Effects of ethylenediaminetetraacetic acid and phenylmethylsulfonyl fluoride at different concentrations on protease activity
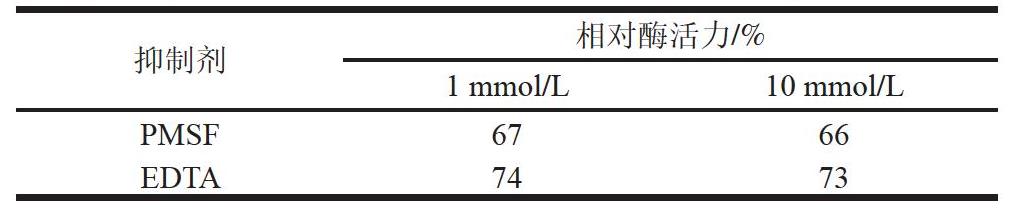
抑制剂1 mmol/L相对酶活力/%10 mmol/LPMSF6766EDTA7473
结合硫酸锰能够提高贝莱斯芽孢杆菌B2产酶能力推测,该菌株分泌的蛋白酶是由丝氨酸蛋白酶和金属蛋白酶(可能是Mn2+依赖型)组成的胞外蛋白酶复合体系。培养基中添加适宜浓度Mn2+的增效机制存在两方面可能:其一,Mn2+可能在转录/翻译水平上促进两种酶(尤其是金属蛋白酶)的合成与分泌;其二,Mn2+作为辅因子和稳定剂,能够极大地激活并保护金属蛋白酶活力,即使其初始贡献不是绝对主导,但其活力大幅提升也足以驱动整个蛋白酶体系活力的升高。后续将针对贝莱斯芽孢杆菌B2胞外蛋白酶开展纯化鉴定、酶谱分析等研究,进一步探究其产酶类型、Mn2+离子促进产酶/提高酶活力的分子机制。
3 结 论
本研究从酒源微生物中筛选出一株高产蛋白酶菌株B2,经形态学观察、生理生化实验及分子生物学鉴定为贝莱斯芽孢杆菌。该菌株能在2%~4%乙醇体积分数下生长,具备一定的乙醇耐受能力。通过单因素及响应面试验优化,确定菌株B2的最适产酶条件和培养基为:发酵时间24 h、温度37 ℃、培养基初始pH 6,培养基组成为麦芽糖17 g/L、蛋白胨11 g/L、硫酸锰0.9 g/L,在此条件下,所产蛋白酶活力达到39.44 U/mL,较初始酶活力(28.78 U/mL)提高37%。酶学性质分析表明,该酶最适反应温度为50 ℃,最适反应pH值为7,具有较好的乙醇耐受性,在12%乙醇体积分数下仍能保持70%以上的相对酶活力。蛋白酶抑制剂实验表明,菌株B2所产酶系是由丝氨酸蛋白酶和金属蛋白酶组成的胞外蛋白酶复合体系。本研究不仅丰富了高产蛋白酶菌株资源,也为特殊应用场景下的新型蛋白酶开发提供了菌种资源。
[1] 肖寒, 刘秀妨, 郑淋, 等. 溶组织梭状芽孢杆菌胶原蛋白酶的研究进展[J]. 食品科学, 2022, 43(17): 316-325. DOI:10.7506/spkx1002-6630-20210830-385.
[2] 贾仲昕, 赵佳男, 季芳. 高产中性蛋白酶芽孢杆菌的筛选鉴定及酶学性质研究[J]. 黑龙江畜牧兽医, 2023(1): 106-112; 32.DOI:10.13881/j.cnki.hljxmsy.2022.02.0175.
[3] Li Xiaoguang, Zhang Qian, Gan Longzhan, et al. Exoproduction and biochemical characterization of a novel serine protease from Ornithinibacillus caprae L9T with hide-dehairing activity[J]. Journal of Microbiology and Biotechnology, 2022, 32(1): 99-109. DOI:10.4014/jmb.2108.08037.
[4] Zhang Kui, Han Yapeng. Thermostable bacterial collagenolytic proteases: a review[J]. Journal of Microbiology and Biotechnology,2024, 34(7): 1385-1394. DOI:10.4014/jmb.2404.04051.
[5] Matkawala F, Nighojkar S, Kumar A, et al. Microbial alkaline serine proteases: production, properties and applications[J]. World Journal of Microbiology and Biotechnology, 2021, 37(4): 63. DOI:10.1007/s11274-021-03036-z.
[6] Sun Biao, Zou Kai, Zhao Yingqing, et al. The fermentation optimization for alkaline protease production by Bacillus subtilis BS-QR-052[J]. Frontiers in Microbiology, 2023, 14: 1301065. DOI:10.3389/fmicb.2023.1301065.
[7] 袁媛, 王蕾, 石亚伟. 微生物来源碱性蛋白酶活性提高策略的研究进展[J]. 生物技术通报, 2021, 37(5): 231-236. DOI:10.13560/j.cnki.biotech.bull.1985.2020-1043.
[8] Wang Qiang, Zhang Hongxun, Liu Xiu. Microbial community composition associated with Maotai liquor fermentation[J]. Journal of Food Science, 2016, 81(6): M1485-M1494. DOI:10.1111/1750-3841.13319.
[9] Yang Liang, Xian Chun, Li Peng, et al. The spatio-temporal diversity and succession of microbial community and its environment driving factors during stacking fermentation of Maotai-flavor Baijiu[J]. Food Research International, 2023, 169: 112892. DOI:10.1016/j.foodres.2023.112892.
[10] 凡立澜, 丁玲玲, 梁安健, 等. 植物乳植杆菌产蛋白酶条件的优化[J]. 中国酿造, 2025, 44(10): 275-280. DOI:10.11882/j.issn.0254-5071.2025.10.039.
[11] 仲秀芳, 马景浩, 赵萱, 等. 白酒酿造环境中高温菌株的筛选、鉴定及其特性分析[J]. 微生物学通报, 2025, 52(1): 309-326.DOI:10.13344/j.microbiol.china.240285.
[12] 刘爽, 江洲, 赵帅, 等. 一株产蛋白酶细菌的筛选、鉴定及发酵工艺优化[J]. 生物技术通报, 2025, 41(4): 335-344. DOI:10.13560/j.cnki.biotech.bull.1985.2024-0945.
[13] 宋曦, 姚龙龙, 刘琼琼, 等. 乔川黄酒麦曲中产蛋白酶霉菌的分离筛选[J]. 农产品加工, 2026(7): 88-92; 97. DOI:10.16693/j.cnki.1671-9646(X).2026.07.016.
[14] 吴海锋, 张瑾, 陆祖军, 等. 酱香型白酒大曲细菌与蛋白酶研究进展[J]. 广西师范大学学报(自然科学版), 2022, 40(5): 398-405.DOI:10.16088/j.issn.1001-6600.2021102102.
[15] Dussault D, Vu K D, Lacroix M. Enhancement of nisin production by Lactococcus lactis subsp. lactis[J]. Probiotics and Antimicrobial Proteins, 2016, 8(3): 170-175. DOI:10.1007/s12602-016-9216-z.
[16] 张晓燕. 产低温蛋白酶菌株的筛选及酶学特性研究[D]. 乌鲁木齐:新疆农业大学, 2014.
[17] 于瑶. 产低温蛋白酶菌株的筛选及酶特性研究与其在烟草发酵中的应用[D]. 杨凌: 西北农林科技大学, 2025. DOI:10.27409/d.cnki.gxbnu.2025.002079.
[18] 东秀珠, 蔡妙英. 常见细菌系统鉴定手册[M]. 北京: 科学出版社, 2001.
[19] Buchanan R E, Gibbons N E. 伯杰细菌鉴定手册[M]. 8版. 中国科学院微生物研究所, 译. 北京: 科学出版社, 1984.
[20] 何仕会, 王树林. 青稞酒曲产淀粉酶菌株分离鉴定、生物学及酶学特性研究[J]. 食品与发酵工业, 2025, 51(22): 172-179.DOI:10.13995/j.cnki.11-1802/ts.043407.
[21] 郭艳霞, 贾丽艳, 畅盼盼, 等. 响应面法优化贝莱斯芽孢杆菌YB19产中性蛋白酶发酵条件[J]. 中国调味品, 2021, 46(4): 16-20; 37.DOI:10.3969/j.issn.1000-9973.2021.04.004.
[22] 朱绍辉, 王斌, 夏伟, 等. 几株高产蛋白酶菌株的分离鉴定及初步研究[J]. 中国畜牧兽医, 2013, 40(7): 182-186. DOI:10.3969/j.issn.1671-7236.2013.07.043.
[23] Morard M, Macías L G, Adam A C, et al. Aneuploidy and ethanol tolerance in Saccharomyces cerevisiae[J]. Frontiers in Genetics, 2019,10: 82. DOI:10.3389/fgene.2019.00082.
[24] 熊国通, 苗英杰, 吴祖芳, 等. 乙醇胁迫下酿酒酵母(Sc131)生长状态和基因的表达[J]. 中国食品学报, 2018, 18(8): 247-253.DOI:10.16429/j.1009-7848.2018.08.032.
[25] 张霖, 夏程程, 王文悦, 等. 乳酸菌的乙醇耐受机制及其在食醋生产中的应用[J]. 现代食品科技, 2024, 40(3): 91-101. DOI:10.13982/j.mfst.1673-9078.2024.3.0322.
[26] 张晓瑞, 刘晓晖, 付博, 等. 烟草中淀粉降解菌的筛选、鉴定及发酵工艺优化[J]. 食品与机械, 2021, 37(2): 34-41. DOI:10.13652/j.issn.1003-5788.2021.02.007.
[27] He Hehe, Li Youran, Zhang Liang, et al. Understanding and application of Bacillus nitrogen regulation: a synthetic biology perspective[J].Journal of Advanced Research, 2023, 49: 1-14. DOI:10.1016/j.jare.2022.09.003.
[28] 余茜, 张国丽, 敖晓琳. 金属离子对微生物蛋白酶活性的影响及机理[J]. 中国食品学报, 2019, 19(4): 287-94. DOI:10.16429/j.1009-7848.2019.04.034.
[29] Balasubramanian B, Ilavenil S, Al-Dhabi N A, et al. Isolation and characterization of Aspergillus sp. for the production of extracellular polysaccharides by response surface methodology[J]. Saudi Journal of Biological Sciences, 2019, 26(3): 449-454. DOI:10.1016/j.sjbs.2018.10.015.
[30] 杨士晶, 陈华婷, 刘春凤, 等. 淀粉液化芽孢杆菌BS5582产蛋白酶的酶学性质分析及其在酱油中的应用[J]. 食品与发酵工业, 2025,51(20): 112-121. DOI:10.13995/j.cnki.11-1802/ts.042012.
[31] 袁江兰, 何首春, 康旭, 等. 安卡红曲霉酸性蛋白酶分离纯化及部分酶学性质分析[J]. 食品科学, 2018, 39(10): 118-24. DOI:10.7506/spkx1002-6630-201810019.
[32] 刘玉芳, 王淼. 蛋白酶在乙醇溶液中的性质及构象[J]. 食品与发酵工业, 2011, 37(10): 31-35; 40. DOI:10.13995/j.cnki.11-1802/ts.2011.10.041.
[33] 陈伯林. 乙醇对酱油发酵体系中蛋白酶系的影响研究[J].现代食品科技, 2011, 27(10): 1192-1195. DOI:10.13982/j.mfst.1673-9078.2011.10.020.
[34] 周北雅, 郭艳东, 薛雅鞠, 等. 功能蛋白酶催化及应用进展[J].生物加工过程, 2023, 21(4): 419-438. DOI:10.3969/j.issn.1672-3678.2023.04.007.