白酒是中国特有的传统蒸馏酒,历史悠久、文化底蕴深厚。与全球其他蒸馏酒不同,白酒生产的核心在于以酒曲作为糖化发酵剂。根据生产工艺和物理特性差异,酒曲可分为大曲、小曲和麸曲,其中,酱香型白酒主要依赖高温大曲进行发酵[1]。大曲的质量是塑造酱香型白酒风味与整体风格的决定性因素,其品质的优劣直接体现于成品酒的感官特性。高品质高温大曲的典型香气特征表现为酱香、焙烤香、豆豉香及果香等多种香气和谐共存,共同构成层次丰富、愉悦怡人的复合香[2]。
高温大曲的生产涵盖润麦、磨碎、拌料(加入母曲与水)、踩曲、入仓发酵及出仓贮存等一系列工序,整个过程始终处于开放环境中[3]。因此,环境中部分微生物可自然迁移至曲坯并实现定殖与代谢活动,进而影响大曲的最终品质[4]。研究表明,高温大曲中的微生物主要来源于原料、室内外地面、空气和工具等[5]。Du Hai等[6]研究表明,中温大曲中的真菌群落,如扣囊复膜孢酵母(Saccharomycopsis fibuligera)、库德里阿兹威毕赤酵母(Pichia kudriavzevii)、米根霉(Rhizopus oryzae)、米曲霉(Aspergillus oryzae)主要源于工具和室内地面;而细菌群落则主要来自原料,以成团泛菌(Pantoeaagglomerans)、干燥鞘氨醇单胞菌(Sphingomonasdesiccabilis)、产气肠杆菌(Enterobacter aerogenes)、韩国假单胞菌(Pseudomonas koreensis)等为主。近期研究进一步揭示,高温大曲的细菌群落主要源自室外空气(60.1%)、地面(29.4%)、室内空气(4.6%)、原料(3%)与稻草(1.3%);而真菌主要来自稻草(50.5%)和地面(36.4%),其次为室外空气(11.1%)[7]。目前,针对大曲发酵过程中曲仓生物气溶胶的研究仍相对有限。
生物气溶胶是指由生物来源或具有生物活性的颗粒物构成并悬浮于空气中的胶体分散体系[8]。在高温大曲发酵曲仓内,其生物气溶胶的微生物组成主要源自地面或大曲本身[9]。气溶胶与大曲之间的微生物交换是双向、持续的过程,工人的翻曲操作是驱动这一双向交换的重要物理机制:在翻仓过程中,工人翻动曲块会扬起附着在曲块表面的微生物,大量释放到空气中,而空气中的微生物又会通过重力沉降至大曲表面形成动态的双向循环[10-11]。Li Xuanchen等[11]基于SourceTracker进行微生物溯源分析,结果表明,生物气溶胶中的真菌分别贡献了高温大曲表面与中心真菌群落的51.3%与33.2%,显示出其对大曲微生物群落结构的显著影响。由此可见,通过调控生物气溶胶微生物以优化高温大曲的微生物组成,是提升大曲品质的一条潜在有效途径。然而,目前对不同品质高温大曲所在发酵曲仓中生物气溶胶微生物的结构特征及其在发酵过程中的动态演替规律与驱动机制认识仍显不足,这为稳定生产高质量高温大曲带来挑战。
为探索通过生物气溶胶微生物调控提升高温大曲品质的新途径,本研究选取贵州地区高温大曲品质差异明显的2类典型生产曲仓,通过解析高温大曲发酵过程中曲仓生物气溶胶的微生物群落结构及其与环境因子(温度、相对湿度)的关联,结合PICRUSt2与FUNGuild预测菌群功能,旨在解析不同品质高温大曲曲仓生物气溶胶的关键差异物种,明确温度、相对湿度等环境因子对生物气溶胶中优势微生物群落构建的驱动机制,为深入理解生物气溶胶在高温大曲发酵生态系统中的生态功能提供新视角,并为构建基于生物气溶胶微生物与环境因子协同调控的标准化制曲工艺提供理论支撑。
1 材料与方法
1.1 材料与试剂
高温大曲采自同一企业的不同生产车间。
混合纤维素酯过滤膜、十六烷基三甲基溴化铵(cetyltrimethylammonium bromide,CTAB) 北京索莱宝科技有限公司;TAE电泳缓冲液(分析纯) 国药集团化学试剂有限公司;DNA提取磁珠试剂盒 天根生化科技(北京)有限公司;凝胶回收试剂盒 德国Qiagen公司;dNTPs 宝日医生物技术(北京)有限公司;文库构建试剂盒、NovaSeq 6000测序试剂 美国Illumina公司;Phusion®高保真聚合酶链式反应(polymerase chain reaction,PCR)预混液 美国New England Biolabs公司。
1.2 仪器与设备
LY-1200空气环境智能中流量颗粒物采样器 杭州路阳环保科技有限公司;MBS-1温湿度显示仪 南京苏测计量仪器有限公司;NovaSeq 6000测序仪(配S4流动槽及Xplore数据处理系统) 美国Illumina公司;UV-2450紫外-可见分光光度计 日本岛津公司;Qubit 4.0荧光计(配dsDNA HS Assay Kit)、LP Vortex Mixer涡旋混合器 美国Thermo Fisher Scientific公司;Bioanalyzer 2100微流控分析仪(配有DNA 1000芯片) 美国Agilent公司;5804R高速离心机、Mastercycler nexus 梯度PCR仪 德国Eppendorf公司;MK-10恒温金属浴 杭州奥盛仪器有限公司。
1.3 方法
1.3.1 生物气溶胶微生物样品采集
高温大曲的品质由贵州贵酒集团有限公司产品质量部组织人员从外观、断面、曲皮厚及曲香等方面进行品质评定。高品质高温大曲(HD)曲香纯正、发酵状态好、菌丝穿衣好、曲皮薄、断面整齐、菌丝健壮、呈灰白色、无青霉菌感染、无湿心;低品质高温大曲(LD)有异香、发酵状态一般、菌丝穿衣一般、曲皮厚、菌丝一般、裂缝较多、青霉菌感染较多、有湿心[12]。
依据品质评定结果将对应发酵曲仓划分为HD曲仓(图1A)和LD曲仓(图1B)。采样时,大曲尚未完成发酵,但基于历史生产数据,其品质差异具有稳定性和可预测性。所选取的HD与LD曲仓来源于同一企业的不同生产车间,其建筑布局和初始环境条件存在客观差异(HD位于楼层式建筑中间层,LD位于平房式建筑外侧),这些差异并非实验设计主动引入的变量,而是实际生产布局中客观存在的异质性。参考Li Xuanchen等[11]的方法进行取样,采集不同品质高温大曲曲仓的生物气溶胶微生物。取样方法:分别在入仓(s1)、第1次翻仓排潮时(s2)、第2次翻仓排潮时(s3)及发酵结束(s4)进行采样,使用空气环境智能中流量颗粒物采样器和混合纤维素酯过滤膜,在100 L/min的空气流速下收集空气中的生物气溶胶,采样点设置于曲垛侧约1 m处,采样器进气口离地高度为1.5 m,于曲仓过道侧的3个区域(门侧、中侧、内侧)同时取样,持续24 h。其中,s2和s3阶段是在操作人员翻仓后进行取样。HD与LD曲仓的生物气溶胶微生物样品依次编号为HD s1、HD
 s2、HD
 s3、HD
 s4与LD
 s1、LD
 s2、LD
 s3、LD
 s4。所有样品采集后立即置于冰盒中运回实验室,用于后续微生物组学分析。
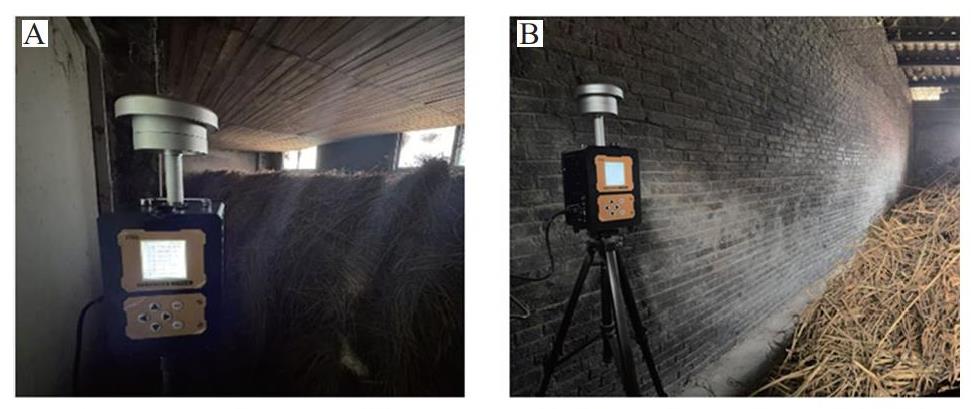
图1 高品质(A)与低品质(B)曲仓生物气溶胶微生物样品采集示意图
Fig.1 Schematic diagram of bioaerosol microbial sampling in HD (A) and LD (B) Qu warehouses
1.3.2 环境参数测定
在生物气溶胶微生物采样的同时,对HD与LD曲仓距离地面上方1.25~1.50 m处的温度和相对湿度进行实时记录。
1.3.3 基因组DNA的提取和PCR扩增
采用CTAB法提取样本总基因组DNA,用1%琼脂糖凝胶电泳检测DNA浓度和纯度,用无菌水将DNA稀释至1 ng/μL。以稀释后的基因组DNA为模板,使用带Barcode的特异引物及PCR预混液进行高保真PCR扩增,以确保扩增效率和准确性。PCR扩增:16S rRNA基因V4区引物(515F和806R)用于鉴定细菌多样性;18S rRNA基因V4区引物(528F和706R)可广谱检测包括真菌、原生生物、藻类等在内的真核微生物类群,适用于群落组成概览分析;ITS1区引物(ITS5-1737F和ITS2-2043R)为真菌物种鉴定常用DNA条形码,对真菌物种具有更高分辨能力。18S rRNA基因V4区与ITS1区联用可实现对样本中真核微生物的全面覆盖与精准鉴定,为后续差异分析和功能预测提供可靠的分类学基础。
1.3.4 PCR产物的混样和纯化
PCR产物经2%琼脂糖凝胶电泳检测合格后,进行磁珠纯化及酶标法定量,按各样本PCR产物浓度进行等量混合,充分混匀后再次电泳验证,使用凝胶回收试剂盒对目的条带进行回收纯化。
1.3.5 文库构建和上机测序
使用文库构建试剂盒构建测序文库,所建文库经Qubit荧光定量及PCR定量双重验证合格后,于Illumina NovaSeq 6000平台进行双端测序。
1.4 数据处理
采用Origin 2021软件绘图;采用SPSS Statistics 26.0软件进行方差分析,采用事后多重比较(Tukey检验)确定差异显著性,显著性水平为0.05。使用R软件的phyloseq和vegan包计算Chao1、Shannon、Simpson、ACE指数;使用R软件的phyloseq软件包绘制主坐标分析(principal coordinates analysis,PCoA)图;利用R软件对组间差异显著的物种进行t检验并作图;利用R 3.5.1软件和WGCNA 包(v1.69)进行Spearman相关性分析并采用corrplot 0.92绘制热图。
2 结果与分析
2.1 HD曲仓与LD曲仓环境参数
由图2可知,HD曲仓的温度变化呈先降后升再降的波动趋势,而LD曲仓温度则呈先升后降的趋势。具体而言,HD曲仓温度由s1阶段的34.1 ℃降至s2阶段的25.2 ℃,随后回升至s3阶段的31.9 ℃,最终在s4阶段降至15.4 ℃。相比之下,LD曲仓温度从s1阶段的20.7 ℃升至s3阶段的24.5 ℃,之后在s4阶段降至5.1 ℃。各阶段LD曲仓温度均低于同期HD曲仓。这一温度差异可能与曲仓的建筑布局有关:HD曲仓位于楼层式建筑的中间层,受外界气温干扰较小;而LD曲仓位于平房式建筑外侧,散热面积较大,更易受外界昼夜及季节温差的 影响[13]。
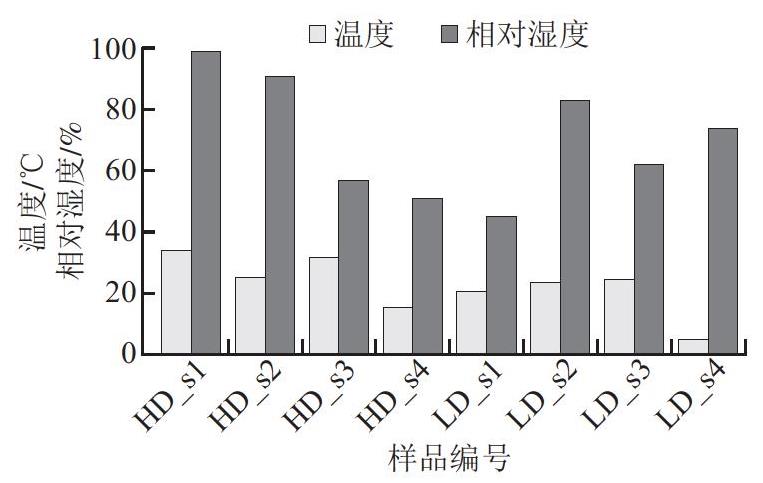
图2 高品质与低品质曲仓温度和相对湿度变化
Fig.2 Changes in temperature and relative humidity in HD and LD Qu warehouses
HD曲仓相对湿度持续下降,从s1阶段的99%逐步降至s4阶段的51%;而LD曲仓相对湿度波动明显,由s1阶段的45%升至s2阶段的83%,随后在s3阶段降至62%,最终在s4阶段回升至74%。需要说明的是,建筑布局并非决定大曲品质的唯一因素,温湿度控制、翻仓操作及微生物群落演替等因素共同参与并影响大曲品质的形成[14-15]。
曲仓内的温度与相对湿度是影响高温大曲发酵品质的关键环境因素[16]。气象数据显示(https://xihe-energy.com/),s1~s4各采样阶段当地室外平均气温分别为11.7、8.3、7.1、0.6 ℃。在此条件下,曲仓内部仍能观测到明显的温度上升,其主要驱动力为大曲发酵过程微生物的旺盛代谢活动。微生物在大量繁殖及降解可溶性糖等底物的过程中释放生物热,热量在曲仓内持续累积,形成明显高于室外的仓内温度[17]。高温大曲发酵过程中热传递与水分迁移存在耦合关系,通常表现为温度较高的区域相对湿度偏低,而温度较低的区域相对湿度偏高的规律性分布。由于发酵时曲块内部温度通常维持在55~65 ℃之间,而曲仓空气温度相对较低,这使得空气中更易保持较高的相对湿度[16]。
2.2 HD曲仓与LD曲仓生物气溶胶微生物群落结构
2.2.1 生物气溶胶微生物α-多样性分析
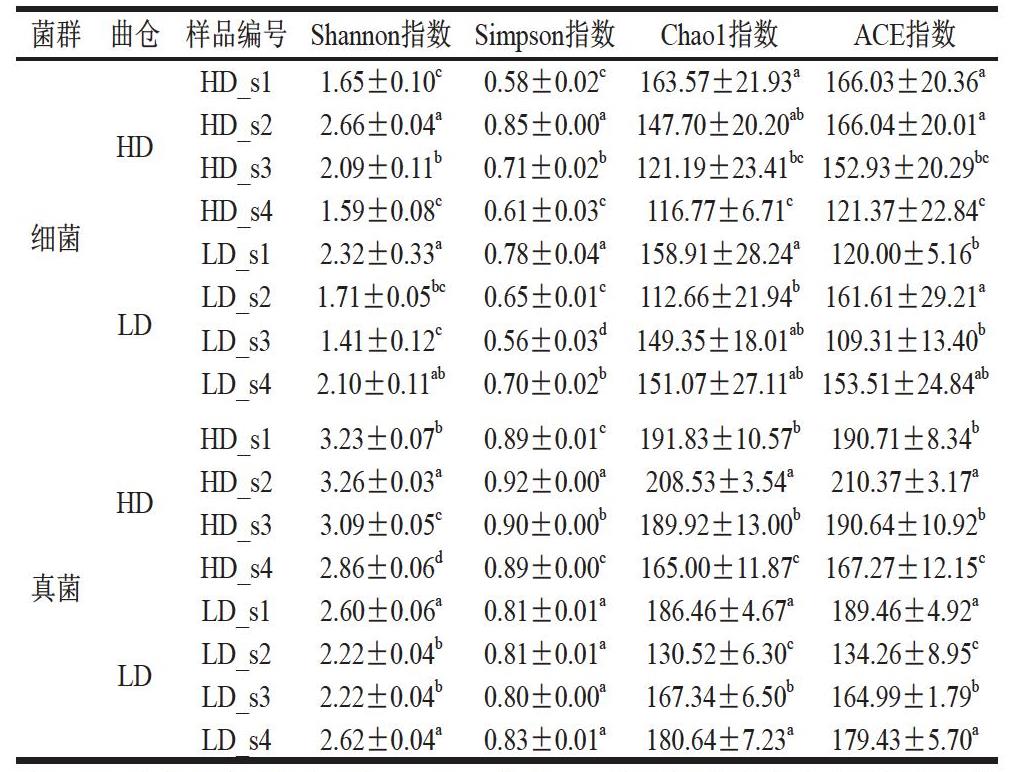
Chao1、ACE指数用于评估微生物群落物种丰富度,Shannon指数与Simpson指数则共同表征微生物群落的多样性与均匀度。由表1可知,HD曲仓生物气溶胶中,细菌与真菌群落的Shannon指数和Simpson指数均在s2阶段达到峰值,然后随发酵进程逐步下降;真菌群落的Chao1与ACE指数变化规律与此一致,同样在s2阶段达到最高值。与之不同,细菌群落的Chao1与ACE指数在发酵初期(s1~s2阶段)维持较高水平,其中Chao1指数在s1阶段最高,ACE指数在s1与s2阶段无显著差异,二者均随发酵进程持续下降至s4阶段。这表明翻仓操作可通过扰动促进生物气溶胶的扩散与迁移,提升曲仓内微生物群落的多样性,但对细菌物种丰富度无明显提升作用[8]。在LD曲仓中,生物气溶胶细菌群落的Shannon、Simpson、Chao1指数,以及真菌群落的Shannon、Chao1、ACE指数均整体呈现先降低后升高的趋势,具体表现为s1和s4阶段数值较高,s2和s3阶段显著降低。其中细菌群落ACE指数呈现出不同的波动规律:s1到s2阶段显著上升,s2到s3阶段显著下降,s3到s4阶段有所回升,整体呈“升-降-升”的波动特征,这可能与翻仓操作扰动引发的周期性物种迁入有关。真菌群落Simpson指数在各发酵阶段间无显著差异,整体维持在0.80~0.83的稳定水平。
表1 高品质与低品质曲仓不同发酵阶段生物气溶胶微生物α-多样性指数
Table1 α-Diversity indices of bioaerosol microorganisms in HD and LD Qu warehouses at different fermentation stages
菌群曲仓样品编号Shannon指数Simpson指数Chao1指数ACE指数HDs11.65±0.10c0.58±0.02c163.57±21.93a166.03±20.36a_HDs22.66±0.04a0.85±0.00a147.70±20.20ab166.04±20.01aHDHD_s32.09±0.11b0.71±0.02b121.19±23.41bc152.93±20.29bc_HDs41.59±0.08c0.61±0.03c116.77±6.71c121.37±22.84c细菌LD_s12.32±0.33a0.78±0.04a158.91±28.24a120.00±5.16b_LDs21.71±0.05bc0.65±0.01c112.66±21.94b161.61±29.21aLDLD_s31.41±0.12c0.56±0.03d149.35±18.01ab109.31±13.40b_LDs42.10±0.11ab0.70±0.02b151.07±27.11ab153.51±24.84ab_HDs13.23±0.07b0.89±0.01c191.83±10.57b190.71±8.34b_HDs23.26±0.03a0.92±0.00a208.53±3.54a210.37±3.17aHDHD_s33.09±0.05c0.90±0.00b189.92±13.00b190.64±10.92b_真菌HLDD_ss4122..6860±±00..0066da00..8891±±00..0001ca116856.0.406±±141.6.877ac116879.2.476±±142.9.125ac_LDs22.22±0.04b0.81±0.01a130.52±6.30c134.26±8.95cLDLD_s32.22±0.04b0.80±0.00a167.34±6.50b164.99±1.79b_LDs42.62±0.04a0.83±0.01a180.64±7.23a179.43±5.70a_
注:同列小写字母不同表示同一曲仓、不同发酵阶段之间差异显著(P<0.05)。
长时间地暴露于环境胁迫会筛选出更具抗性的物种,使群落向更耐胁迫的类群倾斜。当面临严重环境干扰时,预先暴露于胁迫的群落比未经暴露的群落更能抵抗物种丰富度损失[18]。在HD曲仓中,s1阶段即处于较高温度环境(34.1 ℃),其微生物群落已预适应了这一环境。当翻仓操作引入的环境扰动强度适中时,这些预适应的群落展现出较高的抵抗力,且翻仓带来的温湿度变化拓宽了嗜热微生物的生态位,从而促进新物种的迁移与共存,因此s2阶段多样性显著升高。这一结果与丁泽等[10]的研究结果一致,翻仓操作导致高温大曲中Virgibacillus、Thermoascus等嗜热菌属丰度增加,促进微生物多样性提升。相比之下,LD曲仓在s1阶段时温度较低(20.7 ℃),其微生物群落未预适应后续的剧烈环境变化。发酵开始后温度和相对湿度增加,形成高强度环境胁迫,导致敏感物种大量消亡,群落多样性在s2和s3阶段降低。已有研究证实,温湿度变化速率越快,确定性过程越主导群落组装,环境过滤作用越强,多样性受抑制越明显[19]。
2.2.2 生物气溶胶微生物β-多样性
基于Bray-Curtis距离对细菌和真菌群落进行PCoA,并结合Adonis检验进行统计评估。由图3可知,HD曲仓与LD曲仓的生物气溶胶微生物群落结构存在显著分离。Adonis检验显示,细菌(R2=0.945、P=0.001)和真菌(R2=0.964、P=0.001)组间差异均极显著。两类样品在坐标空间中呈现出明显的聚类分离,能直观反映其群落结构的离散性。其中,细菌群落PCoA得分图的前2轴(PCo1与PCo2)分别解释53.60%和32.03%的变异,真菌群落PCoA得分图的前2轴则分别解释46.65%和20.85%的变异。值得注意的是,细菌群落的聚类分离程度比真菌更为明显,这表明细菌群落对环境因素的波动可能更为敏感。一种可能的解释是,真菌能够通过释放孢子进行长距离迁移,从而能够在一定程度上缓冲局部环境变化的影响[20],两类曲仓环境因素差异可能是塑造曲仓生物气溶胶微生物群落β-多样性特征的重要因素[21]。
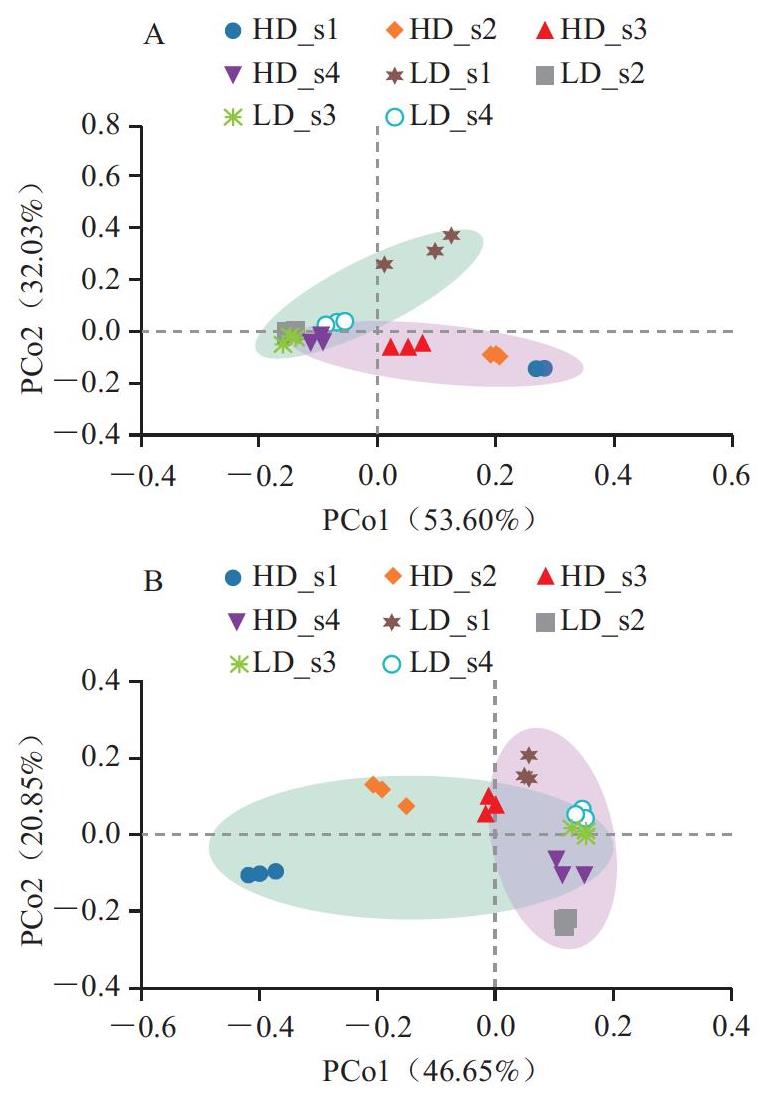
图3 高品质与低品质曲仓不同发酵阶段生物气溶胶细菌(A)和真菌(B) β-多样性PCoA得分图
Fig.3 Principal coordinate analysis score plots of β-diversity of bioaerosol bacteria (A) and fungi (B) in HD and LD Qu warehouses at different fermentation stages
2.2.3 生物气溶胶细菌群落组成
由图4A、B可知,放线菌门(Actinobacteria)在HD曲仓与LD曲仓生物气溶胶细菌群落的4个发酵阶段(s1~s4)占据主导地位,厚壁菌门(Firmicutes)在HD曲仓生物气溶胶中的相对丰度随着发酵的进行先升高后逐渐降低,在s2阶段达到最高(约50%)。在LD曲仓生物气溶胶中,其仅在s1阶段有较高的相对丰度。厚壁菌门在HD曲仓的s2阶段明显增殖可能是由HD_s2阶段的高湿环境引起。
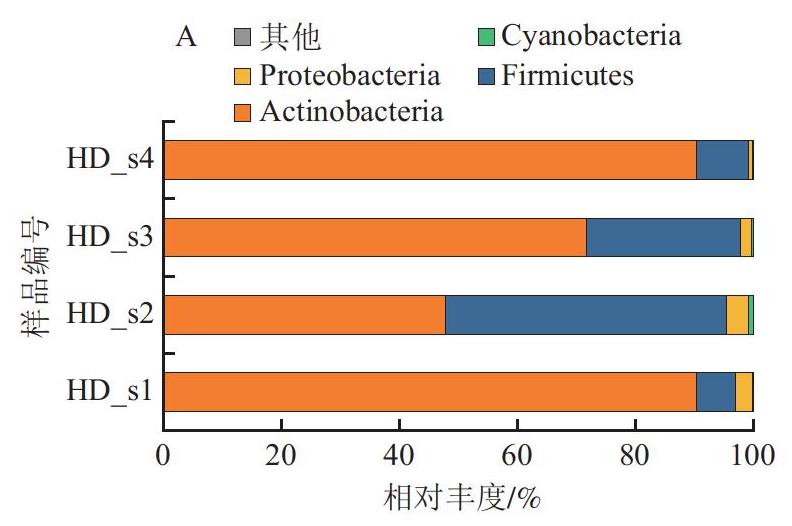
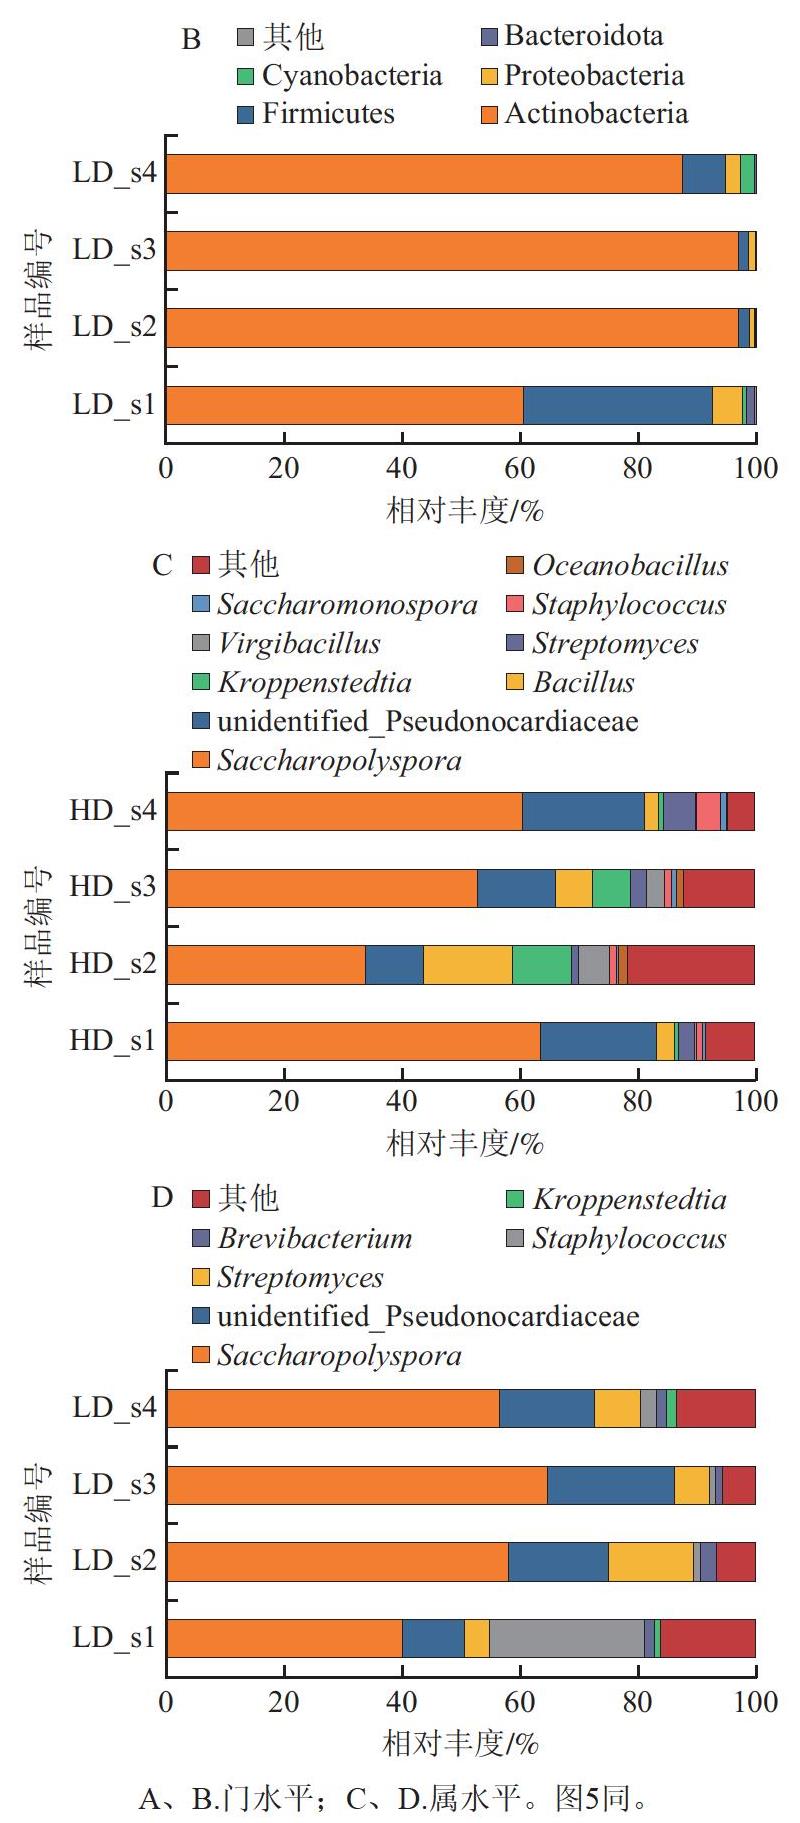
图4 高品质曲仓与低品质曲仓不同发酵阶段生物气溶胶细菌群落组成
Fig.4 Changes in bacterial community composition of bioaerosols in HD and LD Qu warehouses at different fermentation stages
由图4C、D可知,2个曲仓的细菌群落结构均以糖多孢菌属(Saccharopolyspora)和unidentified_Pseudonocardiaceae为主要优势细菌属。HD曲仓中芽孢杆菌属(Bacillus)与克罗彭斯特菌属(Kroppenstedtia)相对丰度在s2阶段明显增加:芽孢杆菌属相对丰度由s1的3.06%升高至s2的15.13%,随后在s4下降至2.30%;克罗彭斯特菌属相对丰度由s1的0.64%升至s2的10.06%,s3仍维持在6.41%,至s4降至0.85%。此外,葡萄球菌属(Staphylococcus)相对丰度在HD曲仓的s4阶段达4.02%,明显高于前3个阶段。LD曲仓中葡萄球菌属相对丰度在s1阶段较高(26.27%),随后在s2、s3、s4阶段分别降至1.33%、0.93%和2.63%。同时,短杆菌属(Brevibacterium)在LD曲仓所有阶段均被检出(s1:1.75%、s2:2.67%、s3:1.13%、s4:1.71%),而在HD曲仓中几乎未被检出。HD曲仓与LD曲仓的细菌群落比较显示,芽孢杆菌属、克罗彭斯特菌属、葡萄球菌属及短杆菌属相对丰度在两曲仓之间存在显著或极显著差异(P<0.05、P<0.01)。枝芽孢菌属(Virgibacillus)、海洋芽孢杆菌属(Oceanobacillus)等菌属仅出现在HD曲仓样品中。研究表明,芽孢杆菌属、克罗彭斯特菌属等细菌属为贵州、山东和湖北省产区高温大曲中的核心产香功能微生物群,可促进各种氨基酸和香气化合物的代谢[21-22]。
报道显示,刺糖多孢菌(S. spinosa)通过需氧发酵产生的大环内酯类次级代谢物多杀菌素具有高杀虫活性,而高温大曲的发酵和储存过程易受害虫侵扰,导致质量受损和等级下降,这为高温大曲病虫害微生物防治提供了一个新的思路[23]。Wang Yurong等[24]研究表明,芽孢杆菌属和克罗彭斯特菌属均表现出较强的环境适应性,在高温和pH值波动等相对极端的条件下依旧能保持生长和新陈代谢,推测这2种菌属相对丰度差异可能与环境温度变化有关。克罗彭斯特菌属能够产生各种参与大分子分解的酶[25];芽孢杆菌属分泌水解酶,将淀粉和蛋白质转化为葡萄糖和氨基酸,同时产生风味化合物前体,为微生物生长和风味化合物的合成提供前体物质[26];海洋芽孢杆菌的主要代谢产物包括吡嗪类化合物,此外还能代谢产生愈创木酚、2,3-丁二醇、苯甲醇等风味物质[27]。短杆菌属是黑色高温大曲的生物标志物,其对酶活性和风味形成具有重要贡献;而葡萄球菌属可以促进氨基酸和脂肪酸的生成[28]。
2.2.4 生物气溶胶真菌群落组成
由图5A、B可知,HD曲仓与LD曲仓各发酵阶段的生物气溶胶中子囊菌门(Ascomycota)占据绝对优势(相对丰度>90%),毛霉门(Mucoromycota)和担子菌门(Basidiomycota)仅占较小比例(相对丰度<5%),表明子囊菌门是HD曲仓与LD曲仓生物气溶胶主要优势真菌门。
由图5C、D可知,HD曲仓生物气溶胶中曲霉属(Aspergillus)、嗜热子囊菌属(Thermoascus)、嗜热丝孢菌属(Thermomyces)等主要优势真菌属在不同发酵阶段分布存在差异。HD曲仓生物气溶胶在s2和s3阶段富集更多嗜热子囊菌属、嗜热丝孢菌属和红曲霉属(Monascus)、布氏白粉菌属(Blumeria)、横梗霉属(Lichtheimia)和根毛霉属(Rhizomucor)等,曲霉属在s4阶段相对丰度最高;LD曲仓生物气溶胶中曲霉属、拟青霉属(Paecilomyces)、嗜热子囊菌属和嗜热丝孢菌属等主要优势真菌属在不同阶段存在特异性分布:LD曲仓生物气溶胶在s1、s3和s4阶段富集更多的拟青霉属,而嗜热子囊菌属和嗜热丝孢菌属仅在s1和s4阶段有少量富集。统计学分析表明,2个曲仓真菌群落结构的核心差异体现在:HD曲仓显著富集更多的嗜热子囊菌属、帚枝霉属(Sarocladium)、枝孢菌属(Cladosporium)等(P<0.05),而LD曲仓显著富集更多的拟青霉属(P<0.05)。
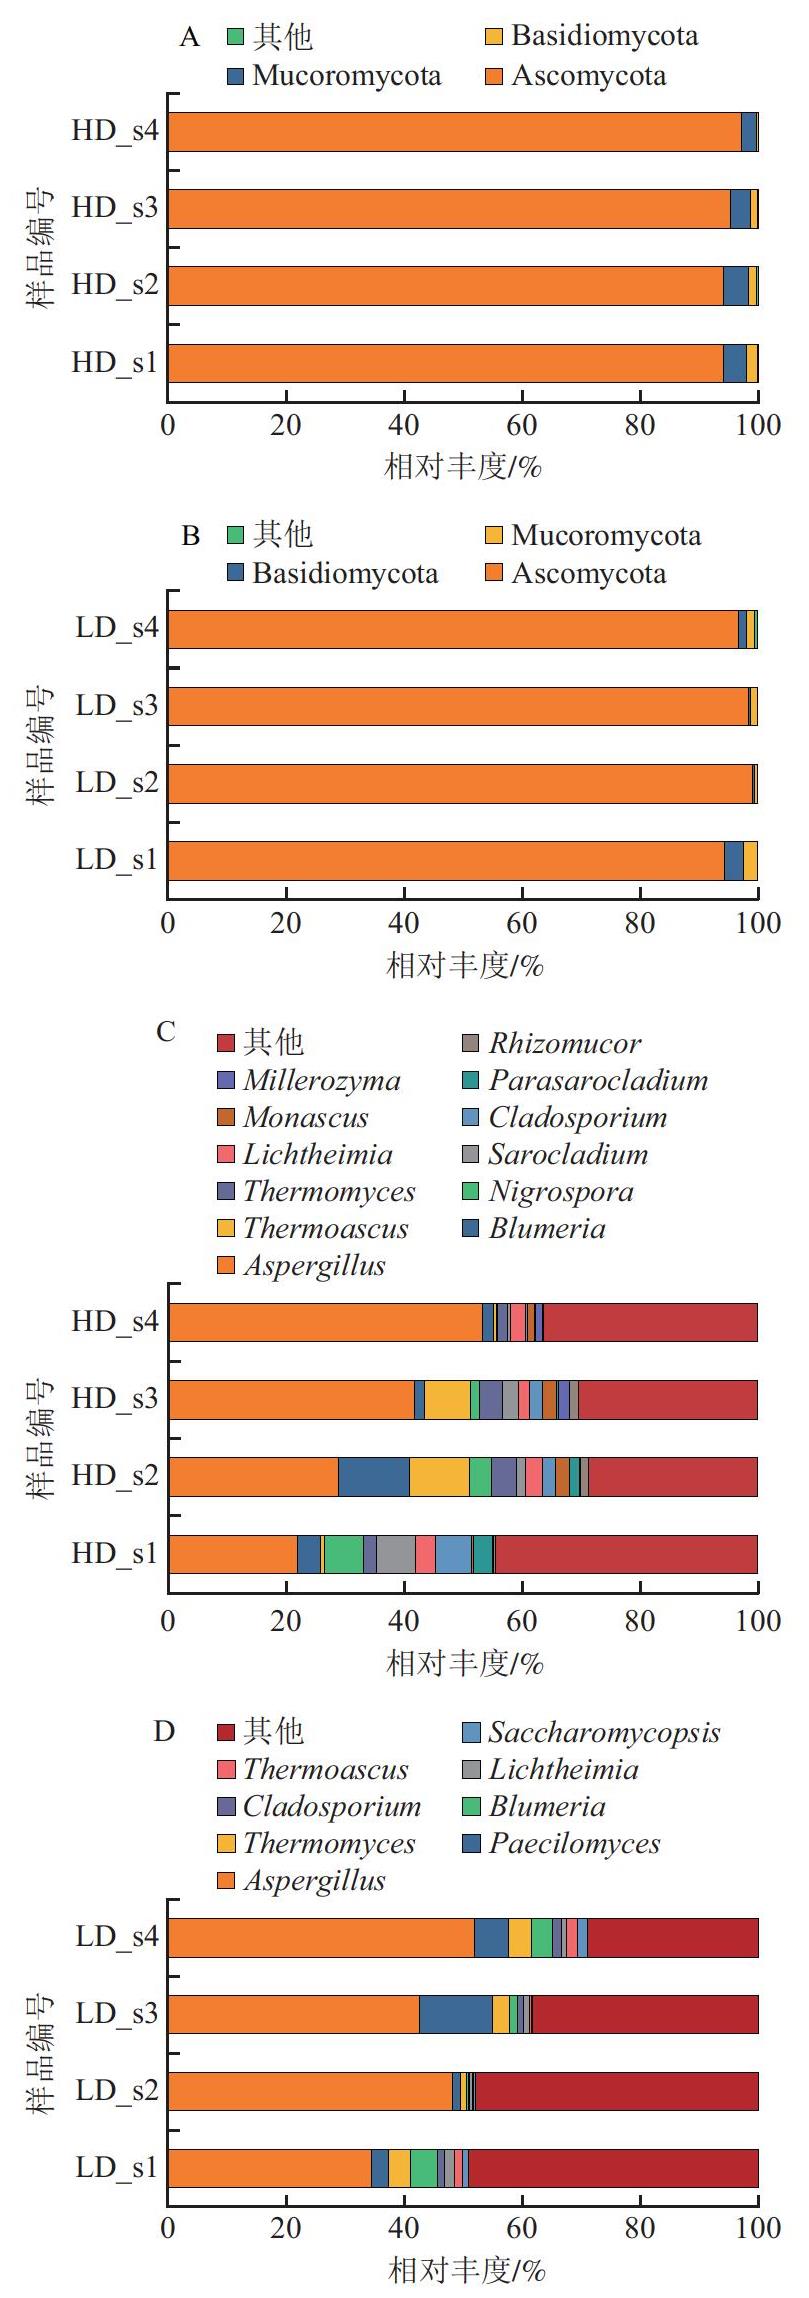
图5 高品质曲仓与低品质曲仓不同发酵阶段生物气溶胶 真菌群落组成变化
Fig.5 Changes in fungal community composition of bioaerosols in HD and LD Qu warehouses at different fermentation stages
Li Xuanchen等[11]利用SourceTracker进行源头追踪分析,通过量化高温大曲与生物气溶胶中真菌比例发现生物气溶胶是高温大曲中真菌定殖的主要外部来源。Zhu Chutian等[22]通过分析7个省份的高温大曲发现,嗜热子囊菌属、嗜热丝孢菌属、红曲霉属等菌属是遵义及毕节高温大曲的优势真菌。嗜热子囊菌属和嗜热丝孢菌属能产生淀粉酶、葡萄糖淀粉酶、葡萄糖苷酶和脂肪酶等多种酶类,且该类真菌在大曲高温阶段占据生长优势,能够促进美拉德反应和焦糖化反应,生成黑色或深褐色化合物,对高温大曲特有功能的形成具有重要作用[29]。
2.3 HD曲仓与LD曲仓气溶胶差异微生物
基于t检验分析筛选HD曲仓与LD曲仓发酵过程中气溶胶的差异微生物。由图6A可知,HD曲仓与LD曲仓生物气溶胶存在显著的细菌群落分异。芽孢杆菌属(Bacillus)在HD曲仓生物气溶胶中的相对丰度显著高于LD曲仓。芽孢杆菌属为白酒生产中的主要功能菌,在产生各种风味化合物(如2,3-丁二醇和吡嗪类物质)中起着至关重要的作用[24];除此之外,糖单孢菌属(Saccharomonospora)、诺卡菌属(Nocardiopsis)等菌属均在HD曲仓中呈现显著丰度优势,但二者在2个曲仓生物气溶胶中相对丰度均较低;与之相反,短杆菌属和链霉菌属(Streptomyces)在LD曲仓生物气溶胶中的相对丰度显著高于HD曲仓。链霉菌属是白酒中最常见且最严重的有害污染微生物,能够产生土味素,导致白酒产生土霉味[30];而短杆菌属可降低白酒中的尿素和氨基甲酸乙酯等有害副产物[31]。
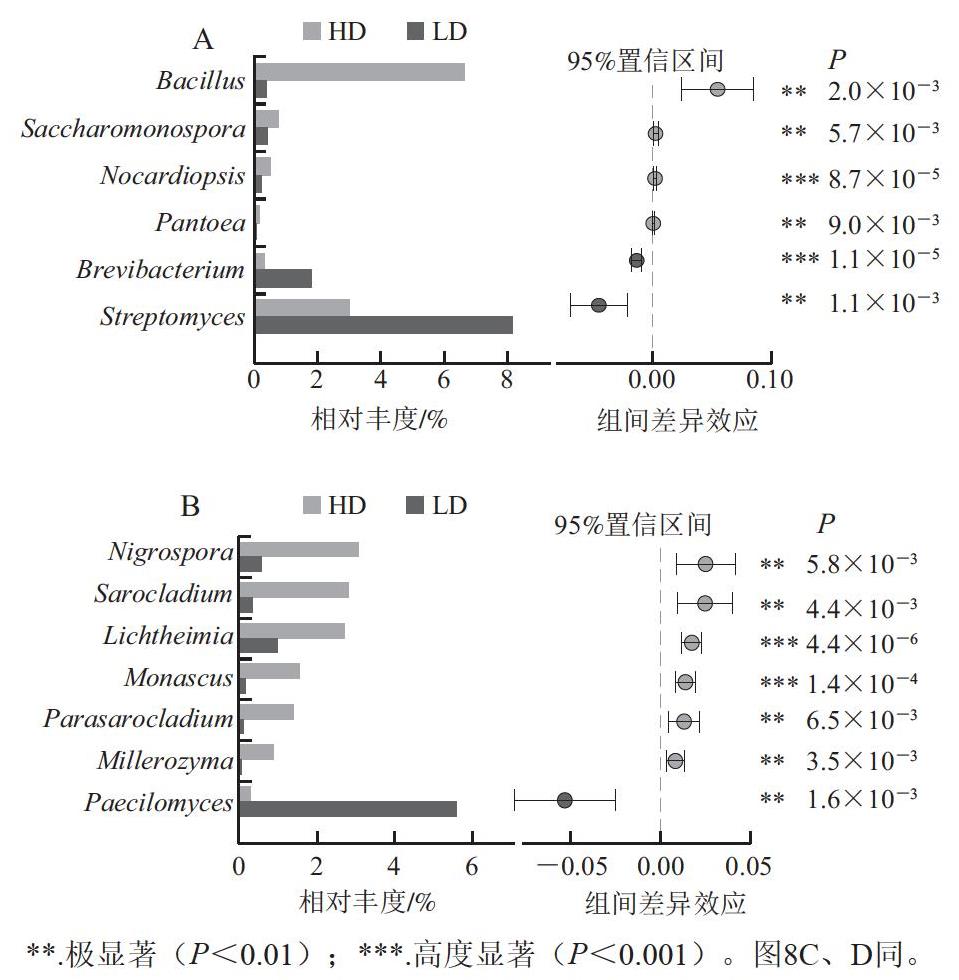
图6 高品质曲仓与低品质曲仓生物气溶胶细菌(A)和真菌(B)差异物种效应森林图
Fig.6 Forest plots of the effects of differential species of bioaerosol bacteria (A) and fungi (B) in HD and LD Qu warehouses
由图6B可知,黑孢霉属(Nigrospora)、帚枝霉属(Sarocladium)、横梗霉属(Lichtheimia)、红曲霉属(Monascus)、近帚枝霉属(Parasarocladium)、Millerozyma均在HD曲仓生物气溶胶中呈现显著丰度优势,其中红曲霉属(Monascus)是典型的产色素与酯化酶菌属,对高温大曲的色泽和风味物质的酯化过程具有关键调控作用,其丰度差异可能直接塑造HD曲仓与LD曲仓高温大曲的感官品质差异[32];此外,横梗霉属(Lichtheimia)是高温大曲的优势真菌属之一[33];拟青霉属(Paecilomyces)在LD曲仓生物气溶胶中相对丰度显著高于HD曲仓。拟青霉属可以分泌α-淀粉酶、纤维素酶和几丁质酶等耐热酶[33],能够参与大曲原料多糖与几丁质类物质的降解,对曲仓环境下底物分解及大曲酶系构建具有潜在贡献。
2.4 HD曲仓与LD曲仓生物气溶胶优势微生物及关键 环境驱动因素相关性
采用Spearman相关性分析对优势细菌、真菌属与温度、相对湿度进行相关性分析。由图7A可知,芽孢杆菌属(Bacillus)、克罗彭斯特菌属(Kroppenstedtia)、枝芽孢杆菌属(Virgibacillus)、海洋芽孢杆菌属(Oceanobacillus)与温度呈正相关;糖多孢菌属(Saccharopolyspora)、葡萄球菌属(Staphylococcus)和短杆菌属(Brevibacterium)等与温度呈负相关,芽孢杆菌属(Bacillus)、克罗彭斯特菌属(Kroppenstedtia)、枝芽孢杆菌属(Virgibacillus)、海洋芽孢杆菌属(Oceanobacillus)与相对湿度呈正相关;葡萄球菌属(Staphylococcus)与相对湿度呈负相关。
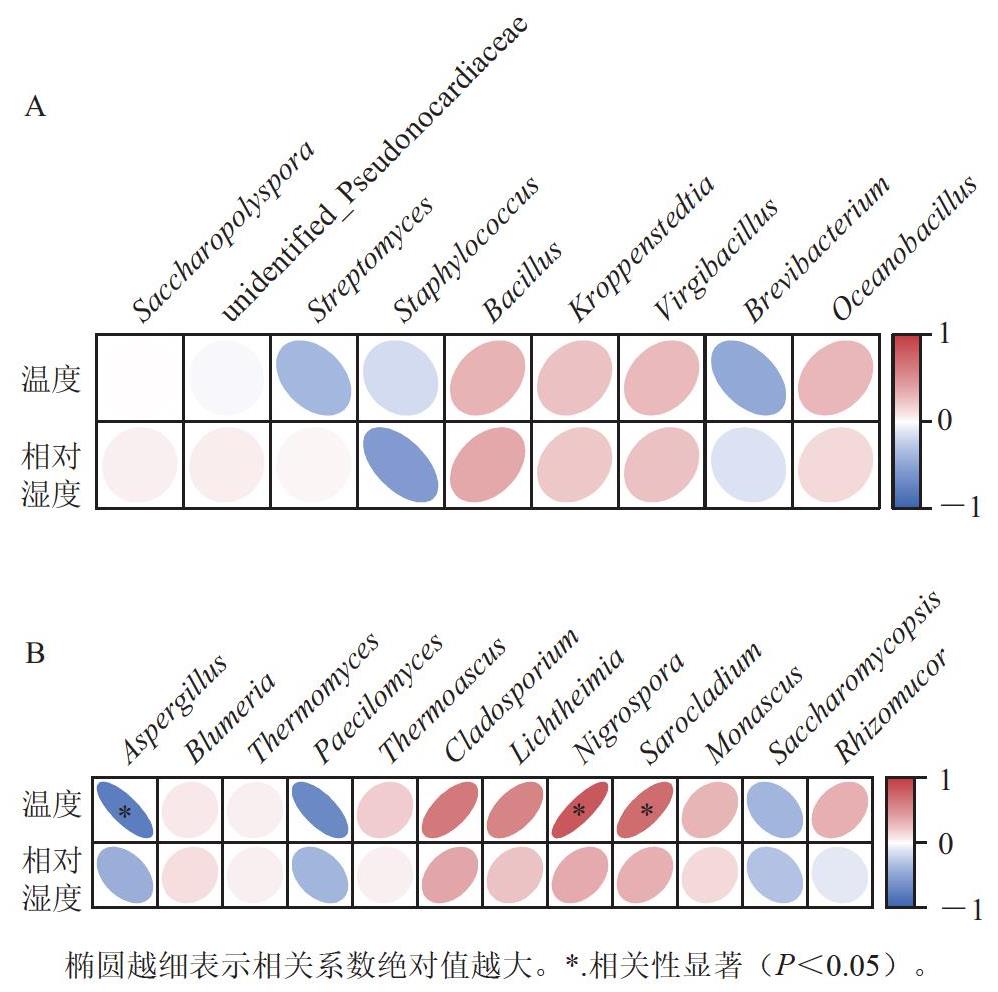
图7 高品质曲仓与低品质曲仓生物气溶胶优势细菌(A)、真菌(B)与环境因素相关性热图
Fig.7 Correlation heatmap of dominant bacteria (A) and fungi (B) in bioaerosols with environmental factors in HD and LD Qu warehouses
由图7B可知,优势真菌属与温湿度的相关性分析显示,嗜热子囊菌属(Thermoascus)、横梗霉 属(Lichtheimia)和黑孢霉属(Nigrospora)等优势真菌属与温度呈正相关,其中黑孢霉属(Nigrospora)、帚枝霉属(Sarocladium)与温度呈显著正相关(P<0.05);曲霉属(Aspergillus)、拟青霉属(Paecilomyces)、复膜孢酵母属(Saccharomycopsis)与温度呈负相关。嗜热子囊菌属(Thermoascus)、横梗霉属(Lichtheimia)等优势真菌属与相对湿度呈正相关;曲霉属(Aspergillus)、拟青霉属(Paecilomyces)、复膜孢酵母属(Saccharomycopsis)与相对湿度呈负相关。
2.5 HD曲仓与LD曲仓生物气溶胶细菌和真菌群落功能预测
为解析曲仓生物气溶胶微生物在高温大曲发酵中对风味代谢与营养利用的潜在作用,采用PICRUSt2与FUNGuild分别对细菌与真菌群落的功能潜力进行预测。由图8A可知,与蛋白质、氨基酸、碳水化合物、辅因子、维生素及能量代谢等相关的通路在HD曲仓与LD曲仓生物气溶胶中均呈现相对富集。真菌营养型分析(图8B)表明,其功能基因主要富集于未定义的腐生营养型及植物病原体型类群。微生物功能谱的差异分析进一步揭示,HD曲仓与LD曲仓生物气溶胶间共有12条通路存在显著差异(图8C、D)。其中,涉及未分类的信号转导与细胞过程及细胞运动的细菌通路在HD曲仓中表达水平更高,提示其微生物群落可能对环境变化具有更强的感知与响应能力,也说明HD曲仓中的微生物群落可能具有较强的生长代谢潜力和更替速率[34]。此外,在HD曲仓中,未定义的腐生营养型真菌呈现高丰度,这可能通过高效降解复杂底物、协同调控微生态促进产品品质提升。这一规律与堆肥过程中腐生菌富集驱动有机物转化与品质优化的机制[35]相一致。相比之下,在LD曲仓生物气溶胶中,功能未知营养型真菌的占比更高,这在一定程度上反映了曲仓微生态的功能失衡。由于此类真菌的功能尚不明确,其代谢活动难以有效支撑酿造所需的特定生化进程,因而可能成为大曲品质下滑的潜在微生物学表征[35]。
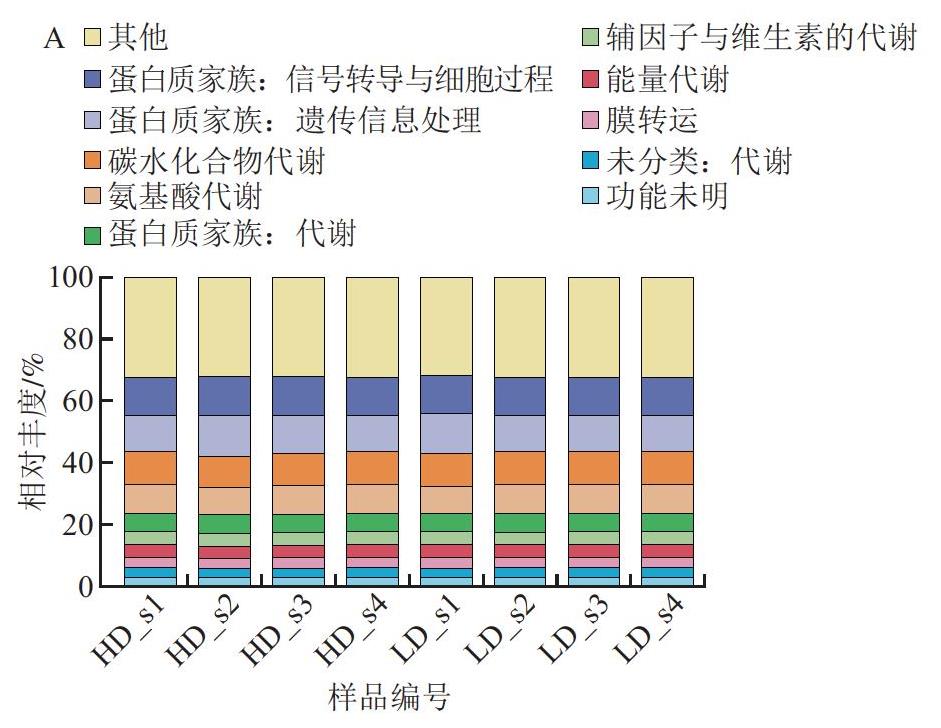
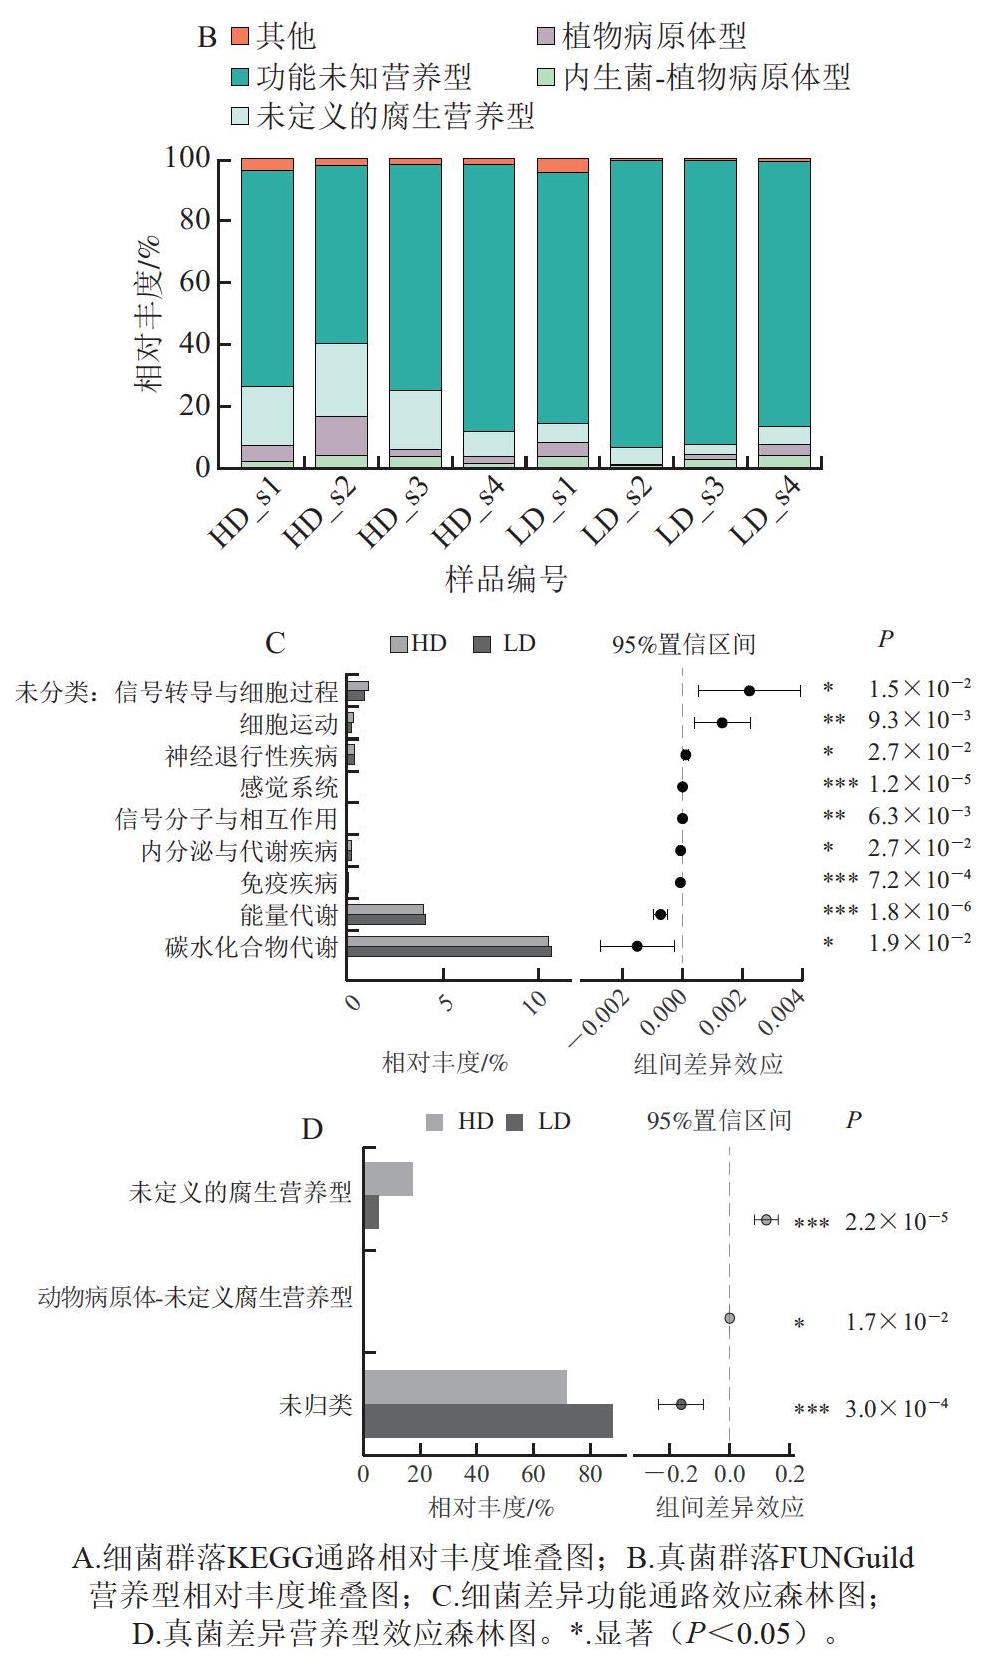
图8 高品质曲仓与低品质曲仓发酵过程中生物气溶胶 微生物群落的功能特征
Fig.8 Functional characteristics of bioaerosol microbial communities in HD and LD Qu warehouses during fermentation
3 结 论
本研究比较了高、低品质高温大曲发酵过程中曲仓环境参数、生物气溶胶微生物群落结构、环境-微生物互作及功能特征。结果表明,HD曲仓与LD曲仓气溶胶微生物群落结构差异显著,HD富集更多嗜热微生物(如Bacillus、Kroppenstedtia、Oceanobacillus、Virgibacillus、Thermoascus、Thermomyces等),这些类群多与高温大曲发酵相关,参与水解酶产生及酱香、烘焙香形成[29,36-38]; LD则富集Brevibacterium、Streptomyces和Paecilomyces等,其中Streptomyces可能产生土味素等不良风味[39-41]。Spearman相关分析显示,温湿度是驱动嗜热优势菌群定殖的关键环境因子。功能预测表明,HD曲仓气溶胶富含腐生营养型真菌及信号转导相关通路,底物降解与环境响应潜力更强;LD曲仓中功能未知真菌占比较高,可能存在微生态功能失衡。本研究揭示了不同品质高温大曲曲仓气溶胶微生物的演替规律及环境驱动因素,但气溶胶微生物与大曲品质的因果关系尚需进一步验证,未来可通过回补差异微生物至LD曲仓开展深入探究。
[1] Wei Yuhua, Wen Zhang, Yao Shangjie, et al. Tempo-spatial dynamics of physicochemical properties and microbial communities in hightemperature Daqu during the fermentation process[J]. Food Chemistry:X, 2025, 29: 102815. DOI:10.1016/j.fochx.2025.102815.
[2] He Yifan, Qiao Minsha, Zhang Hui, et al. Microbial community,metabolic, and flavor differences among high-temperature Daqu with varying Douchi aroma intensities: a comprehensive metagenomic and metabolomic analysis[J]. Food Chemistry: X, 2025, 32: 103265.DOI:10.1016/j.fochx.2025.103265.
[3] 唐佳代, 王龙, 赵益梅, 等. 多组学解析酱香型大曲空间异质性[J].食品科学, 2025, 46(16): 126-134. DOI:10.7506/spkx1002-6630-20250221-094.
[4] Kang Jiamu, Chen Xiaoxue, Han Beizhong, et al. Insights into the bacterial, fungal, and phage communities and volatile profiles in different types of Daqu[J]. Food Research International, 2022, 158:111488. DOI:10.1016/j.foodres.2022.111488.
[5] 唐慧芳, 兰小辉, 李硕, 等. 白酒大曲微生物溯源的研究进展[J].酿酒科技, 2025(11): 121-126. DOI:10.13746/j.njkj.2024298.
[6] Du Hai, Wang Xueshan, Zhang Yuhang, et al. Exploring the impacts of raw materials and environments on the microbiota in Chinese Daqu starter[J]. International Journal of Food Microbiology, 2019, 297: 32-40. DOI:10.1016/j.ijfoodmicro.2019.02.020.
[7] Lu Yuhan, Zhang Chengnan, Zhao He, et al. Effect of environmental microorganisms on fermentation microbial community of sauce-flavor Baijiu[J]. Foods, 2023, 12(1): 10. DOI:10.3390/foods12010010.
[8] Ge Jingyun, Gao Tong, Li Huili, et al. Bioaerosols from outdoor wastewater treatment facilities: dispersal behavior, exposure risks and protection strategies[J]. International Journal of Hygiene and Environmental Health, 2026, 271: 114702. DOI:10.1016/j.ijheh.2025.114702.
[9] Zhou Jianli, Li Xuanchen, Li S, et al. Airborne microorganisms and key environmental factors shaping their community patterns in the core production area of the Maotai-flavor Baijiu[J]. Science of the Total Environment, 2024, 912: 169010. DOI:10.1016/j.scitotenv.2023.169010.
[10] 丁泽, 陈曦, 李金洋, 等. 酱香型高温大曲制作过程中微生物群落演替规律与风味物质变化[J]. 食品科学, 2025, 46(11): 115-124.DOI:10.7506/spkx1002-6630-20241114-109.
[11] Li Xuanchen, Yang Xin, Luo Yuena, et al. Dynamics of microbial community and secondary pollutants in bioaerosols during the fermentation of Daqu[J]. Journal of Cleaner Production, 2025, 526:146668. DOI:10.1016/j.jclepro.2025.146668.
[12] 孙亮霞, 王淑珍, 林一心, 等. 不同等级中高温大曲理化性质、微生物群落结构及挥发性风味物质的研究[J]. 食品与发酵工业, 2025,51(24): 284-290. DOI:10.13995/j.cnki. 11-1802/ts.042410.
[13] Lee S, Jung S, Yoon S. Analysis of the relationship between microclimate and building energy loads based on apartment complex layout types[J]. Climate, 2025, 13(3): 53. DOI:10.3390/cli13030053.
[14] Wen Zhang, Wei Yuhua, Han Dayong, et al. Deciphering the role of traditional flipping crafts in medium-temperature Daqu fermentation:microbial succession and metabolic phenotypes[J]. Current Research in Food Science, 2025, 10: 101063. DOI:10.1016/j.crfs.2025.101063.
[15] Liang Feng, Ban Shibo, Huang Heqiang, et al. Predicting the effect of climatic factors on diversity of flavor compounds in Daqu fermentation[J]. LWT-Food Science and Technology, 2022, 169: 113984. DOI:10.1016/j.lwt.2022.113984.
[16] 白云松. 大曲发酵过程的曲房热湿传递数值模拟分析[D]. 宜宾:四川轻化工大学, 2020. DOI:10.27703/d.cnki.gsclg.2020.000018.
[17] 赵玉杰. 大曲固态发酵过程热量传递与控制研究[D]. 无锡: 江南大学, 2024. DOI:10.27169/d.cnki.gwqgu.2024.001077.
[18] Xu C C Y, Fugère V, Barbosa Da Costa N, et al. Pre-exposure to stress reduces loss of community and genetic diversity following severe environmental disturbance[J]. Current Biology, 2025, 35(5): 1061-1073.e4. DOI:10.1016/j.cub.2025.01.037.
[19] Zhou Yaojin, Liu Nian, Li Zijian, et al. The rate of change in temperature and humidity during the temperature increase period determines the microbial community structure and function of medium-high temperature Daqu[J]. Food Bioscience, 2025, 70: 106990. DOI:10.1016/j.fbio.2025.106990.
[20] Xue Feihong, Yang Ying, Zou Shichun, et al. Characterization of airborne bacteria and fungi at a land-sea transition site in Southern China[J]. Science of the Total Environment, 2022, 849: 157786. DOI:10.1016/j.scitotenv.2022.157786.
[21] Zhang Zhendong, Meng Yaolan, Wang Yurong, et al. Understanding the factors influencing high-temperature Daqu from different geographical regions[J]. Food Bioscience, 2024, 62: 105528.DOI:10.1016/j.fbio.2024.105528.
[22] Zhu Chutian, Cheng Yuxin, Shi Qili, et al. Metagenomic analyses reveal microbial communities and functional differences between Daqu from seven provinces[J]. Food Research International, 2023, 172: 113076. DOI:10.1016/j.foodres.2023.113076.
[23] Zhu Zirong, Cao Li, Xia Ziyuan, et al. CRISPRi-mediated multigene downregulating redirects the metabolic flux to spinosad biosynthesis in Saccharopolyspora spinosa[J]. Synthetic and Systems Biotechnology, 2025, 10(2): 583-592. DOI:10.1016/j.synbio.2025.02.010.
[24] Wang Yurong, Cai Wenchao, Wang Wenping, et al. Analysis of microbial diversity and functional differences in different types of high-temperature Daqu[J]. Food Science & Nutrition, 2021, 9(2): 1003-1016. DOI:10.1002/fsn3.2068.
[25] Tang Ping, Li Qingliang, Li Changwen, et al. Analysis and formation mechanism of key aroma compounds with ammonia-like off-flavors in Jiang-flavored high-temperature Daqu: substances composition and main microorganisms[J]. Food Bioscience, 2025, 73: 107656. DOI:10.1016/j.fbio.2025.107656.
[26] Luo Yunchuan, Liao Hui, Luo Yi, et al. Temperature-driven microbial assembly and flavor compound dynamics in high-temperature Daqu: adaptive co-evolution for efficient tetramethylpyrazine production[J]. International Journal of Food Microbiology, 2025, 441: 111325. DOI:10.1016/j.ijfoodmicro.2025.111325.
[27] Liu Xu, Fu Junjie, Shen Hanjun, et al. Oceanobacillus in hightemperature Daqu: taxonomic diversity, metabolic characteristics and biofortification effect[J]. Process Biochemistry, 2025, 150: 68-79.DOI:10.1016/j.procbio.2025.01.002.
[28] Huang Ying, Li Dong, Mu Yu, et al. Exploring the heterogeneity of community and function and correspondence of “species-enzymes” among three types of Daqu with different fermentation peaktemperature via high-throughput sequencing and metagenomics[J].Food Research International, 2024, 176: 113805. DOI:10.1016/j.foodres.2023.113805.
[29] Deng Ling, Mao Xiang, Liu Dan, et al. Comparative analysis of physicochemical properties and microbial composition in hightemperature Daqu with different colors[J]. Frontiers in Microbiology,2020, 11: 588117. DOI:10.3389/fmicb.2020.588117.
[30] Zhi Yan, Wu Qun, Du Hai, et al. Biocontrol of geosmin-producing Streptomyces spp. by two Bacillus strains from Chinese liquor[J].International Journal of Food Microbiology, 2016, 231: 1-9.DOI:10.1016/j.ijfoodmicro.2016.04.021.
[31] 王嘉慧, 王严庆, 李晓韩, 等. 浓香型酒醅中尿素降解菌的辨析及鉴定[J]. 食品工业科技, 2026, 47(2): 199-208. DOI:10.13386/j.issn1002-0306.2025010011.
[32] 李喆, 冯海燕, 何杰, 等. 酱香型红心曲品质分析及产红色素菌株筛选鉴定[J]. 中国酿造, 2025, 44(10): 111-118. DOI:10.11882/j.issn.0254-5071.2025.10.016.
[33] Ma Shiyuan, Li Yong, Chen Cong, et al. Metabolic interactions drive microbial community succession and functional expression of Nongxiangxing (strong-flavor) Daqu[J]. Journal of Advanced Research, 2026, 84: 109-122. DOI:10.1016/j.jare.2025.09.052.
[34] 刘文虎, 柴丽娟, 张立强, 等. 基于宏基因组学解析不同质量等级中温大曲微生物组的异质性[J]. 微生物学报, 2023, 63(11): 4383-4398.DOI:10.13343/j.cnki.wsxb.20230232.
[35] Peng Jing, Wang Ke, Yin Xiangbo, et al. Trophic mode and organics metabolic characteristic of fungal community in swine manure composting[J]. Frontiers of Environmental Science & Engineering,2019, 13(6): 93. DOI:10.1007/s11783-019-1177-5.
[36] Zhu Chutian, Wei Junlin, Yang Yong, et al. Regional fingerprint,enrichment and flavor contribution of Bacillus community in Daqu for Chinese Baijiu[J]. Food Research International, 2025, 211: 116460.DOI:10.1016/j.foodres.2025.116460.
[37] Niu Jialiang, Li Weiwei, Du Binghao, et al. Temporal heterogeneity of microbial communities and flavor metabolism during storage of high-temperature Daqu[J]. Food Chemistry, 2025, 464: 141577.DOI:10.1016/j.foodchem.2024.141577.
[38] Wu Mengyao, Luo Yi, Yao Yongqi, et al. Multidimensional analysis of wheat original crucial endogenous enzymes driving microbial communities metabolism during high-temperature Daqu fermentation[J]. International Journal of Food Microbiology, 2024,413: 110589. DOI:10.1016/j.ijfoodmicro.2024.110589.
[39] Yan Yi, Xing Xuan, Sun Zhanbin, et al. Brevibacterium renqingii sp.nov., isolated from the Daqu of Baijiu[J]. Archives of Microbiology,2021, 203(5): 2291-2296. DOI:10.1007/s00203-021-02212-x.
[40] 杨帆, 陈良强, 林琳, 等. 一株放线菌的分离鉴定及其代谢产物研究[J]. 酿酒科技, 2014(9): 42-44. DOI:10.13746/j.njkj.2014.0174.
[41] 程驰新笑, 贺子豪, 郭壮, 等. 高温大曲中葡萄球菌多样性解析及其分离株鉴定[J]. 中国酿造, 2024, 43(1): 57-62. DOI:10.11882/j.issn.0254-5071.2024.01.009.