高温大曲可赋予酱香型白酒独特的感官特性,直接影响其产量和质量[1]。高温大曲采用传统开放式固态堆叠发酵生产,背后蕴含着复杂的微生态系统[2]。随着微生物学与发酵工程学科的不断发展,高温大曲的相关研究逐步摆脱传统经验总结的局限,迈入系统化科学分析阶段,主要包括微生物分离与鉴定、发酵工艺参数标准化、大曲酶学特性解析等,这些研究虽有效明晰了高温大曲发酵的基础规律、提升了工艺可控性与稳定性,但对微生物群落的共生关系和代谢网络仍缺乏系统认知,且依赖纯培养技术导致大量未培养微生物的功能被忽视。
组学技术(如宏基因组学、转录组学、蛋白质组学、代谢组学等)的发展,为解析发酵食品潜在微生物机制提供了更深入的见解[3],弥补了可培养方法的局限性,如分析高温大曲的微生物组成与演变[4]、发酵机制[5]、品质评价[6]、风味形成机制[7]、工艺条件对高温大曲的综合影响[8]等。在最新的研究中,有学者提出曲组学概念[1],组学技术已然成为高温大曲的重要研究手段[9]。高通量测序、代谢组学及人工智能的应用,推动了高温大曲研究进入系统生物学时代[10]。
近年来,宏基因组学、代谢组学及人工智能的应用,逐步从微观层面揭示高温大曲发酵的科学本质,推动传统制曲工艺由经验驱动向精准化、智能化调控方向转型。目前已有诸多学者围绕大曲及发酵食品的相关研究开展综述总结:Chen Gu等[3]基于组学视角系统梳理了发酵食品微生物群落解析与功能表征的研究成果;Ali等[11]全面论述了大曲中的微生物及风味物质,并介绍了高通量测序在大曲微生物检测中的应用;Kang Jiamu等[12]综述了基于传统方法和组学技术研究酒曲微生物组的最新进展。现有综述多聚焦大曲通用研究、发酵食品微生物共性规律,鲜见针对性围绕高温大曲固态发酵机制展开系统梳理。因此,本文重点综述多组学技术在高温大曲固态发酵机制解析中的应用与研究进展,以期完善高温大曲发酵的微观理论体系。
1 组学技术在高温大曲固态发酵机制研究中的应用
宏基因组学通过环境DNA测序,揭示大曲中未培养微生物的基因资源,追踪发酵过程中微生物群落的动态变化。转录组学用于分析高温胁迫模式下的应激基因表达模式,研究酵母与霉菌在糖化阶段的协同转录调控。蛋白质组学用于鉴定高温发酵期的高丰度功能蛋白,解析其活性与温度、pH值的关系,探究磷酸化修饰、糖基化修饰对酶活性的调控作用。代谢组学通过气相色谱-质谱(gas chromatography-mass spectrometry,GC-MS)、液相色谱-质谱(liquid chromatography-massspectrometry,LC-MS)等技术解析挥发性与非挥发性物质的代谢谱,结合京都基因与基因组百科全书数据库关联关键代谢物与微生物功能,揭示其合成途径(表1)。
表1 多组学技术在高温大曲固态发酵机制研究中的应用
Table1 Application of multi-omics technologies in the study ofsolid-state fermentation mechanism of high-temperature Daqu
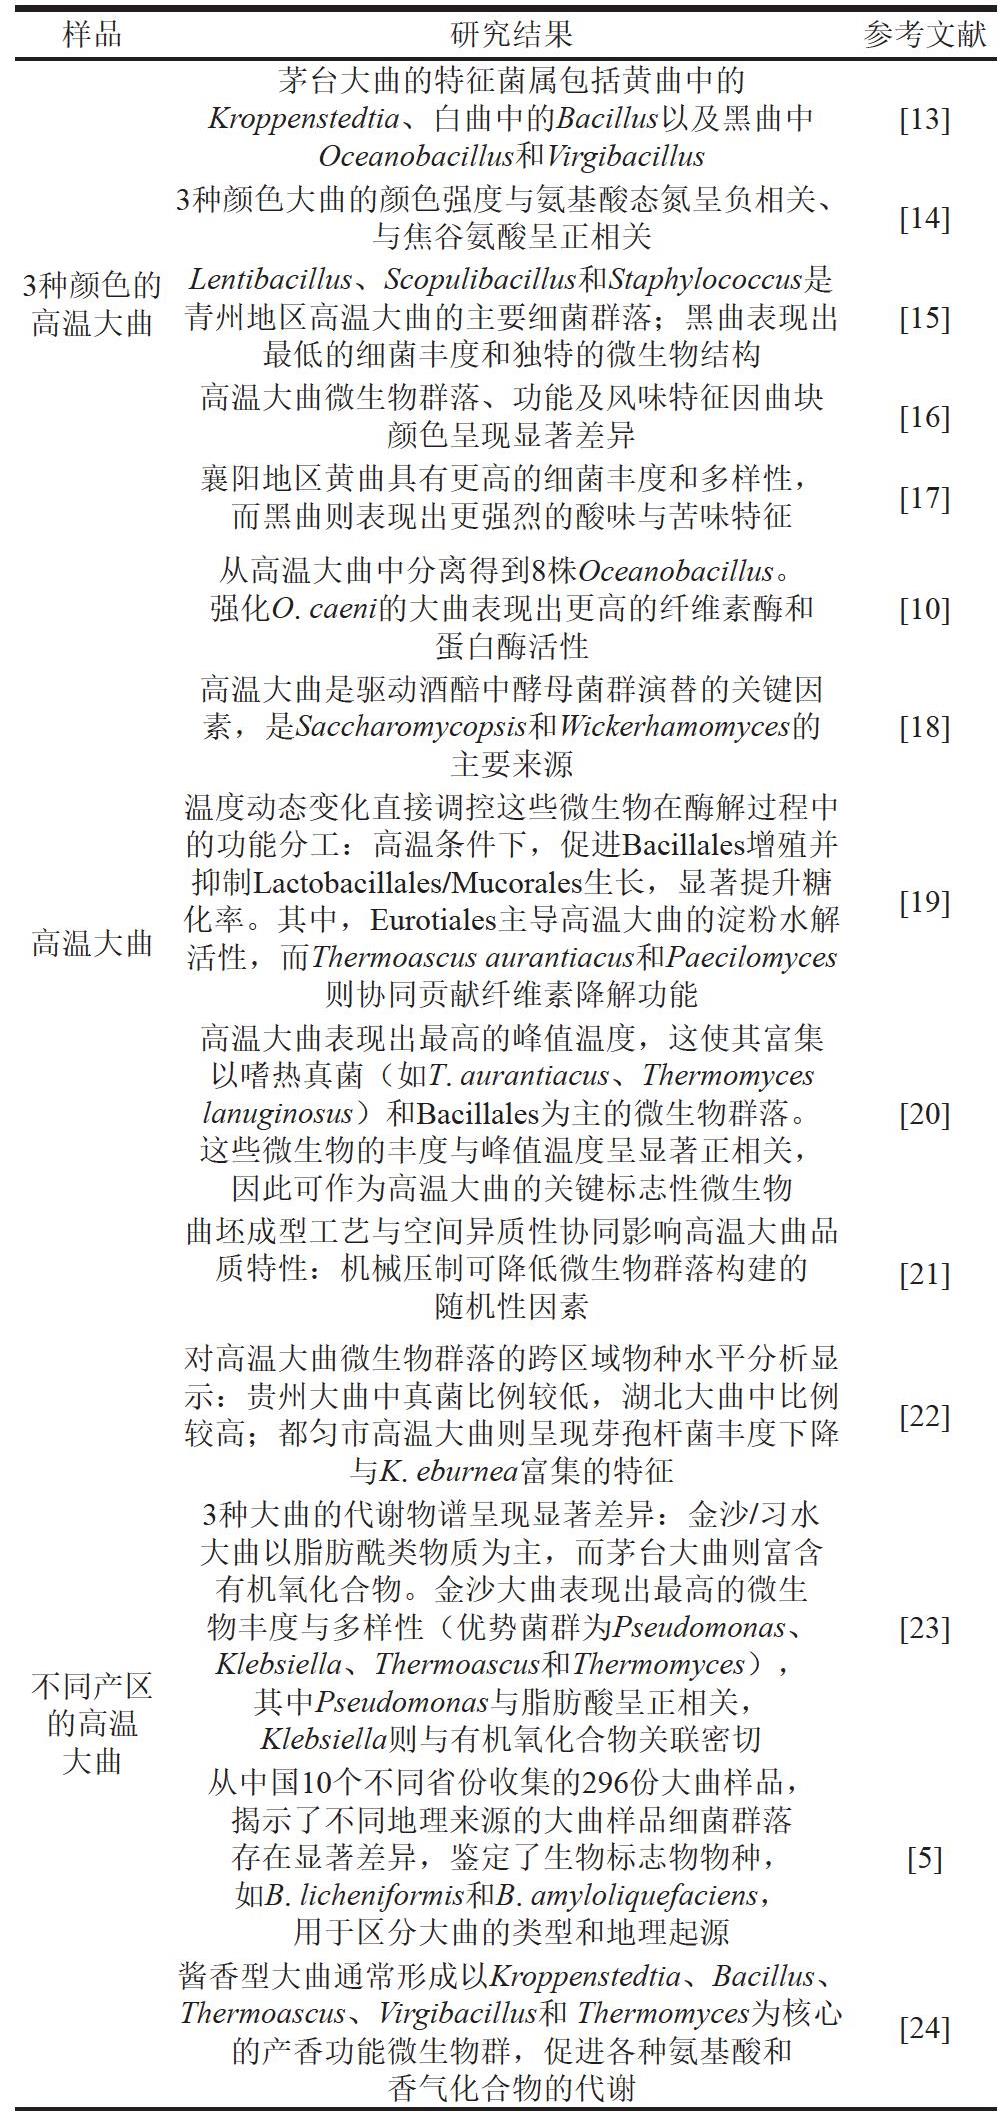
样品研究结果参考文献茅台大曲的特征菌属包括黄曲中的Kroppenstedtia、白曲中的Bacillus以及黑曲中[13]Oceanobacillus和Virgibacillus3种颜色大曲的与颜焦色谷强氨度酸与呈氨正基相酸关态氮呈负相关、[14]3种颜色的Lentibacillus、Scopulibacillus和Staphylococcus是高温大曲青州地区高温大曲的主要细菌群落;黑曲表现出[15]最低的细菌丰度和独特的微生物结构高温大曲微生颜物群色落呈现、功显著能及差风异味特征因曲块[16]襄而阳地黑区曲黄则表曲现具有出更更强高烈的细的酸菌丰味度与和苦味多样特性征,[17]从高温大曲中分离得到8株Oceanobacillus。强化O. caeni的大曲表现出更高的纤维素酶和[10]蛋白酶活性高温大曲是驱动酒醅中酵母菌群演替的关键因素,是Saccharomycopsis和Wickerhamomyces的[18]主要来源温度动态变化直接调控这些微生物在酶解过程中的功能分工:高温条件下,促进Bacillales增殖并高温大曲化活抑率性制。,La其而cto中Tbha,ecrimElluoarlaoestsci/auMlse uasc主uorra导anlet高isa生温cu长s大和,曲P显a的e著c淀il提o粉m升水yc糖解es[19]则协同贡献纤维素降解功能高温大曲表现出最高的峰值温度,这使其富集以嗜热真菌(如T. aurantiacus、Thermomyces lanuginosus)和Bacillales为主的微生物群落。[20]这些微生物的丰度与峰值温度呈显著正相关,因此可作为高温大曲的关键标志性微生物曲坯成型工艺与空间异质性协同影响高温大曲品质特性:机械压制可降低微生物群落构建的[21]随机性因素对高温大曲微生物群落的跨区域物种水平分析显较示高:贵;州都大匀市曲高中温真大菌比曲例则较呈低现芽,湖孢杆北大菌丰曲度中下比例降[22]与K. eburnea富集的特征3种大曲的代谢物谱呈现显著差异:金沙/习水大曲以脂肪酰类物质为主,而茅台大曲则富含有机氧化合物。金沙大曲表现出最高的微生物丰度与多样性(优势菌群为Pseudomonas、[23]不的大同高产曲温区从Kl中e其bK国sli中ee1blP0lsa个ise、elul不aTd则ho同em与r省omn有o份aas机s收与cu氧集脂s和化肪的T合2酸h9e物6呈r份m关正o大m联相y曲密c关e样切s,)品,,揭示了不同地理来源的大曲样品细菌群落存在显著差异,鉴定了生物标志物物种,[5]如B. licheniformis和B. amyloliquefaciens,用于区分大曲的类型和地理起源酱香型大曲通常形成以Kroppenstedtia、Bacillus、Ther的mo产as香cu功s、能V微irg生ib物ac群illu,s和促 进Th各erm种o氨my基ce酸s为和核心[24]香气化合物的代谢
续表1
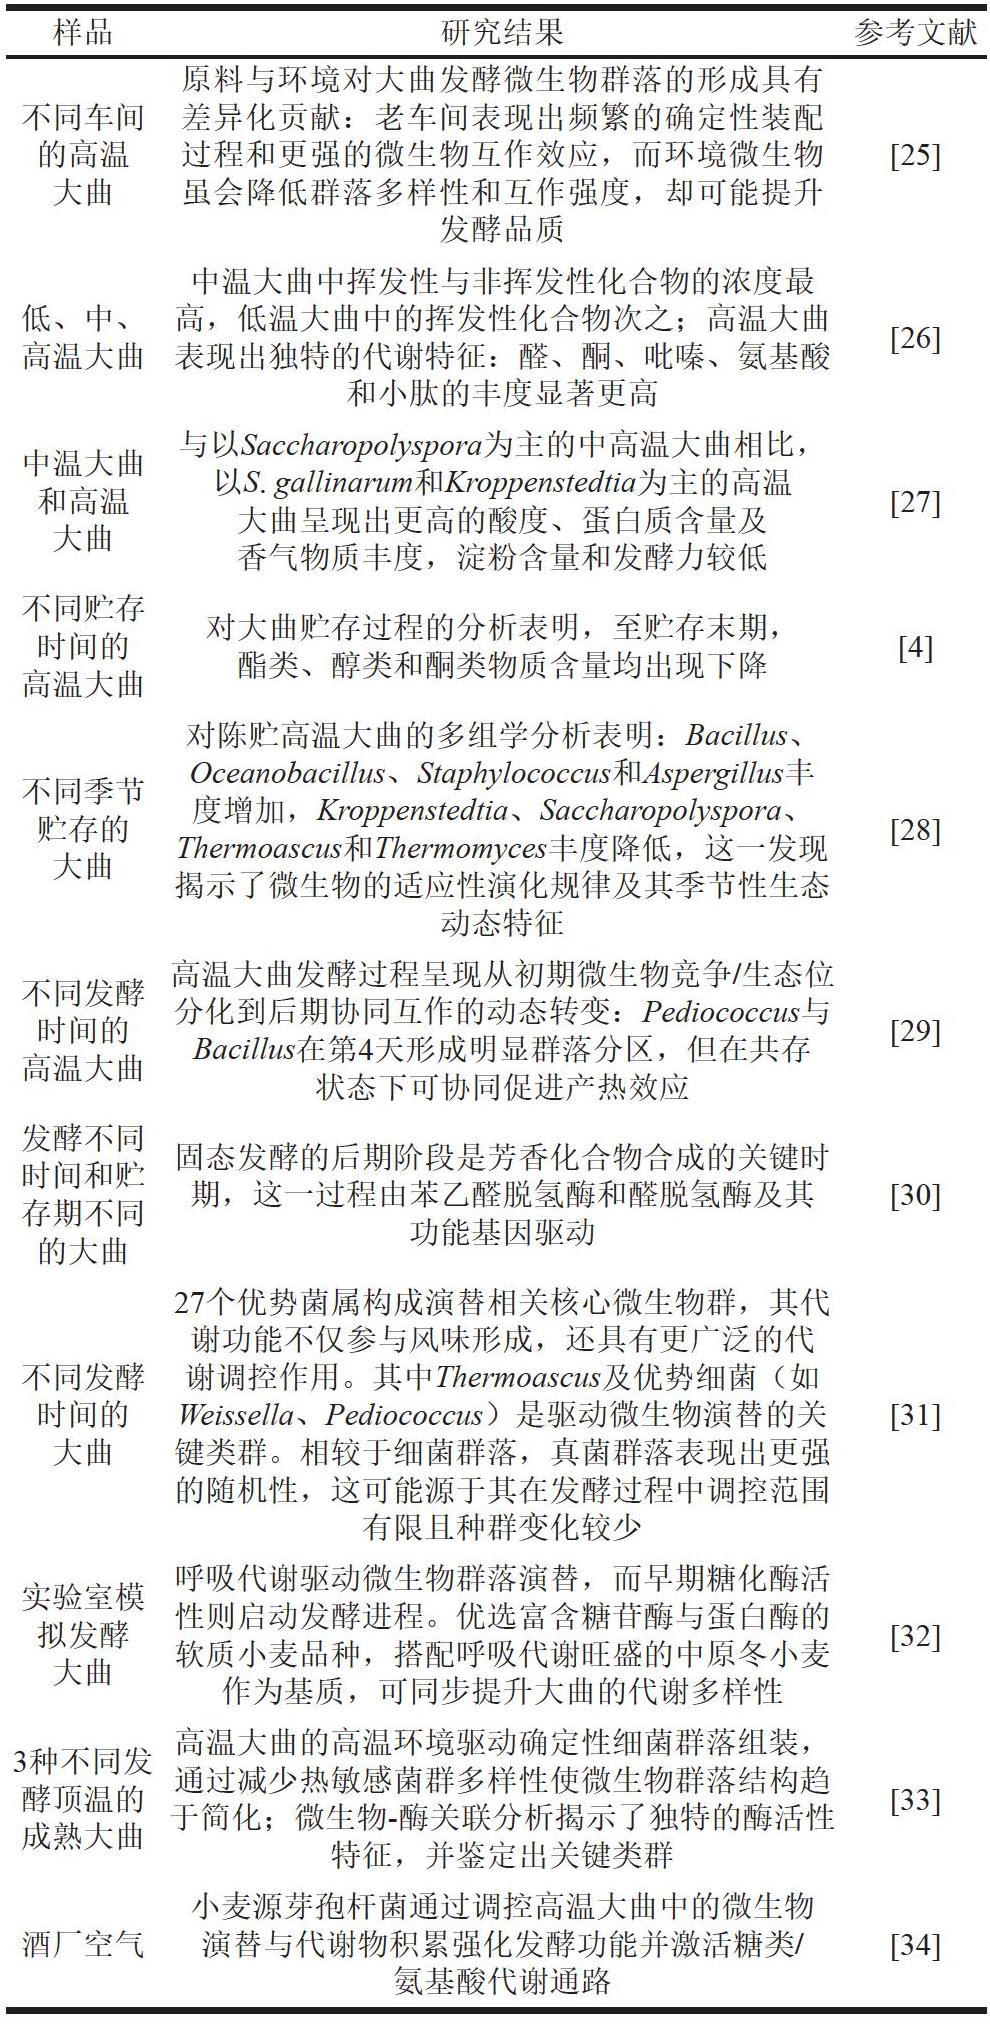
样品 研究结果 参考文献原料与环境对大曲发酵微生物群落的形成具有不同车间 差异化贡献:老车间表现出频繁的确定性装配的高温 过程和更强的微生物互作效应,而环境微生物[25]大曲 虽会降低群落多样性和互作强度,却可能提升发酵品质中温大曲中挥发性与非挥发性化合物的浓度最低高温、大中、曲 表高现,低出独温特大的曲代中谢的挥特征发性:化醛合、物酮次、之吡嗪;高、氨温基大酸曲[26]和小肽的丰度显著更高中和温大高大曲温曲 与以以香大SSa. 气曲cgcah物呈llair质现noap丰r出oulm度更ys和p高,oKr淀的rao为粉酸pp主度含en的量、ste中和蛋dt高i发白a为温质酵主大含力的曲量较高相及低温比,[27]不高时温同间贮大的存曲 对酯大类曲贮、存醇类过程和酮的类分物析表质含明量,均至贮出存现末下期降,[4]对陈贮高温大曲的多组学分析表明:Bacillus、不贮大同存季曲的节 揭TO度h示ecr增ema了加no微oabs,生cauKcs物irl和olup的sTp、h适eenSrs应mttaepo性dmhtiy演yalco、化ecsSo丰规accc度律ucsh和及降arAo低其pspo季,leyr这节sgpi一性ollrua发生s、丰现态[28]动态特征不高时温同间大发的酵曲 高分B温化ac大到ill曲后us发在期状酵第协态4过同天下程互形可呈作成协现的明同从动显促初态群进期转落产微变分热生:区效物P,应e竞d但io争c在o/生c共cu态存s与位[29]存发时的酵期间大和不不曲贮同同 固期态,发这酵一的过后程期由阶苯功段能乙是基醛芳脱因香氢驱化动酶合和物醛合脱成氢的酶关及键其时[30]27个优势菌属构成演替相关核心微生物群,其代谢功能不仅参与风味形成,还具有更广泛的代不同发酵 谢调控作用。其中Thermoascus及优势细菌(如时间的 Weissella、Pediococcus)是驱动微生物演替的关[31]大曲 键类群。相较于细菌群落,真菌群落表现出更强的随机性,这可能源于其在发酵过程中调控范围有限且种群变化较少实拟验大发室曲酵模 性软呼质则吸作代启小为谢动麦基驱发品质种动酵,进微,可程搭生同配物。步优群呼提选落吸升代演富大谢含替曲糖旺,的苷而盛代早酶的谢期与中多糖原蛋样化冬白性酶酶小麦活的[32]3酵成种顶熟不温大同的曲发 于通高简过温化减大;少曲微热的生特敏高物感温征-环菌,酶群境并关鉴驱多联样动定分确性出析使关定揭键微性示类细生了群物菌独群群特落落的组结酶装构活趋,性[33]小麦源芽孢杆菌通过调控高温大曲中的微生物酒厂空气 演替与代谢物积累强化发酵功能并激活糖类/[34]氨基酸代谢通路
基于上述组学技术,针对不同颜色、产区、工艺、贮存时间及发酵阶段的高温大曲开展系统性总结:黄、白、黑3种颜色大曲展现出显著的菌群、理化性质及风味特征差异[13-17]。中国不同省份高温大曲在物种水平上存在细菌群落差异,贵州大曲和湖北大曲真菌比例差距较大,这种差异与原料小麦品种及空气微生物输入密切相关[22-24]。此外,贮存时间与季节变化显著影响微生物群落结构:贮存末期酯类、醇类物质含量下降,而不同季节的温湿度差异则驱动了微生物的适应性演化[4,28-33]。
2 宏基因组学:解析高温大曲微生物群落结构与功能基因库
2.1 高温大曲核心菌群
基于宏基因组学的环境DNA测序技术能够全面解析高温大曲中的微生物群落与核心菌群[35]。高温大曲的核心微生物主要包括Thermoactinomyces、Thermoascus、Thermomyces等适应高温(50~65 ℃)的菌属,主导大曲热分化阶段。Bacillus与Pediococcus协同产酶,促进淀粉、蛋白质分解;Aspergillus和Thermoascus主导糖化过程;Weissella产乳酸,调节pH值;Monascus合成色素和酯类物质。空气传播的Aspergillus和Bacillus通过环境因子(如温度、湿度)塑造群落格局。以上微生物群落的动态演替和功能互补是高温大曲独特风味和品质形成的关键。
2.2 高温大曲微生物群落演替
高温大曲的微生物演替是一个动态的群落演变过程。环境因素和微生物之间的关系推动这些类群的周转[36],形成高温大曲独有的风味和酶系(图1)。
发酵初期微生物快速增殖(如酵母、霉菌),后期高温胁迫下嗜热菌(如Thermoascus)占主导,贮存期微生物代谢逐渐稳定,风味物质增加[37]。原材料、气候和水源差异导致微生物组成显著不同[24];曲房内温度分布不均促进细菌群落的多样性分布,也是不同颜色大曲(白曲、黄曲、黑曲)形成的原因[38]。
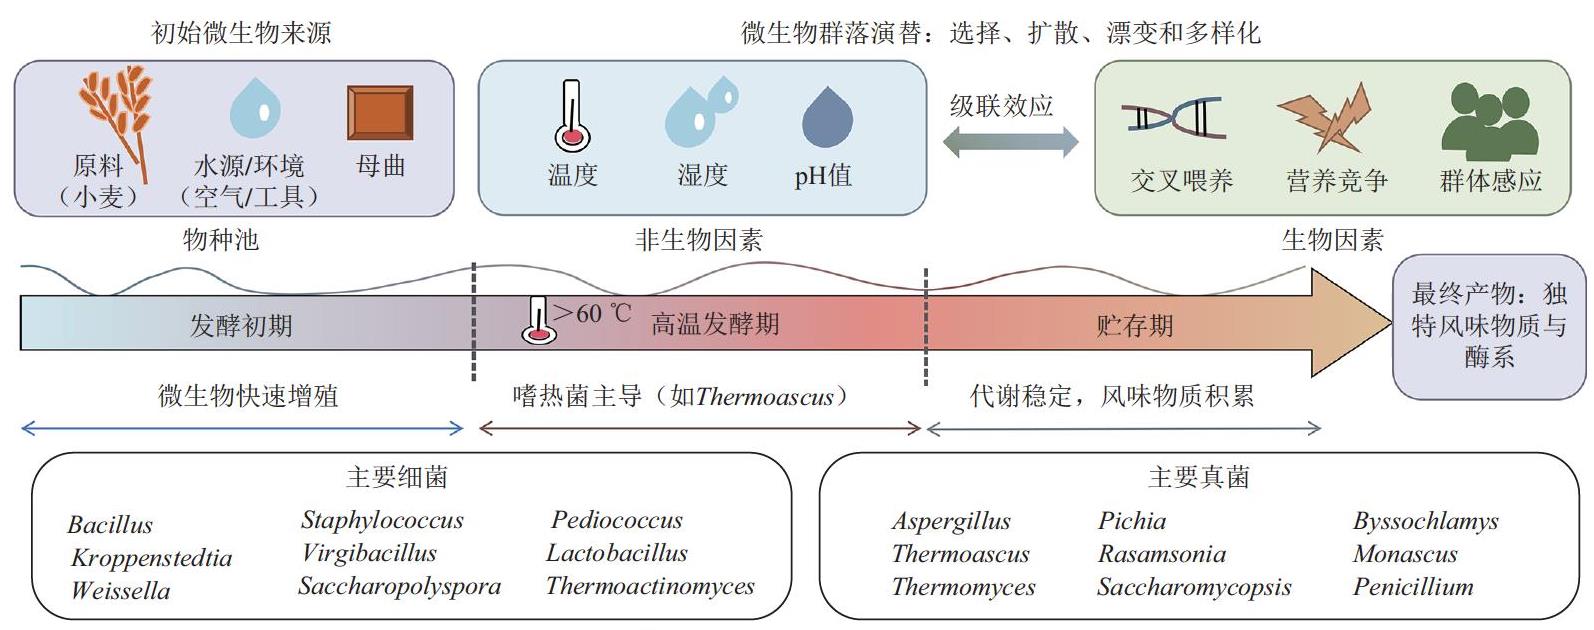
图1 高温大曲核心微生物群落及其演替的驱动因素
Fig.1 Core microbial community and drivers of its succession in high-temperature Daqu
结合生态位理论,可进一步系统分析生态和进化过程对高温大曲微生物群落形成的驱动方式[2]。初始微生物群落主要来源于物料池,包括原材料(小麦)、水源、环境(空气、工具)及历史批次曲粉(母曲)贡献微生物。在发酵过程中,微生物受到非生物和生物因素的影响,表现出自己独特的群落演替规律。非生物因素(包括温度、湿度、酸碱度等)通过级联效应调控微生物代谢与相互作用[1]。生物因素(包括微生物间通过物理接触[39]、交叉喂养[40](如酵母产醇、乳酸菌产酸)、营养竞争[41-42]、群体感应等)通过协同或拮抗作用[41]驱动群落更替[42]。
2.3 高温大曲微生物功能基因注释
近年来,高温大曲微生物群落的功能基因注释研究取得显著进展。Bacillus携带丰富的碳水化合物活性酶基因,包括糖苷水解酶、糖基转移酶和碳水化合物酯酶,参与淀粉、纤维素等底物降解[43]。Bacillus和Aspergillus中的乙酸酯合成酶基因和脂肪酶基因直接关联风味物质的合成[19];Bacillus携带的核黄素合成基因参与四甲基吡嗪生成,赋予酱香型白酒独特的坚果香[43]。功能注释分析表明,大曲中碳水化合物代谢和糖苷水解酶相关基因丰度最高;其中糖苷水解酶主要来源于Weissella和Thermoactinomyces[44]。除此之外,白曲、黄曲和黑曲在液化力、糖化力、发酵力和酯化力上的差异也与其菌属及关键酶基因表达相关[13],白曲中较高的糖苷水解酶、碳水化合物酯酶、多糖裂解酶基因丰度可能是其糖化力、液化力和酯化力高于黑曲和黄曲的重要原因之一[45]。
3 转录组学与蛋白质组学:解析动态调控网络
3.1 耐高温机制
高温大曲品温可达60 ℃以上,耐高温细菌成为其关键功能菌群。转录组分析显示,优势菌株如 B. licheniformis CGMCC 3963在55 ℃显著上调I类热休克蛋白基因(HSP60/HSP70),协助蛋白质正确折叠,维持其功能,防止热变性[46]。同时,聚谷氨酸合成基因表达增强,促进荚膜形成,减少高温对细胞的直接伤害,提升耐热性[46]。高温导致活性氧积累,微生物通过上调超氧化物歧化酶和过氧化氢酶基因表达清除活性氧,避免细胞氧化损伤[26,47]。此外,DNA修复蛋白在高温下表达增强,维护基因组稳定性[26,48]。
3.2 风味代谢调控
高温大曲风味物质的形成受微生物代谢活动驱动,且多种风味相关基因的表达受温度调控。转录组学分析显示,高温下Bacillus和Aspergillus中的乙酸酯合成酶基因表达上调,促进乙酸乙酯等香气物质合成;发酵中后期,脂肪酶基因高表达,催化酯类风味物质形成[48]。Bacillus的核黄素合成基因在高温下表达增强,参与四甲基吡嗪生成,赋予酱香型白酒坚果香气[43]。高温还诱导热激蛋白基因(HSP60/HSP70)及耐热基因表达,同时促进Bacillus等耐热菌的糖化酶基因转录,间接影响风味物质积累[47,49-50]。此外,低水分(<13%)与高酸度(总酸>2.5 mmol/10 g)条件下,Bacillus和Kroppenstedtia的代谢基因表达增强,促进风味前体合成[47,49]。
3.3 关键酶解析
高温大曲中的糖化酶系主要包括淀粉酶、纤维素酶,淀粉糖化酶(如GH13家族α-淀粉酶)主要由Byssochlamys spectabilis、M. purpureus和T. lanuginosus分泌;纤维素酶(GH5/6家族)则主要来源于T. aurantiacus和Paecilomyces sp.[19]。α-淀粉酶和葡糖淀粉酶活性与淀粉水解效率呈正相关[51],通过降解淀粉生成葡萄糖,进而产生大量风味物质[50]。降解纤维素的关键酶中,纤维素1,4-β-纤维二糖苷酶和β-葡萄糖苷酶分别占总糖苷酶的15.43%和15.34%,T. aurantiacus和A. clavatus可同时产生这2种酶。此外,B. spectabilis可在酸性条件下产生高效木聚糖酶[52],Lichtheimia ramosa高效表达甘露糖酶[53]。真菌是淀粉酶与纤维素酶的主要来源,在淀粉、纤维素和葡聚糖分解中发挥主要作用[54],如A. oryzae、A. terreus、A. awamori、L. ramosa、T. lanuginosus、S. fibuligera等[54-61]。
4 代谢组学:揭示发酵物质转化机制
4.1 代谢物组成
基于GC-MS和LC-MS等代谢组学技术,从高温大曲中鉴定出数百种代谢物,涵盖挥发性与非挥发性化合物,如酯类、醇类、酸类、吡嗪类、氨基酸及其衍生物等[13,62-63]。其中,苯乙醇、异戊醇、芳樟醇等多由酵母代谢产生,苯乙醇赋予玫瑰花香[64-65];乙酸、丙酸、丁酸等挥发性有机酸主要贡献酸香与刺激性风味,乙酸主要经醋酸菌(如Acetobacter)和部分酵母(如Saccharomyces)的乙醇氧化途径生成[26]。酯类是决定果香、花香、奶油香等风味的关键成分,一级大曲中酯类含量最高,赋予浓郁果香与花香[66]。吡嗪类已鉴定出20余种,提供烘焙香与坚果香[67]。非挥发性化合物主要包括氨基酸及其衍生物、多肽与蛋白质、非挥发性有机酸、糖类及糖醇等,由美拉德反应、酶促反应和微生物代谢产生[68]。氨基酸影响大曲质量等级[6,25];糖苷酶、蛋白酶等功能蛋白影响糖化力与液化力[1];乳酸、琥珀酸、苹果酸等影响pH值和微生物代谢平衡[1,62];葡萄糖、阿拉伯糖醇等作为微生物发酵碳源[47]。
4.2 关键代谢通路
氨基酸和碳水化合物代谢是酱香型大曲中最活跃的二级代谢途径,同时脂质、聚糖等次级途径也高度活跃[1,13,38,69]。糖代谢途径决定淀粉降解效率与风味前体生成:α-淀粉酶(GH13)随机切割淀粉为短链糊精,葡萄糖淀粉酶(GH15)水解淀粉糖苷键释放葡萄糖[38,69];葡萄糖中心代谢包括糖酵解(生成丙酮酸)、三羧酸(tricarboxylic acid,TCA)循环(生成三磷酸腺苷、还原型辅酶I及有机酸)和磷酸戊糖途径(生成还原型辅酶Ⅱ和戊糖)[1,13]。氨基酸代谢涵盖蛋白质水解与氨基酸转化:Bacillus、Aspergillus等分泌蛋白酶,将小麦蛋白水解为寡肽和游离氨基酸[70],其中B. licheniformis和B. amyloliquefaciens携带丰富的肽酶基因(如pepN、pepT)[43];氨基酸通过转氨基作用(生成α-酮酸)、脱羧基作用(生成γ-氨基丁酸(γ-aminobutyric acid,GABA)、组胺等)及美拉德反应(与还原糖生成吡嗪类和呋喃类)进一步转化[71]。缬氨酸、亮氨酸、苯丙氨酸等氨基酸代谢活跃,可通过美拉德反应合成挥发性化合物[72]。酱香型大曲还能通过TCA循环、磷酸戊糖途径等代谢途径合成萜类醌、脂肪酸等风味前体。
4.3 特征风味物质合成
复杂的微生物群落赋予高温大曲独特的曲香,现代技术如高效液相色谱、LC-MS可显著提升风味前体的检测效率,宏蛋白质组学与宏基因组学的结合则为解析风味形成分子机制提供了高分辨率工具。在高温大曲发酵过程中,细菌的作用分为两个阶段:第1阶段是淀粉转化与风味前体生成,受理化参数、原料特性及环境条件影响,酸度升高与营养复杂性增加会改变细菌群落结构并促进新菌株富集[73];第2阶段是乳酸代谢与风味物质合成,Lactobacillus在低pH值下通过同型乳酸发酵将淀粉或葡萄糖转化为乳酸[74-75]。酵母与真菌共同参与发酵并影响风味形成,产香酵母(如P. membranifaciens、Zygosaccharomyces bailii、Schizosaccharomyces pombe、S. cerevisiae)通过糖代谢生成乙醇,并催化乳酸与乙醇酯化生成乳酸乙酯,同时调控酸类与酯类的动态平衡[56,76]。真菌分泌的糖化水解酶、裂解酶(如几丁质酶、角蛋白酶)和葡萄糖苷酶,分别促进可发酵糖生成、风味物质合成及芳香前体释放。核心微生物属包括Kroppenstedtia、Bacillus、Thermoascus、Virgibacillus和Thermomyces[77-83]:Bacillus可合成己酸乙酯、香草醛及多种水解酶[77-79];Thermoascus和Thermomyces产生水解酶并合成酯类[80-81];Kroppenstedtia与萜烯类及氨基酸合成正相关[24];Virgibacillus促进吡嗪类生成[82];Talaromyces产生酮类[83];Weissella、Thermoactinomyces和Streptomyces thermoautotrophicus在部分地区大曲中更丰富,其中Thermoactinomyces有助于美拉德反应和焦糖化反应[84]。借助组学技术解析微生物-酶-代谢产物的级联作用,可为工艺优化与风味调控提供理论支撑(图2)。
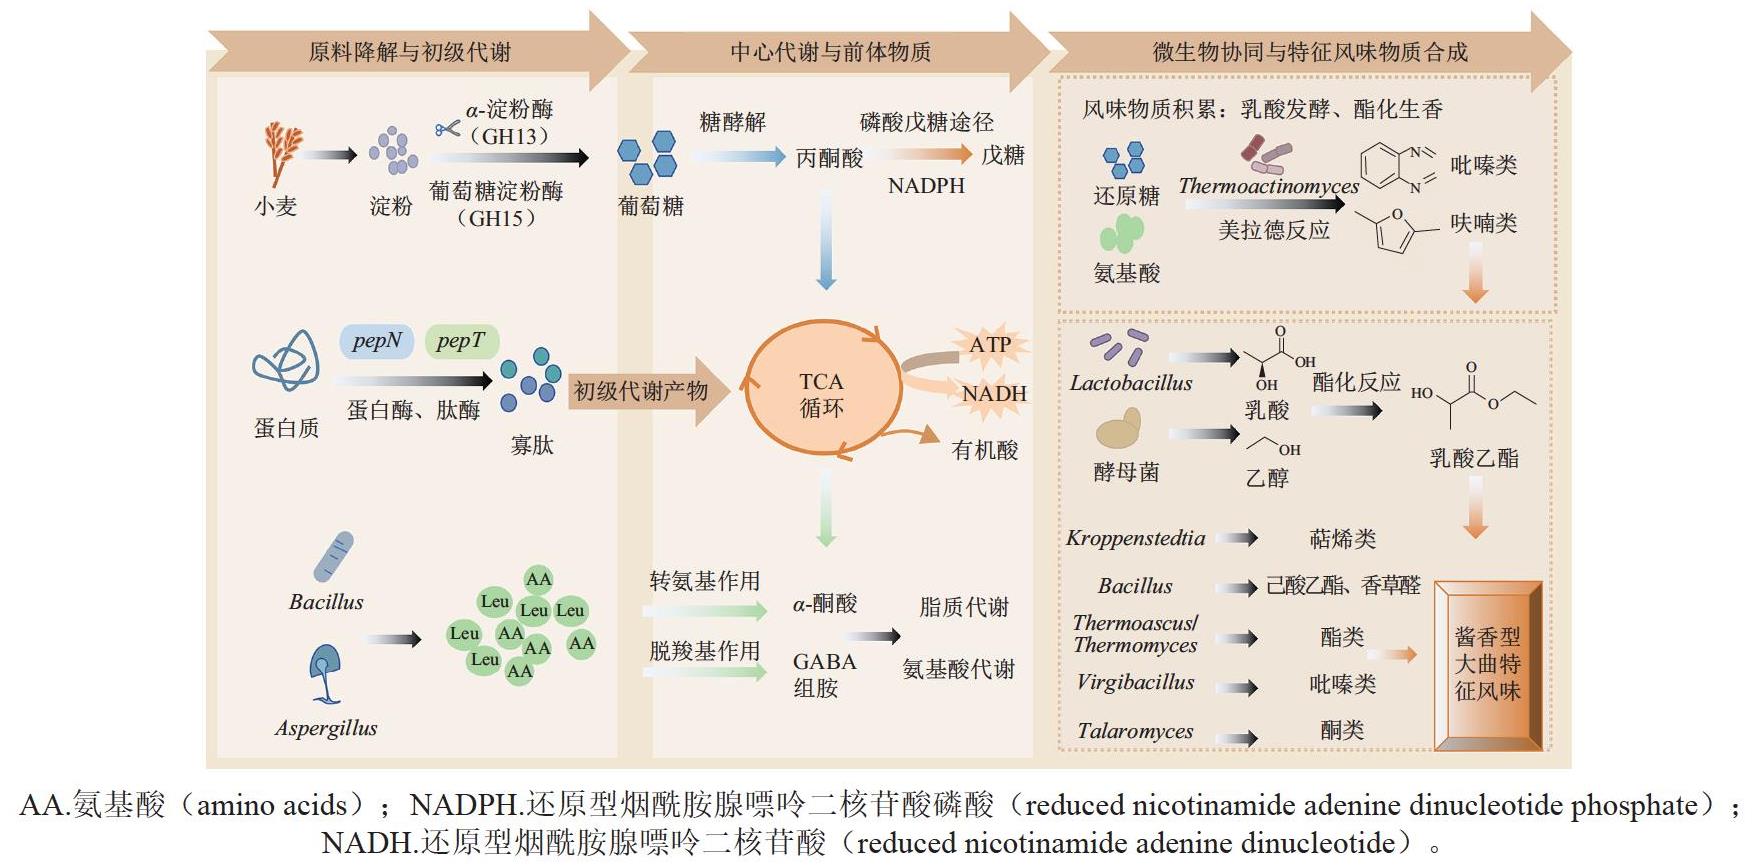
图2 高温大曲微生物群落与风味代谢机制
Fig.2 Microbial community and flavor metabolism mechanisms of high-temperature Daqu
5 多组学分析
单一组学技术难以全面解析“微生物-酶-代谢物”的级联调控网络。宏基因组学揭示基因潜能但无法确证表达,转录组学与蛋白质组学反映表达水平与蛋白活性但难以表征代谢终产物,代谢组学虽可定量风味物质但无法追溯其微生物来源。因此,多组学联合分析是系统解析高温大曲发酵机制的必要策略。
宏基因组学与代谢组学联合分析揭示了与风味物质显著相关的核心菌群,Thermoascus丰度与四氢叶酸合成显著相关,四氢叶酸是氨基酸生物合成中一碳代谢的关键辅酶。同时,Bacillus携带的核黄素合成基因参与四甲基吡嗪的生成。此外,Virgibacillus与己醇发酵显著相关,该途径可促进乳酸、甲酸、乙醇和乙酸的合成[85]。部分微生物与氨基酸合成呈负相关,如Saccharomycopsis、Weissella等[72]。产香功能微生物(Kroppenstedtia、Thermoactinomyces、Bacillus)适应高温(>60 ℃)、低水分(10%~15%)环境[86-87];乳酸菌(如Limosilactobacillus、Companilactobacillus等)通过产生乳酸增加酸度,促进共生群落形成。不同产区大曲代谢差异较小,可能与微生物群落结构相似有关。
联合宏蛋白质组学与宏转录组学分析高温发酵期(>60 ℃)酶活性与来源。结果表明,尽管细菌在数量上占优势,但真菌在淀粉、纤维素和葡聚糖的分解中发挥主要作用[54]。其中,T. aurantiacus分泌的GH15家族葡萄糖淀粉酶和Paecilomyces分泌的GH5家族纤维素酶是核心功能酶,温度动态变化直接调控这些微生物在酶解过程中的功能分工[19]。该研究明确了真菌在高温糖化过程中的主导作用。
基于宏基因组学、代谢组学与电子感官分析比较3种颜色高温大曲的菌群结构与品质差异。结果表明:白曲以Bacillus为优势菌,黄曲以Kroppenstedtia为主,黑曲则以Oceanobacillus和Virgibacillus为主[13]。白曲表现出更高的水分含量、糖化力和液化力,黄曲表现出较高的氨基酸和蛋白质含量,而黑曲则表现出较高的酸度和淀粉含量[23]。通过颜色-代谢物-感官的关联分析,鉴定出关键香气活性物质,其中优质大曲以苯乙醛(花香)、2-苯乙基异戊酸酯(果香)及4-乙基愈创木酚(烟熏香)为标志,这为基于代谢标志物的大曲品质分级提供了量化依据。多组学研究系统揭示了高温大曲在微生物群落、代谢功能、环境调控及工艺优化中的核心科学问题。
6 挑战与未来研究方向
组学技术在高温大曲固态发酵机制研究中发挥了重要作用,但仍面临诸多挑战。数据整合与标准化是目前研究存在的一大难题,高温大曲涉及复杂的微生物群落动态变化,宏基因组学可揭示基因潜力,但转录组、蛋白质组和代谢组数据如何有效关联仍缺乏统一框架。微生物互作与环境适应性机制仍不清晰,高温大曲中微生物如何通过信号分子(如N-酰基高丝氨酸内酯)协调代谢仍不明确,高温(60~70 ℃)和低水分(<13%)如何影响微生物酶活性(如GH13淀粉酶)的机制仍需深入。此外,目前研究多停留在机制解析,如何基于组学数据优化制曲工艺(如温度梯度控制)仍缺乏系统性方案。
未来的研究将聚焦于:1)多组学动态整合分析:结合宏基因组、宏转录组和代谢组,追踪发酵过程中微生物群落与代谢物的动态变化,利用单细胞组学技术解析高温大曲中不同微生物个体的代谢异质性,如Bacillus与Aspergillus的共培养代谢互作;2)人工智能与大数据建模:基于组学数据建立微生物-代谢物关联网络,预测最佳发酵条件,实现大曲生产全程数据追溯,确保工艺稳定性;3)工业化应用与标准化:筛选代谢标志物,统一大曲品质评价标准,结合物联网实时监测温度、湿度,动态调整发酵参数。
7 结 语
高温大曲的发酵过程由嗜热微生物群落(Bacillus、Kroppenstedtia及嗜热真菌)驱动,这些微生物通过热适应代谢特化协同降解淀粉并合成风味物质。与中低温大曲相比,酱香型高温大曲的核心独特性体现在:细菌中以Kroppenstedtia和Thermoactinomyces为标志性菌属,真菌中以Thermoascus为优势类群;代谢通路上以美拉德反应和焦糖化反应为特征途径;风味物质上以吡嗪类(如四甲基吡嗪)和酚类(如4-乙基愈创木酚)为关键呈香成分(图3)。多组学联用揭示了高温大曲微生物与标志性风味物质合成的关联。组学技术已推动高温大曲研究从微生物群落描述迈向功能机制解析,但仍需突破数据整合、功能验证和工业化应用等瓶颈。未来应聚焦动态组学整合、合成生物学改造和智能发酵优化,以实现传统固态发酵工艺的精准调控与标准化生产。这些策略将推动高温大曲的研究朝着可持续、标准化生产的方向发展,同时保持其独特的风味传承。
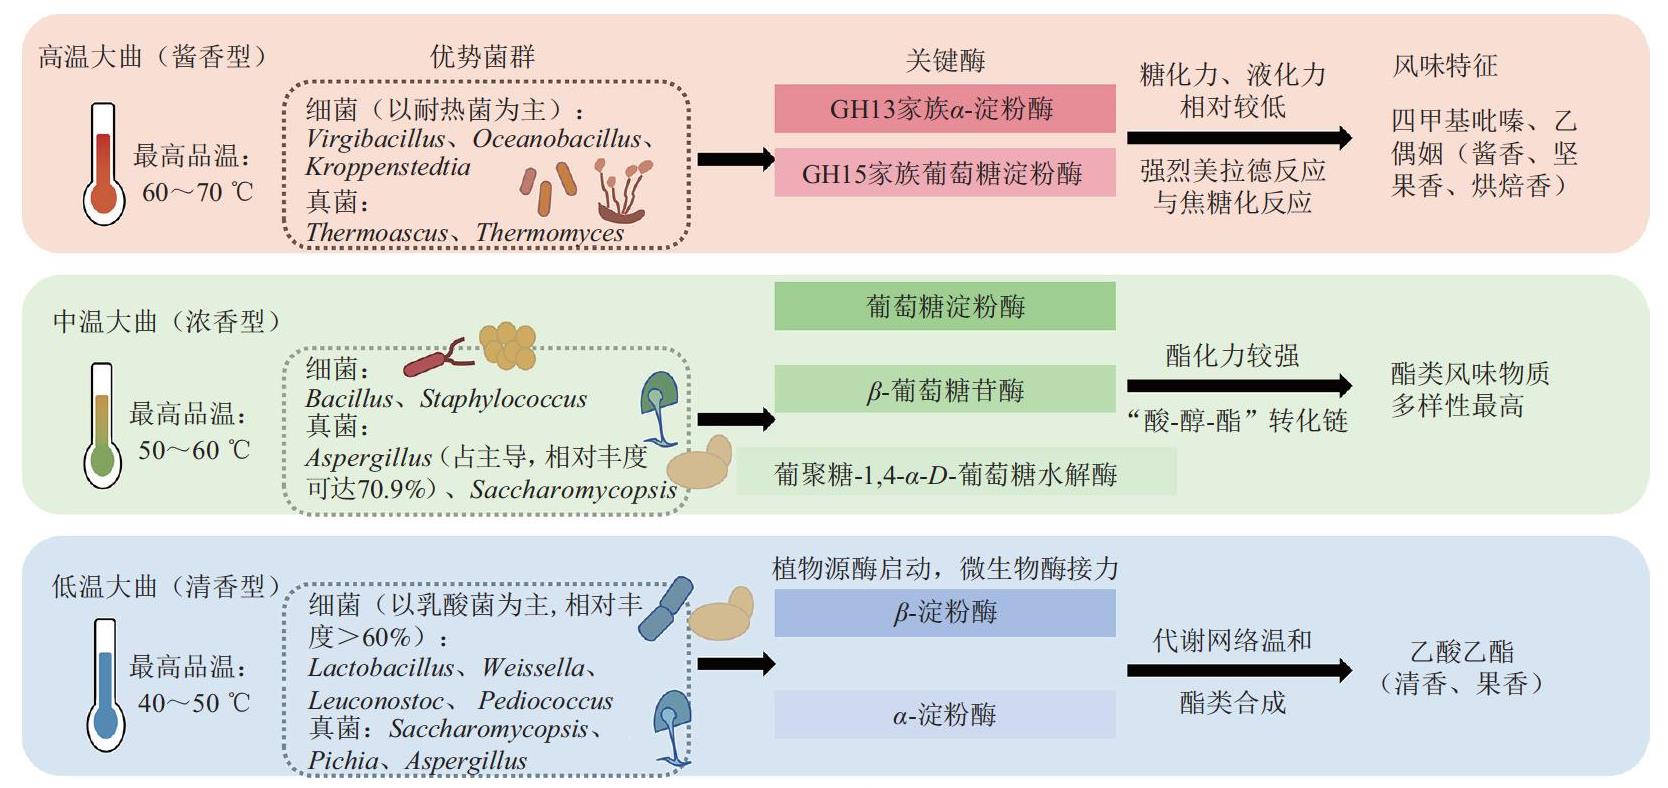
图3 不同种类大曲特征对比[88-89]
Fig.3 Comparison of characteristics among different types of Daqu[88-89]
[1] Yang Liang, Fan Wenlai, Xu Yan. Qu-omics elucidates the formation and spatio-temporal differentiation mechanism underlying the microecology of high temperature Daqu[J]. Food Chemistry, 2024, 438: 137988. DOI:10.1016/j.foodchem.2023.137988.
[2] Tang Jie, Wei Junlin, Yang Yong, et al. Spatio-temporal scales of the Chinese Daqu microbiome: heterogeneity, niche differentiation, and assembly mechanisms[J]. Trends in Food Science & Technology, 2025, 156: 104832. DOI:10.1016/j.tifs.2024.104832.
[3] Chen Gu, Chen Congcong, Lei Zhonghua. Meta-omics insights in the microbial community profiling and functional characterization of fermented foods[J]. Trends in Food Science & Technology, 2017, 65: 23-31. DOI:10.1016/j.tifs.2017.05.002.
[4] Niu Jialiang, Li Weiwei, Du Binghao, et al. Temporal heterogeneity of microbial communities and flavor metabolism during storage of high-temperature Daqu[J]. Food Chemistry, 2025, 464: 141577. DOI:10.1016/j.foodchem.2024.141577.
[5] Han Peijie, Song Liang, Wen Zhang, et al. Species-level understanding of the bacterial community in Daqu based on full-length 16S rRNA gene sequences[J]. Food Microbiology, 2024, 123: 104566. DOI:10.1016/j.fm.2024.104566.
[6] Xing Shuang, Shi Gailing, Lu Jun, et al. The discrepancy in amino acids within high-temperature Daqu: a novel metabolic marker for the quality evaluation of Daqu[J]. Food Chemistry, 2025, 470: 142645.DOI:10.1016/j.foodchem.2024.142645.
[7] Tang Ping, Wang Lianqing, Zhao Qing, et al. Characterization of key aroma compounds and relationship between aroma compounds and sensory attributes in different quality of high temperature Daqu[J]. LWT-Food Science and Technology, 2024, 194: 115801. DOI:10.1016/j.lwt.2024.115801.
[8] Mu Yu, Huang Ying, Li Dong, et al. Revealing the comprehensive effect of mechanization on sauce-flavor Daqu through highthroughput sequencing and multi-dimensional metabolite profiling[J]. Food Research International, 2024, 191: 114645. DOI:10.1016/j.foodres.2024.114645.
[9] Jiang Yali, Yang Gang, Li Haijiang, et al. Knowledge driven approach for smart bridge maintenance using big data mining[J]. Automation in Construction, 2023, 146: 104673. DOI:10.1016/j.autcon.2022.104673.
[10] Liu Xu, Fu Junjie, Shen Hanjun, et al. Oceanobacillus in hightemperature Daqu: taxonomic diversity, metabolic characteristics and biofortification effect[J]. Process Biochemistry, 2025, 150: 68-79.DOI:10.1016/j.procbio.2025.01.002.
[11] Ali A, Wu Yanfang, Li Weiwei, et al. Insight into microorganisms and flavor substances in traditional Chinese fermented food starter:Daqu[J]. Process Biochemistry, 2024, 146: 433-450. DOI:10.1016/j.procbio.2024.09.015.
[12] Kang Jiamu, Xue Yansong, Chen Xiaoxue, et al. Integrated multiomics approaches to understand microbiome assembly in Jiuqu,a mixed-culture starter[J]. Comprehensive Reviews in Food Science and Food Safety, 2022, 21(5): 4076-4107. DOI:10.1111/1541-4337.13025.
[13] Chen Chao, Ni Derang, Yang Yubo, et al. Characterizing the microbial community constructure and the metabolites among different colour Moutai Daqu[J]. Food Chemistry: X, 2025, 26: 102223. DOI:10.1016/j.fochx.2025.102223.
[14] Tang Qiuxiang, Zhang Yi, Huang Jun, et al. Unraveling the unique microbiota and metabolites in three different colors Jiangqu through multidimensional analysis[J]. Food Chemistry, 2025, 466: 142256.DOI:10.1016/j.foodchem.2024.142256.
[15] Ge Dongying, Cai Wenchao, Guo Zhuang, et al. Comparative analysis of bacterial community structure and physicochemical quality in hightemperature Daqu of different colors in Qingzhou production area[J].Heliyon, 2024, 10(11): e31718. DOI:10.1016/j.heliyon.2024.e31718.
[16] Hou Qiangchuan, Wang Yurong, Qu Dingwu, et al. Microbial communities, functional, and flavor differences among three differentcolored high-temperature Daqu: a comprehensive metagenomic,physicochemical, and electronic sensory analysis[J]. Food Research International, 2024, 184: 114257. DOI:10.1016/j.foodres.2024.114257.
[17] Guo Zhuang, Xiang Fanshu, Hou Qiangchuan, et al. Analysis of bacterial community structure and taste quality of different colored high-temperature Daqu in the Xiangyang region, China[J]. LWT-Food Science and Technology, 2023, 188: 115411. DOI:10.1016/j.lwt.2023.115411.
[18] Chen Zhengpei, Cao Qian, Meng Tiantian, et al. Yeast community in the first-round fermentation of sauce-flavor Baijiu: source, succession and metabolic function[J]. Food Research International, 2025, 200:115466. DOI:10.1016/j.foodres.2024.115466.
[19] Yang Yang, Niu Mansi, Yu Hui, et al. Exploring the contribution of temperature-adapted microbiota to enzyme profile of saccharification in Daqu using metagenomics and metaproteomics[J]. LWT-Food Science and Technology, 2024, 197: 115916. DOI:10.1016/j.lwt.2024.115916.
[20] Deng Jie, Zheng Jia, Huang Dan, et al. Characterization of physicochemical properties, volatile compounds and microbial community structure in four types of Daqu[J]. LWT-Food Science and Technology, 2023, 184: 115064. DOI:10.1016/j.lwt.2023.115064.
[21] Lei Zilun, Zhang Zhu, Huang Jun, et al. Revealing the synergistic effects of Qupi-shaping pattern and spatial variation on hightemperature Daqu attributes[J]. LWT-Food Science and Technology, 2025, 215: 117194. DOI:10.1016/j.lwt.2024.117194.
[22] Zhang Zhendong, Meng Yaolan, Wang Yurong, et al. Understanding the factors influencing high-temperature Daqu from different geographical regions[J]. Food Bioscience, 2024, 62: 105528. DOI:10.1016/j.fbio.2024.105528.
[23] Dai Yijie, Yu Lei, Ao Jintao, et al. Analyzing the differences and correlations between key metabolites and dominant microorganisms in different regions of Daqu based on off-target metabolomics and high-throughput sequencing[J]. Heliyon, 2024, 10(17): e36944. DOI:10.1016/j.heliyon.2024.e36944.
[24] Zhu Chutian, Cheng Yuxin, Shi Qili, et al. Metagenomic analyses reveal microbial communities and functional differences between Daqu from seven provinces[J]. Food Research International, 2023, 172: 113076. DOI:10.1016/j.foodres.2023.113076.
[25] Ban Shibo, Shen Yi, Cheng Wei, et al. Community dynamics and assembly is driven by environmental microbiota mediated by spatiotemporal distribution: the case of Daqu fermentation[J]. International Journal of Food Microbiology, 2025, 426: 110933. DOI:10.1016/j.ijfoodmicro.2024.110933.
[26] Mu Yu, Yao Shangjie, Huang Ying, et al. Unveiling the metabolic heterogeneity and formation mechanism in Chinese typical Daqu based on Qu-omics[J]. Food Research International, 2025, 202: 115735. DOI:10.1016/j.foodres.2025.115735.
[27] Wang Yurong, Hou Qiangchuan, Ni Hui, et al. Multi-method joint analysis reveals differences in the quality and microbial composition of high-temperature and medium-high-temperature Daqu[J]. LWT-Food Science and Technology, 2024, 209: 116804. DOI:10.1016/j.lwt.2024.116804.
[28] Yang Liang, Fan Wenlai, Xu Yan. Effects of storage period and season on the microecological characteristics of Jiangxiangxing hightemperature Daqu[J]. Food Research International, 2024, 196: 115034. DOI:10.1016/j.foodres.2024.115034.
[29] Tu Huabin, Zhou Guanyu, Lu Jianjun, et al. Cooperative interaction between Pediococcus and Bacillus communities as a key factor in the high-temperature thermal differentiation of Daqu[J]. Food Bioscience, 2024, 62: 105457. DOI:10.1016/j.fbio.2024.105457.
[30] Zhu Min, Deng Zhao, Tie Yu, et al. Unveiling the synthesis of aromatic compounds in sauce-flavor Daqu from the functional microorganisms to enzymes[J]. Food Research International, 2024, 190: 114628. DOI:10.1016/j.foodres.2024.114628.
[31] Ban Shibo, Cheng Wei, Wang Xi, et al. Predicting the final metabolic profile based on the succession-related microbiota during spontaneous fermentation of the starter for Chinese liquor making[J]. MSystems, 2024, 9(2): e00586-23. DOI:10.1128/msystems.00586-23.
[32] Wu Mengyao, Luo Yi, Yao Yongqi, et al. Multidimensional analysis of wheat original crucial endogenous enzymes driving microbial communities metabolism during high-temperature Daqu fermentation[J]. International Journal of Food Microbiology, 2024,413: 110589. DOI:10.1016/j.ijfoodmicro.2024.110589.
[33] Huang Ying, Li Dong, Mu Yu, et al. Exploring the heterogeneity of community and function and correspondence of “species-enzymes” among three types of Daqu with different fermentation peaktemperature via high-throughput sequencing and metagenomics[J].Food Research International, 2024, 176: 113805. DOI:10.1016/j.foodres.2023.113805.
[34] Zhang Yuandi, Kang Jiamu, Han Beizhong, et al. Wheat-origin Bacillus community drives the formation of characteristic metabolic profile in high-temperature Daqu[J]. LWT-Food Science and Technology, 2024,191: 115597. DOI:10.1016/j.lwt.2023.115597.
[35] Nalbantoglu U, Cakar A, Dogan H, et al. Metagenomic analysis of the microbial community in Kefir grains[J]. Food Microbiology, 2014, 41:42-51. DOI:10.1016/j.fm.2014.01.014.
[36] Ma Shiyuan, Luo Huibo, Zhao Dong, et al. Environmental factors and interactions among microorganisms drive microbial community succession during fermentation of Nongxiangxing Daqu[J]. Bioresource Technology, 2022, 345: 126549. DOI:10.1016/j.biortech.2021.126549.
[37] Xia Yu, Luo Huibo, Wu Zhengyun, et al. Microbial diversity in Jiuqu and its fermentation features: saccharification, alcohol fermentation and flavors generation[J]. Applied Microbiology and Biotechnology,2023, 107(1): 25-41. DOI:10.1007/s00253-022-12291-5.
[38] 田浩杰, 李豆南, 邱树毅, 等. 酱香大曲中高温放线菌的筛选及基因组解析[J]. 食品科学, 2023, 44(18): 68-76. DOI:10.7506/spkx1002-6630-20220928-319.
[39] Zhang Yuanchen, Kastman E K, Guasto J S, et al. Fungal networks shape dynamics of bacterial dispersal and community assembly in cheese rind microbiomes[J]. Nature Communications, 2018, 9: 336.DOI:10.1038/s41467-017-02522-z.
[40] Fritts R K, McCully A L, McKinlay J B. Extracellular metabolism sets the table for microbial cross-feeding[J]. Microbiology and Molecular Biology Reviews, 2021, 85(1): e00135-20. DOI:10.1128/MMBR.00135-20.
[41] Abisado R G, Benomar S, Klaus J R, et al. Bacterial quorum sensing and microbial community interactions[J]. MBio, 2018, 9(3): e02331-17. DOI:10.1128/mbio.02331-17.
[42] Canon F, Nidelet T, Guédon E, et al. Understanding the mechanisms of positive microbial interactions that benefit lactic acid bacteria co-cultures[J]. Frontiers in Microbiology, 2020, 11: 2088. DOI:10.3389/fmicb.2020.02088.
[43] 王玉荣, 侯强川, 田龙新, 等. 基于纯培养和超高深宏基因组测序技术分析茅台镇两企业高温大曲微生物多样性差异[J]. 食品科学,2024, 45(4): 108-115. DOI:10.7506/spkx1002-6630-20230602-008.
[44] 刘俊男, 杨阳, 魏阳, 等. 曲房内空间位置对高温大曲发酵过程中细菌群落动态变化的影响[J]. 食品与发酵工业, 2025, 51(24): 276-283.DOI:10.13995/j.cnki.11-1802/ts.042721.
[45] 张芮, 刘文虎, 张立强, 等. 基于宏基因组学解析高温大曲微生物群落与功能的异质性[J]. 酿酒科技, 2023(5): 70-77. DOI:10.13746/j.njkj.2023068.
[46] 吴群, 徐岩. 高温大曲中地衣芽胞杆菌(Bacillus licheniformis CGMCC 3963)的耐高温特征[J]. 微生物学报, 2012, 52(7): 910-915.
[47] 邓阿玲, 唐杰, 朱楚天, 等. 黑色高温大曲在固态发酵过程中的微生物群落及风味化合物演替驱动机制[J]. 食品科学, 2024, 45(23):102-112. DOI:10.7506/spkx1002-6630-20240507-027.
[48] Xu Shanshan, Hu Weiqi, Zhou Hao, et al. Metatranscriptomic insights into the mechanism of ‘Multiple Qu’ utilization in Jian-flavor Baijiu fermentation[J]. Food Research International, 2025, 200: 115463.DOI:10.1016/j.foodres.2024.115463.
[49] Shi Gailing, Fang Chao, Xing Shuang, et al. Heterogenetic mechanism in high-temperature Daqu fermentation by traditional craft and mechanical craft: from microbial assembly patterns to metabolism phenotypes[J]. Food Research International, 2024, 187: 114327. DOI:10.1016/j.foodres.2024.114327.
[50] Wang Zheng, Ji Xueao, Wang Shilei, et al. Sugar profile regulates the microbial metabolic diversity in Chinese Baijiu fermentation[J].International Journal of Food Microbiology, 2021, 359: 109426.DOI:10.1016/j.ijfoodmicro.2021.109426.
[51] Wang Bowen, Wu Qun, Xu Yan, et al. Synergistic effect of multiple saccharifying enzymes on alcoholic fermentation for Chinese Baijiu production[J]. Applied and Environmental Microbiology, 2020, 86(8): e00013-20. DOI:10.1128/aem.00013-20.
[52] Galanopoulou A P, Haimala I, Georgiadou D N, et al. Characterization of the highly efficient acid-stable xylanase and β-xylosidase system from the fungus Byssochlamys spectabilis ATHUM 8891 (Paecilomyces variotii ATHUM 8891)[J]. Journal of Fungi, 2021, 7(6): 430. DOI:10.3390/jof7060430.
[53] Xie Jianhua, He Zhimei, Wang Zheng, et al. Efficient expression of a novel thermophilic fungal β-mannosidase from Lichtheimia ramosa with broad-range pH stability and its synergistic hydrolysis of locust bean gum[J]. Journal of Bioscience and Bioengineering, 2019, 128(4): 416-423. DOI:10.1016/j.jbiosc.2019.04.007.
[54] Zhao Jinzhi, Yang Yi, Teng Mengjing, et al. Metaproteomics profiling of the microbial communities in fermentation starters (Daqu) during multi-round production of Chinese liquor[J]. Frontiers in Nutrition, 2023, 10: 1139836. DOI:10.3389/fnut.2023.1139836.
[55] Prakasham R S, Subba Rao C, Sreenivas Rao R, et al. Enhancement of acid amylase production by an isolated Aspergillus awamori[J]. Journal of Applied Microbiology, 2007, 102(1): 204-211. DOI:10.1111/j.1365-2672.2006.03058.x.
[56] Chen Bi, Wu Qun, Xu Yan. Filamentous fungal diversity and community structure associated with the solid state fermentation of Chinese Maotai-flavor liquor[J]. International Journal of Food Microbiology, 2014, 179: 80-84. DOI:10.1016/j.ijfoodmicro.2014.03.011.
[57] Batt C A, Tortorello M L. Encyclopedia of food microbiology[M].2nd ed. San Diego: Academic Press, 2014.
[58] Carroll E, Trinh T N, Son H, et al. Comprehensive analysis of fungal diversity and enzyme activity in nuruk, a Korean fermenting starter,for acquiring useful fungi[J]. Journal of Microbiology, 2017, 55(5):357-365. DOI:10.1007/s12275-017-7114-z.
[59] Thorsen T S, Johnsen A H, Josefsen K, et al. Identification and characterization of glucoamylase from the fungus Thermomyces lanuginosus[J]. Biochimica et Biophysica Acta (BBA)-Proteins and Proteomics, 2006, 1764(4): 671-676. DOI:10.1016/j.bbapap.2006.01.009.
[60] Wang Juwei, Han Peijie, Han Dayong, et al. Genetic diversity and population structure of the amylolytic yeast Saccharomycopsis fibuligera associated with Baijiu fermentation in China[J]. Journal of Microbiology, 2021, 59(8): 753-762. DOI:10.1007/s12275-021-1115-7.
[61] 戴奕杰, 李宗军, 田志强, 等. 酱香型白酒酿造过程中微生物 及其代谢产物研究进展[J]. 酿酒科技, 2018(11): 85-96. DOI:10.13746/j.njkj.2018299.
[62] Yang Liang, Fan Wenlai, Xu Yan. GC × GC-TOF/MS and UPLC-Q-TOF/MS based untargeted metabolomics coupled with physicochemical properties to reveal the characteristics of different type Daqus for making soy sauce aroma and flavor type Baijiu[J].LWT-Food Science and Technology, 2021, 146: 111416. DOI:10.1016/j.lwt.2021.111416.
[63] 丁芳, 张原頔, 蒋英丽, 等. 不同等级高温大曲微生物群落和代谢物的特征分析[J]. 中国酿造, 2022, 41(11): 24-30. DOI:10.11882/j.issn.0254-5071.2022.11.005.
[64] 张柱, 黄钧, 周荣清, 等. 红曲霉对高温大曲的扰动及制曲工艺探究[J]. 食品与发酵工业, 2025, 51(2): 275-284. DOI:10.13995/j.cnki.11-1802/ts.038987.
[65] 杜闪, 王雪花, 杨政茂, 等. 生物转化合成β-苯乙醇代谢途径及其调控的研究[J]. 食品与发酵工业, 2014, 40(1): 168-173.
[66] 王高伟, 曹润洁, 陈双, 等. 采用顶空固相微萃取结合全二维气相色谱飞行时间质谱解析不同等级中高温大曲的挥发性组分差异特征[J]. 食品与发酵工业, 2025, 51(2): 285-292. DOI:10.13995/j.cnki.11-1802/ts.039024.
[67] 朱艳美, 陈亨业, 邓高琼, 等. 高温大曲白酒中吡嗪类化合物的检测、来源、香气和功能活性研究进展[J]. 食品工业科技, 2023,44(5): 420-428. DOI:10.13386/j.issn1002-0306.2022040256.
[68] 陈心雨, 刘念, 王超凯, 等. 高温大曲中美拉德反应的研究进展[J].食品与发酵科技, 2023, 59(6): 109-112. DOI:10.3969/j.issn.1674-506X.2023.06-018.
[69] 姜庆昊, 翟忠英, 赵英, 等. 湘产高温大曲主发酵期微生物群落演替及主要酶系动态分析[J]. 食品与发酵工业, 2024, 50(13): 82-90.DOI:10.13995/j.cnki.11-1802/ts.038394.
[70] Yang Liang, Fan Wenlai, Xu Yan. Chameleon-like microbes promote microecological differentiation of Daqu[J]. Food Microbiology, 2023,109: 104144. DOI:10.1016/j.fm.2022.104144.
[71] 张巧玲, 吕锡斌, 秦兴, 等. 酱香型白酒高温大曲游离氨基酸比较分析[J]. 中国酿造, 2019, 38(4): 53-57. DOI:10.11882/j.issn.0254-5071.2019.04.011.
[72] Boekel M A J S V. Formation of flavour compounds in the Maillard reaction[J]. Biotechnology Advances, 2006, 24(2): 230-233.DOI:10.1016/j.biotechadv.2005.11.004.
[73] Liu Xiaogang, Ma Dongna, Yang Chen, et al. Microbial community succession patterns and drivers of Luxiang-flavor Jiupei during long fermentation[J]. Frontiers in Microbiology, 2023, 14: 1109719.DOI:10.3389/fmicb.2023.1109719.
[74] Wang Yingyu, Zhang Chenhao, Liu Fengsong, et al. Ecological succession and functional characteristics of lactic acid bacteria in traditional fermented foods[J]. Critical Reviews in Food Science and Nutrition, 2023, 63(22): 5841-5855. DOI:10.1080/10408398.2021.2025035.
[75] Wang H Y, Xu Y. Effect of temperature on microbial composition of starter culture for Chinese light aroma style liquor fermentation[J].Letters in Applied Microbiology, 2015, 60(1): 85-91. DOI:10.1111/lam.12344.
[76] Wang Mingyao, Yang Jiangang, Zhao Qingsong, et al. Research progress on flavor compounds and microorganisms of Maotai flavor Baijiu[J]. Journal of Food Science, 2017, 84(1): 6-18.DOI:10.1111/1750-3841.14409.
[77] Zhao Changqing, Yan Xueling, Yang Shiting, et al. Screening of Bacillus strains from Luzhou-flavor liquor making for high-yield ethyl hexanoate and low-yield propanol[J]. LWT-Food Science and Technology, 2017, 77: 60-66. DOI:10.1016/j.lwt.2016.11.035.
[78] Gu Fenglin, Chen Yonggan, Fang Yiming, et al. Contribution of Bacillus isolates to the flavor profiles of vanilla beans assessed through aroma analysis and chemometrics[J]. Molecules, 2015, 20(10): 18422-18436. DOI:10.3390/molecules201018422.
[79] Yi S H, Hong S P. Characteristics of bacterial strains with desirable flavor compounds from Korean traditional fermented soybean paste (Doenjang)[J]. Molecules, 2021, 26(16): 5067. DOI:10.3390/molecules26165067.
[80] Cai Wenchao, Xue Yu’ang, Wang Yurong, et al. The fungal communities and flavor profiles in different types of high-temperature daqu as revealed by high-throughput sequencing and electronic senses[J]. Frontiers in Microbiology, 2021, 12: 784651. DOI:10.3389/fmicb.2021.784651.
[81] Gumel A M, Annuar M S M. Thermomyces lanuginosus lipase-catalyzed synthesis of natural flavor esters in a continuous flow microreactor[J].3 Biotech, 2016, 6(1): 24. DOI:10.1007/s13205-015-0355-9.
[82] Du Yake, Xin Wen, Xia Yu, et al. Analysis of fermentation control factors on volatile compounds of primary microorganisms in Jiang-flavor Daqu[J]. Journal of Food Biochemistry, 2022, 46(10): e14277.DOI:10.1111/jfbc.14277.
[83] Dufossé L. Red colourants from filamentous fungi: are they ready for the food industry?[J]. Journal of Food Composition and Analysis,2018, 69: 156-161. DOI:10.1016/j.jfca.2017.11.002.
[84] Xiao Chen, Lu Zhenming, Zhang Xiaojuan, et al. Bio-heat is a key environmental driver shaping the microbial community of mediumtemperature Daqu[J]. Applied and Environmental Microbiology, 2017,83(23): e01550-17. DOI:10.1128/aem.01550-17.
[85] Li Weiwei, Fan Guangsen, Fu Zhilei, et al. Effects of fortification of Daqu with various yeasts on microbial community structure and flavor metabolism[J]. Food Research International, 2020, 129: 108837.DOI:10.1016/j.foodres.2019.108837.
[86] Svanström Å, Boveri S, Boström E, et al. The lactic acid bacteria metabolite phenyllactic acid inhibits both radial growth and sporulation of filamentous fungi[J]. BMC Research Notes, 2013, 6(1):464. DOI:10.1186/1756-0500-6-464.
[87] Delves-Broughton J, Blackburn P, Evans R J, et al. Applications of the bacteriocin, nisin[J]. Antonie van Leeuwenhoek, 1996, 69(2): 193-202.DOI:10.1007/BF00399424.
[88] 雷学俊, 文科雄, 廖勤俭, 等. 不同类型大曲水解淀粉产物及其对微生物群落的影响研究[J/OL]. 食品与发酵工业, 1-11[2026-08-19].https://doi.org/10.13995/j.cnki.11-1802/ts.046474.
[89] 孙丽, 沈希, 张秀, 等. 中温大曲微生物群落及其相互作用研究进展[J/OL]. 食品与发酵工业, 1-11[2026-08-19]. https://doi.org/10.13995/j.cnki.11-1802/ts.046425.