香气是决定葡萄酒品质和消费者购买意愿的关键因素。葡萄酒香气的主要来源有3个:葡萄果实本身的品种香、发酵期间由微生物代谢产生的发酵香及在陈酿期间经橡木桶等处理所产生的陈酿香。其中,发酵香是在酵母将果汁中的糖转化成二氧化碳和乙醇的过程中产生[1]。酿酒酵母(Saccharomyces cerevisiae)菌株的选择会对葡萄酒最终品质和风味产生重要影响[2]。商业酿酒酵母因其发酵速率快、发酵性能稳定和产香浓郁等优点被葡萄酒生产者广泛使用。但长期使用商业酿酒酵母将降低葡萄酒风味的复杂性,使不同种类葡萄酒风味趋同化,从而弱化风土赋予葡萄酒风味的独特性[3]。
除酿酒酵母外,非酿酒酵母在葡萄酒发酵过程中也表现出较好的酿造潜力。部分非酿酒酵母具有较高的β-糖苷酶活性和产酯能力,在葡萄酒发酵过程中可促进芳香类化合物释放,增强葡萄酒香气浓郁度和复杂性,对葡萄酒的最终品质产生积极贡献[4]。选用不同的酵母菌株进行混合发酵,酵母菌之间、酵母菌与代谢产物之间、酵母菌与环境之间会发生复杂的相互作用,产生复杂和独特的代谢图谱[5-6]。因此,为充分发挥非酿酒酵母在葡萄酒发酵中的积极作用,提高香气和风味品质的多样性和复杂性,部分酿酒师会综合考虑地理、气候条件、葡萄品种、栽培条件、酿造工艺、卫生状况等因素,通过控制葡萄酒发酵条件,充分利用非酿酒酵母的酿造优势,将其与酿酒酵母有机结合,酿造出风味复杂、产区特色明显的葡萄酒产品[7]。目前商业化的非酿酒酵母有40余种,主要包括戴尔有孢圆酵母(Torulaspora delbrueckii)、耐热克鲁维酵母(Lachancea thermotolerans)和美极梅奇酵母(Metschnikowia pulcherrima)[8]。戴尔有孢圆酵母是第一个也是商业化应用最多的非酿酒酵母菌种[9-10],其对乙醇的耐受性高于其他非酿酒酵母,并且具有降低挥发酸和乙醛含量、增加甘油含量、释放高含量甘露糖蛋白、降解苹果酸、增强酯类果香等特点,具有单独完成乙醇发酵的潜力,与酿酒酵母混合接种能够增加中链脂肪酸酯含量,增加葡萄酒的香气复杂性,但其酿造特性具有较强的菌株特异性[11-12]。葡萄园有孢汉逊酵母(Hanseniaspora vineae)产酯能力突出[13],与酿酒酵母按合适的比例和方式混合接种能有效增加酯类含量,尤其是高产具有玫瑰、蜂蜜香的乙酸苯乙酯,能够赋予‘霞多丽’葡萄酒玫瑰花香和水果香,增强葡萄酒香气复杂性[14]。目前葡萄园有孢汉逊酵母商业化菌株数量较少,但凭借其独特的产香特性与发酵性能,已展现出巨大的应用潜力。非酿酒酵母的酿造特性与香气表型与复配的酿酒酵母菌株和接种方式(如同时和延迟)密切相关,而营养组分(如葡萄种类)也是重要的影响因素。Cheng Yichao等[15]研究戴尔有孢圆酵母与酿酒酵母混合发酵在‘梅洛’‘紫大夫’‘小维多’‘马瑟兰’‘贵人香’‘长相思’‘白玉霓’和‘小芒森’8个品种葡萄酒中的香气表现,利用正交偏最小二乘判别分析和相关性分析发现白葡萄酒和红葡萄酒的香气特征差异显著,特别是白葡萄酒的C6醇水平较高,而红葡萄酒的高级醇水平较高。Liu Jing等[16]研究M. viticola、M. fructicola和H. uvarum混合发酵‘博莱罗’‘龙多’和‘丽晶’3个冷气候品种葡萄酒中的挥发性组分特征,发现不同非酿酒酵母和不同葡萄品种酿造的葡萄酒各具特色。Puertas等[17]研究戴尔有孢圆酵母TD291和酿酒酵母QA23混合发酵‘帕洛米诺’和‘霞多丽’葡萄酒的香气特征,发现顺序接种TD291和QA23发酵所得葡萄酒具有较低的乙酸含量,‘霞多丽’葡萄酒中的乙醛含量低于‘帕洛米诺’,这表明混合发酵对不同品种葡萄酒的香气品质和风格具有不同影响。
山东蓬莱产区是我国主要的葡萄酒产区之一,属温带季风气候,适宜酿酒葡萄栽培[18],蓬莱产区具备满足海岸葡萄酒生产的3大要素:阳光、沙砾土壤及海洋环境,有利于酿造高品质海岸风格葡萄酒[12]。商业酿酒酵母RX60具有较强的糖转化能力,能稳定地将糖分转化为乙醇,常用于红葡萄酒发酵,能够提升酒体香气浓郁度、清爽度和整体口感平衡性;商业酿酒酵母QA23具有较高的β-葡萄糖苷酶活性,常用于白葡萄酒发酵,能够增强酒体柑橘类(如青柠、葡萄柚等)水果香气。这 2株商业酿酒酵母广泛应用于蓬莱产区葡萄酒生产。本实验室前期筛选到2株本土非酿酒酵母(戴尔有孢圆酵母TD12和葡萄园有孢汉逊酵母HV26),发酵性能稳定,具有较强的产香能力。为进一步强化葡萄品种和产区风土赋予的香气特征,本研究以TD12和HV26为研究对象,分别与商业酿酒酵母RX60和QA23复配,以‘马瑟兰’和‘霞多丽’葡萄为原料,构建复合发酵体系,并以RX60、QA23及本土酿酒酵母SC15单独发酵为对照,系统探究TD12和HV26在不同品种葡萄酒发酵过程中的发酵性能与产香特性,旨在为开发利用山东蓬莱产区本土酵母资源,塑造和提升该产区葡萄酒独特的产品风格和品质提供理论与菌种资源。
1 材料与方法
1.1 菌株、材料与试剂
戴尔有孢圆酵母TD12(CGMCC NO.15162)、葡萄园有孢汉逊酵母HV26(CGMCC NO.33403)为实验室前期自筛,现保藏于中国普通微生物菌种保藏管理中心;酿酒酵母SC15、酿酒酵母RX60 法国Laffort公司;酿酒酵母QA23 法国Lallemand公司。
‘马瑟兰’(还原糖243.80 g/L、可滴定酸4.20 g/L, pH 3.63)与‘霞多丽’(还原糖为162.90 g/L、可滴定酸为6.60 g/L,pH 3.42)均于2022年采摘于中粮长城葡萄酒(蓬莱)有限公司龙脊园。
乙醇(分析纯) 天津化工厂;氯化钠、氢氧化钠、酒石酸(均为分析纯)、香气物质标准品(色谱纯) 美国Sigma-Aldrich公司;焦亚硫酸钾(分析纯) 意大利英纳帝斯有限公司;果胶酶 法国Lamothe-Abiet公司;酵母浸粉 北京奥博星生物技术有限责任公司;葡萄糖(分析纯) 北京拜尔迪生物技术有限公司;蛋白胨 北京中科裕博生物科技有限公司;ddH2O、2×Pfu PCR Mix(含染料)、酵母基因组DNA提取试剂盒 天根生化科技(北京)有限公司;100 bp Plus DNA Ladder 北京索莱宝科技有限公司;WLN琼脂 青岛海博生物技术有限公司。
YPD液体培养基:20 g葡萄糖、20 g蛋白胨、10 g酵母浸粉,蒸馏水定容至1 L,115 ℃高压蒸汽灭菌15 min;WLN培养基:80 g WLN琼脂,蒸馏水溶解并定容至1 L,121 ℃灭菌15 min后冷却至65 ℃制备平板(每板15~20 mL)。
1.2 仪器与设备
SX700全自动高压蒸汽灭菌锅 日本Tomy Digital Biology公司;DL-CJ-2ND超净工作台 北京东联哈尔仪器制造有限公司;DHP-9082恒温培养箱 上海一恒科学仪器有限公司;Sorvall Legend Micro 17微量离心机 赛默飞世尔科技(中国)有限公司;FA1104电子天平(精确到0.01 g) 上海舜宇恒平科学仪器有限公司;C1000 Touch聚合酶链式反应(polymerase chain reaction,PCR)仪 美国Bio-Rad公司;ChampGel 6000全自动凝胶成像系统 北京赛智创业科技有限公司;DW-86L626超低温冰箱 青岛海尔生物医疗股份有限公司;THZ-D恒温摇床 太仓市实验设备厂;HW.SY11-KP3恒温水浴锅 北京市长风仪器仪表公司;1200高效液相色谱仪、7890气相色谱仪 美国安捷伦公司;50/30 μm DVB/CAR/PDMS SPME萃取头 德国Merck公司。
1.3 方法
1.3.1 葡萄酒发酵工艺
‘马瑟兰’葡萄酒发酵工艺流程:葡萄分选→除梗、破碎→添加0.08 g/L焦亚硫酸钾→将葡萄醪接入10 L玻璃发酵罐中(装液量8 L)→添加60 mg/L果胶酶→8 h后接入酵母菌,同时设立自然发酵组,发酵温度控制在24~26 ℃,每天压帽两次。
‘霞多丽’葡萄酒发酵工艺流程:葡萄分选→压榨→添加0.08 g/L焦亚硫酸钾→将葡萄汁接入10 L玻璃发酵罐中(装液量8 L)→添加60 mg/L果胶酶→12 h后低温澄清24 h→接入酵母菌,同时设立自然发酵组,发酵温度控制在16~18 ℃。
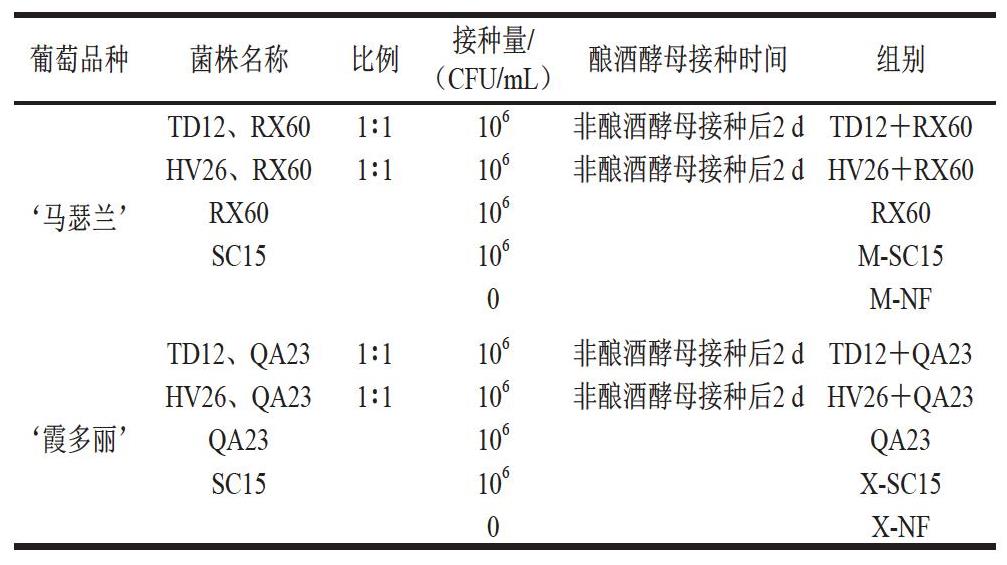
各组酵母菌接种情况如表1所示。将自筛酵母菌按1%接种至YPD液体培养基中,180 r/min、30 ℃培养24 h,离心后用无菌水清洗,按2%接种至葡萄汁中,30 ℃培养48 h。当葡萄汁表面出现绵密泡沫再接种到发酵罐中进行乙醇发酵。商业酿酒酵母(0.2 g/L)在37 ℃温水中活化20 min后接入发酵罐中。葡萄酒发酵过程中,每4 h监测一次密度和温度,当密度不再下降表示乙醇发酵结束,用纱布过滤酒液,添加0.04 g/L焦亚硫酸钾后装瓶备用。
表1 10 L体系下不同品种葡萄酒各发酵组酵母接种方案
Table1 Yeast inoculation scheme for each fermentation group of wines from different varieties at the 10 L scale
葡萄品种菌株名称比例(C接F种U/量mL/)酿酒酵母接种时间组别TD12、RX601∶1106非酿酒酵母接种后2 dTD12+RX60HV26、RX601∶1106非酿酒酵母接种后2 dHV26+RX60‘马瑟兰’RX60106RX60SC15106M-SC150M-NFTD12、QA231∶1106非酿酒酵母接种后2 dTD12+QA23HV26、QA231∶1106非酿酒酵母接种后2 dHV26+QA23‘霞多丽’QA23106QA23SC15106X-SC150X-NF
1.3.2 发酵速率测定
将发酵液用4层纱布过滤,充分搅拌后静置2 min,释放发酵产生的CO2,避免气泡附着比重计造成读数偏差。20 ℃条件下,将静置后的滤液转入250 mL玻璃量筒,将密度计(量程0.980~1.100 g/mL)缓慢垂直放入量筒,轻转比重计振除管壁附着气泡;静置至比重计不触碰筒壁、完全稳定,平视液体凹液面下缘,读取刻度,得到密度/(g/mL),以此评估发酵速率。
1.3.3 主发酵产物测定
发酵样品经0.22 μm水相滤膜过滤后,采用高效液相色谱法测定葡萄糖、果糖、甘油、乙醇及有机酸含量。色谱条件:HPX-87H色谱柱(300 mm×7.8 mm,9 μm),流动相5 mmoL/L硫酸,流速0.6 mL/min。其中,葡萄糖、果糖、甘油和乙醇测定使用示差折光检测器,测定时间30 min,柱温45 ℃,进样量20 μL。有机酸测定采用紫外检测器,在210 nm波长下检测,测定时间25 min,柱温45 ℃,进样量20 μL。基于色谱保留时间对挥发性组分进行定性;采用标准品建立标准曲线,对目标化合物进行定量[19]。
1.3.4 挥发性香气物质(volatile aroma compounds,VACs)测定
采用顶空固相微萃取-气相色谱-质谱(headspace solid phase microextraction-gas chromatography-mass spectrometry,HS-SPME-GC-MS)法进行VACs测定[14,20-22]。 将5 mL葡萄酒样品加入至20 mL样品瓶中,加入1.5 g氯化钠、10 μL内标(1.000 9 g/L 4-甲基-2-戊醇),快速用具有聚四氟乙烯隔垫的瓶盖拧紧,密封后置于多功能自动进样器上。采用50/30 μm DVB/CAR/PDMS萃取头进行萃取,萃取条件:40 ℃吸附30 min后,以500 r/min振荡提取30 min。使用HP-INNOWax毛细管柱(60 m×0.25 mm,0.25 μm),载气为高纯(纯度99.999%)氦气,流速1 mL/min,采用分流模式进样,分流比5∶1。柱温箱升温程序:起始柱温50 ℃,保持1 min;以3 ℃/min升至220 ℃,保持3 min;以10 ℃/min升至240 ℃,保持5 min,共运行63 min。电子电离源,离子源能量70 eV,质量扫描范围m/z 30~350。
定性分析:使用自动质谱图解卷积与鉴定系统完成色谱峰识别。将VACs质谱图、保留指数分别与标准品、NIST 2014质谱数据库比对,实现化合物定性。定量分析:在15%乙醇中加入4 g/L葡萄糖和4 g/L酒石酸,用氢氧化钠将pH值调至3.4,即为葡萄酒模拟基质溶液。采用色谱纯乙醇溶解香气物质标准品,配制成标准品母液,将母液添加至50 mL模拟基质溶液中,并连续稀释15个梯度,得到涵盖酒样中香气物质含量区间的系列标准工作液。以目标化合物质量浓度为横坐标、对应色谱峰面积为纵坐标建立基质匹配标准曲线,依据标准曲线计算酒样中各挥发性香气组分的含量。
1.4 数据处理
采用Excel 2016进行数据处理,采用SPSS Statistics 26对主发酵产物和VACs进行单因素方差分析,采用Origin 2025进行主成分分析(principal component analysis,PCA),雷达图、哑铃图和热图使用ChiPlot(https://www.chiplot.online/)绘制,其他图使用GraphPad Prism 9.0绘制。
2 结果与分析
2.1 不同酵母组合发酵‘马瑟兰’和‘霞多丽’葡萄酒过程中发酵液密度动态变化
如图1所示,不同接种组在不同葡萄品种中的发酵速率差异较大。‘马瑟兰’各发酵组在108~180 h完成乙醇发酵(图1a)。其中,最早完成发酵的是M-SC15组(108 h),其次是RX60组(144 h)、HV26+RX60组(156 h)和TD12+RX60组(168 h),发酵速率最慢的是M-NF组(180 h)。与‘马瑟兰’组相比,‘霞多丽’组乙醇发酵时间较长,发酵时间为180~240 h(图1b)。其中,X-SC15(180 h)发酵速率最快,但慢于‘马瑟兰’单一接种发酵(M-SC15:108 h)。其他接种组发酵速率由快到慢分别为QA23(204 h)、HV26+QA23(216 h)、TD12+QA23(228 h)和X-NF(240 h),这与‘马瑟兰’中的趋势一致。红葡萄酒(‘马瑟兰’)发酵时间短于白葡萄酒(‘霞多丽’)的主要原因是所采用的发酵温度不同,较低的发酵温度有利于保持白葡萄酒香气。另外,混菌发酵速率慢于单菌发酵,但快于自然发酵,这与多数相关研究结果一致。刘晓燕等[23]将2种非酿酒酵母和3种商业酿酒酵母顺序接种进行混合发酵,发现混菌发酵比酿酒酵母单菌发酵时间慢2~3 d,其主要原因是混合发酵时不同酵母之间会发生拮抗作用。
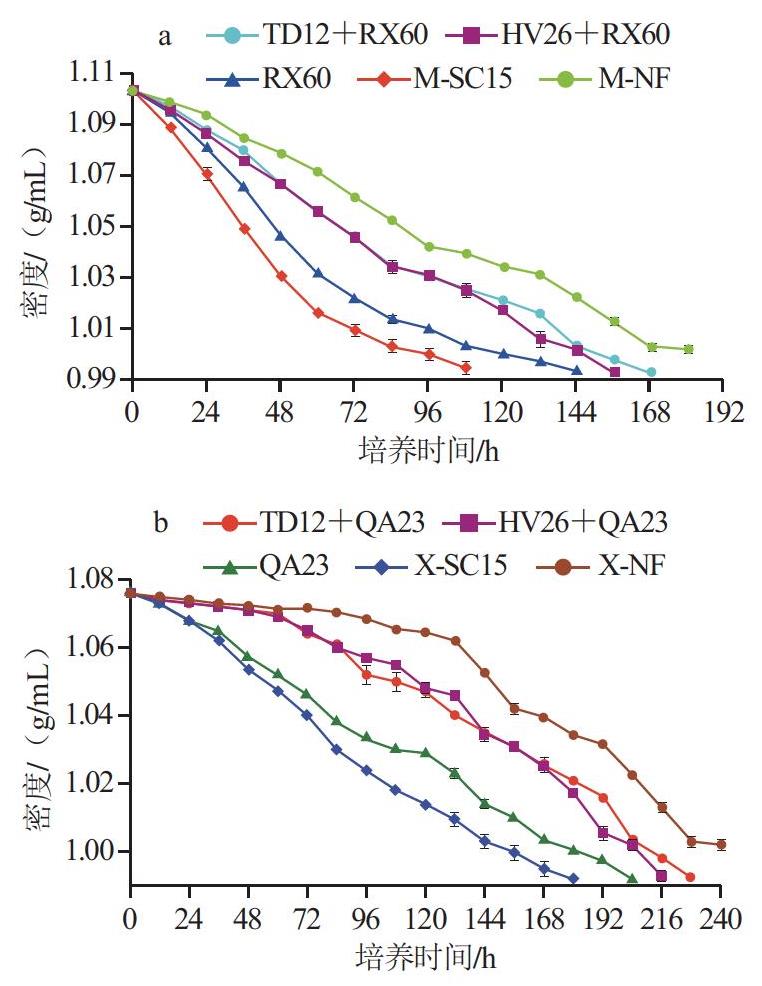
图1 不同酵母组合发酵‘马瑟兰’(a)和‘霞多丽’(b)葡萄酒过程中发酵液密度动态变化曲线
Fig.1 Dynamic density-change curves of fermentation broths during fermentation of ‘Marselan’ (a) and ‘Chardonnay’ (b) wines by different yeast combinations
2.2 不同酵母组合发酵‘马瑟兰’和‘霞多丽’葡萄酒主发酵产物
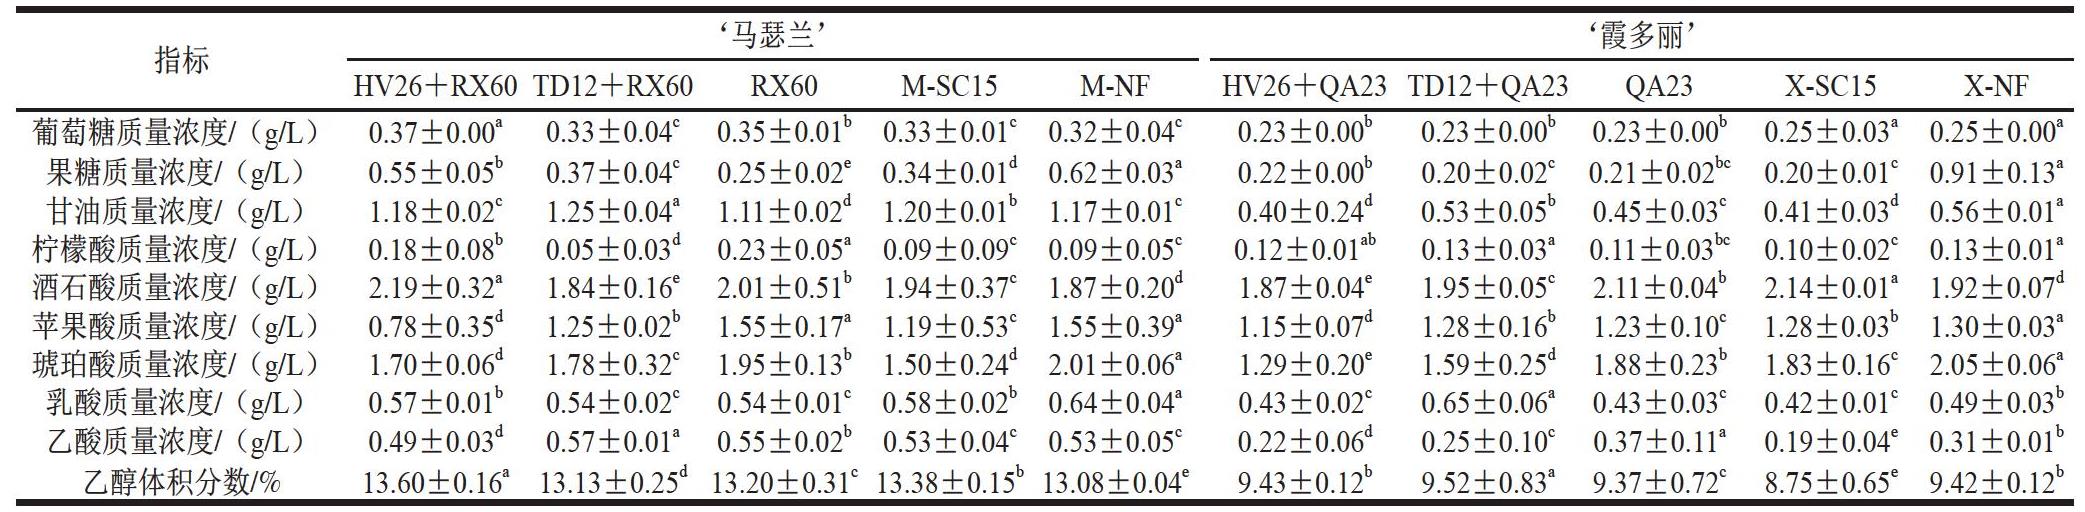
由表2可知,在‘马瑟兰’葡萄酒中,各发酵组葡萄糖和果糖质量浓度范围分别为0.32~0.37 g/L和0.25~0.62 g/L, 在‘霞多丽’葡萄酒中,两者质量浓度范围分别为0.23~0.25 g/L和0.20~0.91 g/L,表明各个接种组均顺利完成发酵,达到GB 15037—2006《葡萄酒》规定的干型葡萄酒的残糖标准(≤4 g/L)。‘马瑟兰’葡萄酒中,M-NF组 (葡萄糖:0.32 g/L,果糖:0.62 g/L)残糖质量浓度最高,RX60组(葡萄糖:0.35 g/L,果糖:0.25 g/L)最低;在‘霞多丽’葡萄酒中,TD12+QA23组(葡萄糖:0.23 g/L, 果糖:0.20 g/L)残糖质量浓度最低,发酵最彻底。
甘油是酵母发酵的主要副产物之一,适度含量的甘油能够使葡萄酒口感更加圆润,增强酒体的醇厚感[24]。‘马瑟兰’和‘霞多丽’葡萄酒中各发酵组甘油质量浓度分别为1.11~1.25 g/L和0.40~0.56 g/L,其中质量浓度最高的分别为TD12+RX60(1.25 g/L)和X-NF(0.56 g/L)。与酿酒酵母相比,戴尔有孢圆酵母TD12产甘油能力更强[25],但该特征在‘霞多丽’葡萄酒发酵体系中并未凸显,其自然发酵组甘油含量反而最高,这可能是由于‘霞多丽’葡萄自带的野生酵母具备良好的定殖能力和产甘油能力。本课题组前期研究发现,蓬莱产区‘霞多丽’葡萄酒自然发酵过程中,非酿酒酵母种群丰富,包括葡萄汁有孢汉逊酵母、泽普林假丝酵母、克鲁维毕赤酵母、季也蒙有孢汉逊酵母[26]。
‘马瑟兰’和‘霞多丽’葡萄酒乙醇体积分数分别为13.08%~13.60%和8.75%~9.52%,乙醇体积分数最低的分别为M-NF组与X-SC15组,乙醇体积分数最高的分别为HV26+RX60组与TD12+QA23组。
有机酸是决定葡萄酒酸度、口感平衡与微生物稳定性的关键基础组分。‘马瑟兰’和‘霞多丽’葡萄酒中各类有机酸质量浓度范围为:柠檬酸为0.05~0.23、0.10~0.13 g/L,酒石酸为1.84~2.19、1.87~2.14 g/L,苹果酸为0.78~1.55、1.15~1.30 g/L,琥珀酸为1.50~2.01、1.29~2.05 g/L,乳酸为0.54~0.64、0.42~0.65 g/L,乙酸为0.49~0.57、0.19~0.37 g/L。适量琥珀酸可提升酒体饱满度与咸鲜口感,但含量过高易造成风味失衡。与酿酒酵母单独发酵相比,TD12能有效降低葡萄酒中琥珀酸的含量。乙酸作为酵母代谢的重要副产物,当其质量浓度高于0.8 g/L时,会给葡萄酒带来醋味,对酒的品质产生不良影响[11]。HV26参与发酵的2种葡萄酒乙酸质量浓度(HV26+RX60组:0.49 g/L,HV26+QA23组:0.22 g/L)均较低,另外,HV26参与发酵的2种葡萄酒苹果酸质量浓度(HV26+RX60组:0.78 g/L,HV26+QA23组:1.15 g/L)低于其他组,表明HV26在降低葡萄酒乙酸和苹果酸含量方面具有一定潜力。SC15发酵‘霞多丽’葡萄酒中的乙酸质量浓度最低(0.19 g/L),但在‘马瑟兰’葡萄酒中质量浓度达0.53 g/L,表明SC15的乙酸合成能力受葡萄汁基质组分显著调控,不同葡萄原料所携带的野生酵母种群差异可能也是重要影响因素。综上,非酿酒酵母与酿酒酵母混合接种发酵的主产物表型受葡萄品种的显著影响。
表2 不同酵母组合发酵‘马瑟兰’和‘霞多丽’葡萄酒的主发酵产物含量
Table2 Contents of major fermentation products in ‘Marselan’ and ‘Chardonnay’ wines fermented with different yeast combinations
指标HV26+RX60TD12+RX60‘马R瑟X兰60’M-SC15M-NFHV26+QA23TD12+QA23‘霞Q多A丽23’X-SC15X-NF葡萄糖质量浓度/(g/L)0.37±0.00a0.33±0.04c0.35±0.01b0.33±0.01c0.32±0.04c0.23±0.00b0.23±0.00b0.23±0.00b0.25±0.03a0.25±0.00a果糖质量浓度/(g/L)0.55±0.05b0.37±0.04c0.25±0.02e0.34±0.01d0.62±0.03a0.22±0.00b0.20±0.02c0.21±0.02bc0.20±0.01c0.91±0.13a甘油质量浓度/(g/L)1.18±0.02c1.25±0.04a1.11±0.02d1.20±0.01b1.17±0.01c0.40±0.24d0.53±0.05b0.45±0.03c0.41±0.03d0.56±0.01a柠檬酸质量浓度/(g/L)0.18±0.08b0.05±0.03d0.23±0.05a0.09±0.09c0.09±0.05c0.12±0.01ab0.13±0.03a0.11±0.03bc0.10±0.02c0.13±0.01a酒石酸质量浓度/(g/L)2.19±0.32a1.84±0.16e2.01±0.51b1.94±0.37c1.87±0.20d1.87±0.04e1.95±0.05c2.11±0.04b2.14±0.01a1.92±0.07d苹果酸质量浓度/(g/L)0.78±0.35d1.25±0.02b1.55±0.17a1.19±0.53c1.55±0.39a1.15±0.07d1.28±0.16b1.23±0.10c1.28±0.03b1.30±0.03a琥珀酸质量浓度/(g/L)1.70±0.06d1.78±0.32c1.95±0.13b1.50±0.24d2.01±0.06a1.29±0.20e1.59±0.25d1.88±0.23b1.83±0.16c2.05±0.06a乳酸质量浓度/(g/L)0.57±0.01b0.54±0.02c0.54±0.01c0.58±0.02b0.64±0.04a0.43±0.02c0.65±0.06a0.43±0.03c0.42±0.01c0.49±0.03b乙酸质量浓度/(g/L)0.49±0.03d0.57±0.01a0.55±0.02b0.53±0.04c0.53±0.05c0.22±0.06d0.25±0.10c0.37±0.11a0.19±0.04e0.31±0.01b乙醇体积分数/%13.60±0.16a13.13±0.25d13.20±0.31c13.38±0.15b13.08±0.04e9.43±0.12b9.52±0.83a9.37±0.72c8.75±0.65e9.42±0.12b
注:同行小写字母不同表示同一品种、不同组别差异显著(P<0.05)。
2.3 不同酵母组合发酵‘马瑟兰’和‘霞多丽’葡萄酒VACs
由图2a~c可知,在‘马瑟兰’葡萄酒中共检出39种VACs(C6醇类3种、高级醇类10种、酯类16种、挥发酸类5种、萜烯类2种、其他3种)。苯乙醇是葡萄酒重要的呈香物质,可赋予酒体玫瑰香[27]。苯乙醇在HV26+RX60组 (140.79 mg/L)、TD12+RX60组(110.70 mg/L)、M-SC15组(196.80 mg/L)中的质量浓度均高于RX60组(99.49 mg/L),分别提高41.51%、11.27%和97.81%,表明本土酵母产苯乙醇能力强于商业酵母。HV26+RX60组的2,3-丁二醇质量浓度(72.08 mg/L,黄油味、奶酪味)分别是TD12+RX60组和RX60组的1.20倍和1.85倍。TD12+RX60组异丁酸质量浓度(4.37 mg/L, 酸味、奶酪味)最高,分别是HV26+RX60组和 RX60组的1.14倍和1.51倍。乙酸乙酯在酯类物质含量最高(低浓度时表现为果香和花香),各发酵组质量浓度为35.37~44.97 mg/L,M-NF组含量最低,HV26+ RX60组含量最高。辛酸乙酯、癸酸乙酯、乙酸异戊酯、乙酸己酯含量在TD12+RX60组最高。罗来庆等[28]探究3个非酿酒酵母分别与酿酒酵母混合发酵对葡萄酒香气的影响发现,与酿酒酵母单菌发酵相比,各混菌发酵组乙酸乙酯含量均增加10%,且克鲁维毕赤酵母HSX-5、 戴尔有孢圆酵母YQX-8和长孢洛德酵母MNS-6与酿酒酵母AWRI 796混菌发酵组辛酸乙酯分别提升76.6%、35.5%和5.5%。张博钦等[14]研究发现,葡萄园有孢汉逊酵母CVE-HV6与酿酒酵母EC1118混菌发酵组乙酸乙酯含量较EC1118单独发酵组提升281.22%。周得刚等[29]也发现戴尔有孢圆酵母与酿酒酵母混菌发酵组辛酸乙酯、乙酸异戊酯和乙酸己酯等酯类香气物质含量较高。这些结果与本研究结果相似,表明2株非酿酒酵母与酿酒酵母混菌发酵有利于增强红葡萄酒的果香特征和香气复杂性。
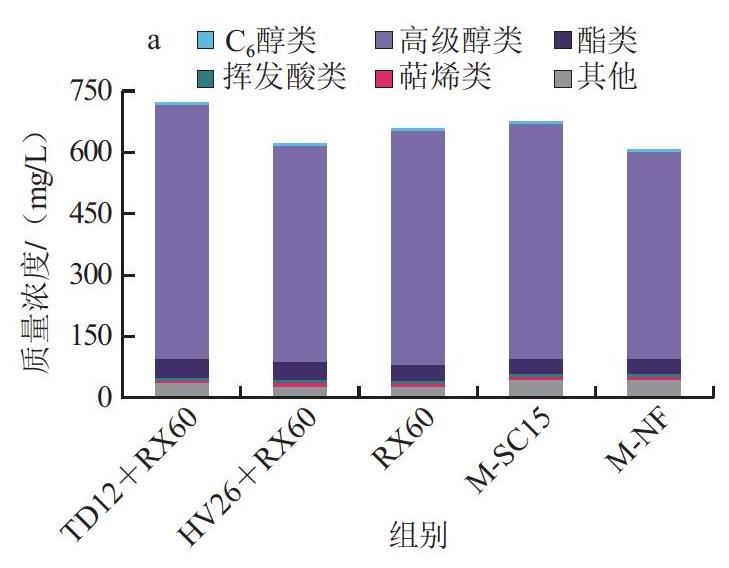
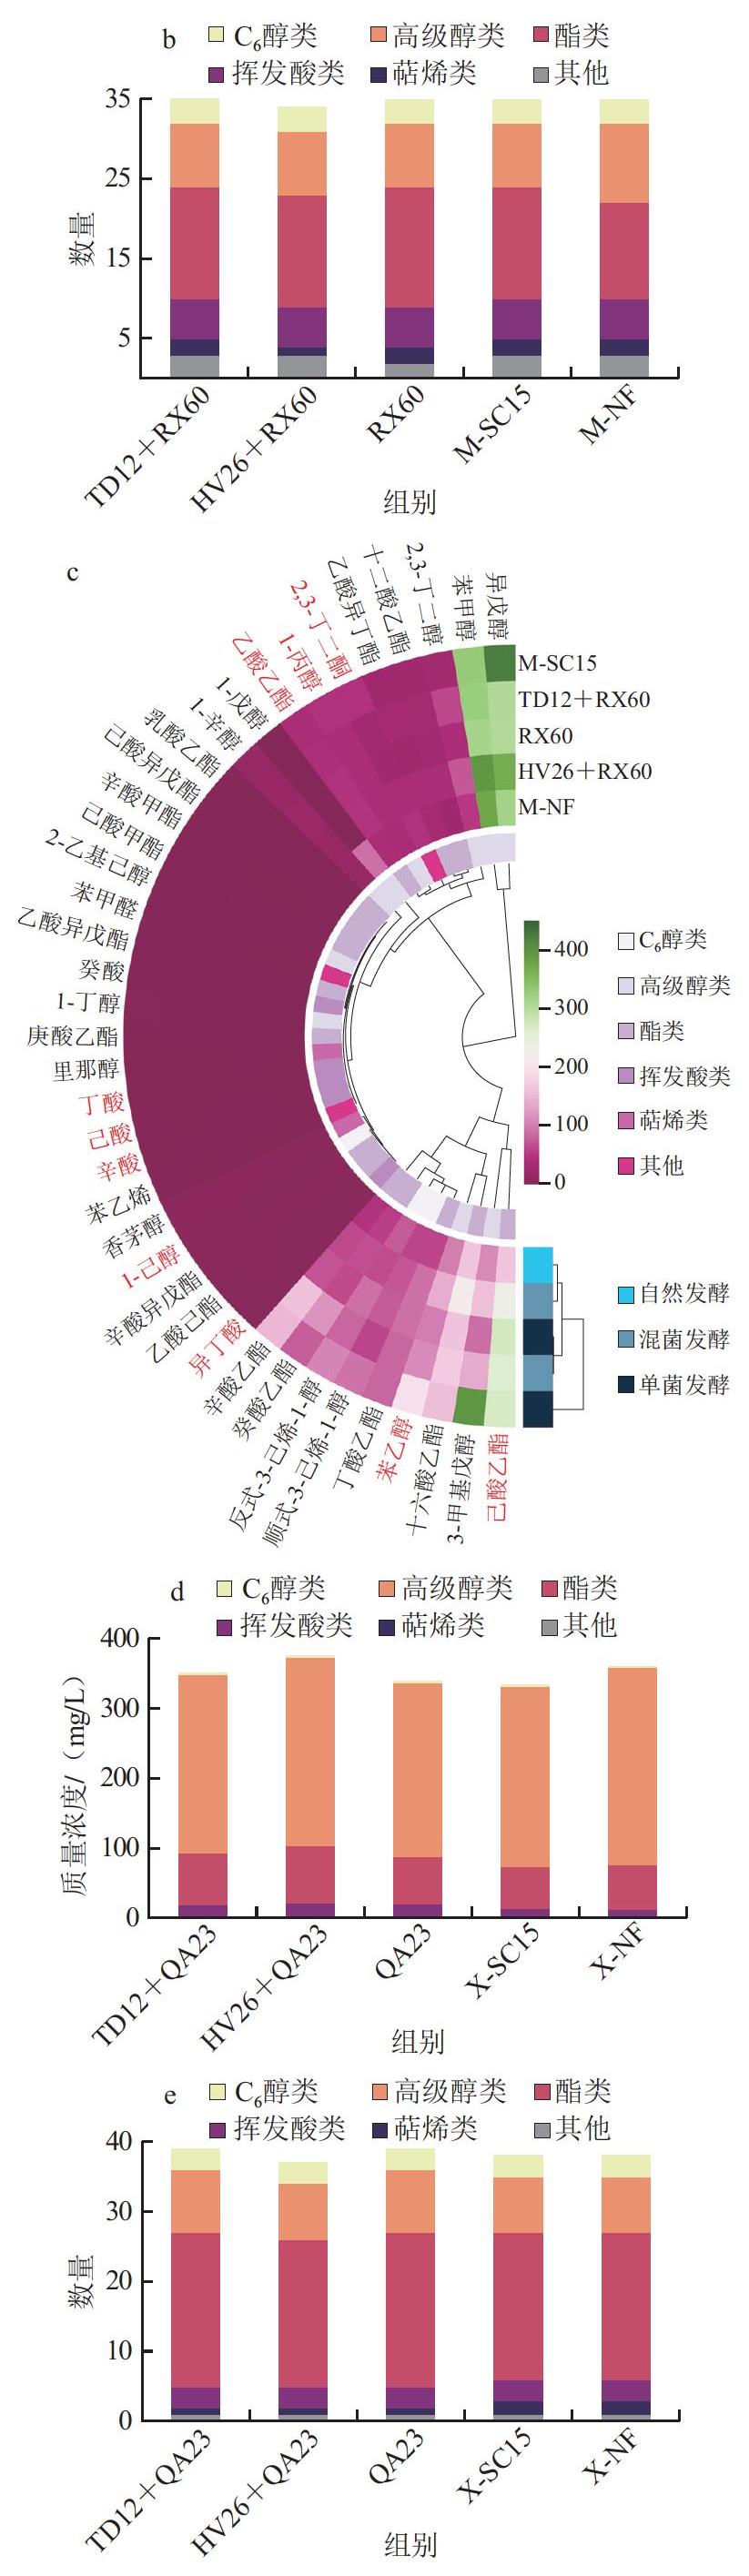
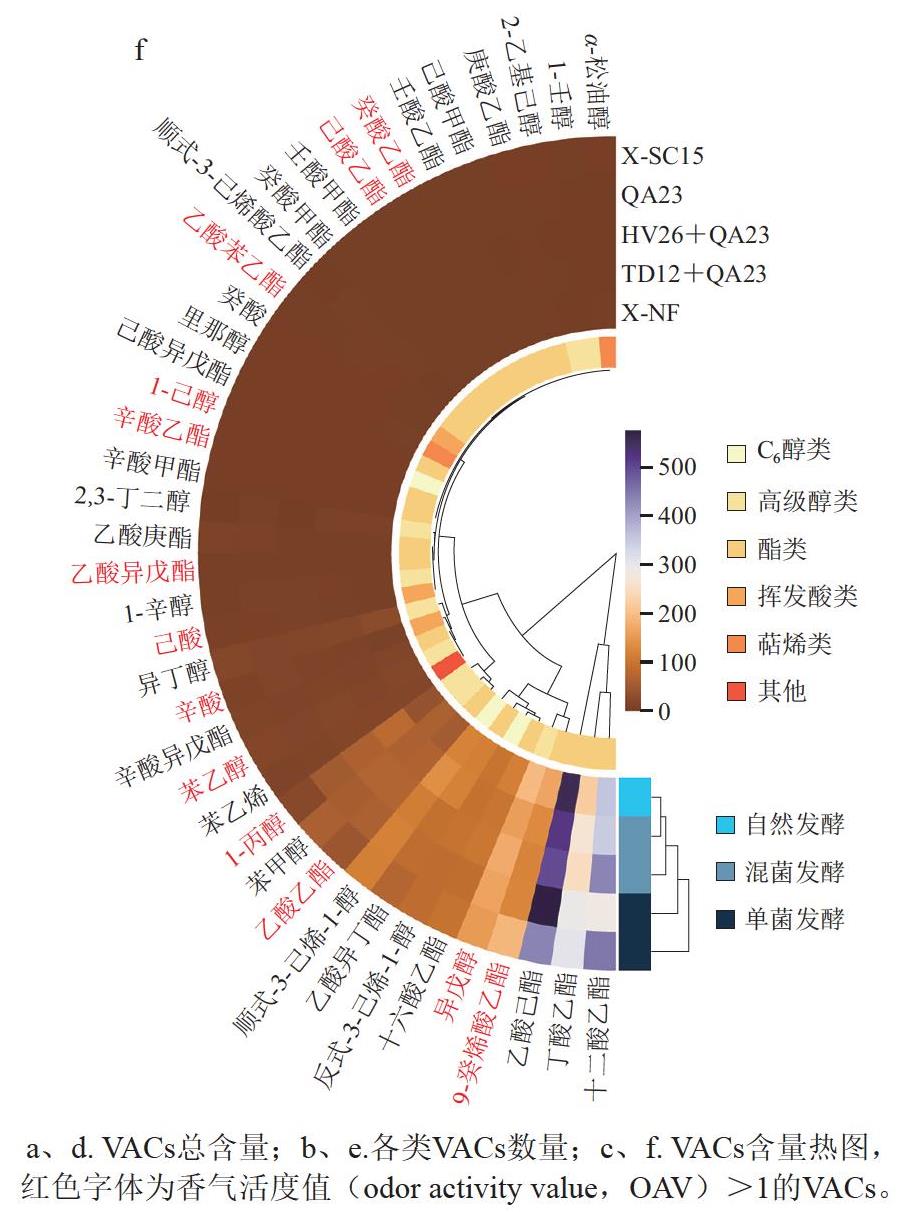
图2 不同酵母组合发酵‘马瑟兰’和‘霞多丽’葡萄酒中VACs对比
Fig.2 Comparison of VACs in ‘Marselan’ and ‘Chardonnay’ wines fermented with different yeast combinations
由图2d~f可知,在‘霞多丽’葡萄酒中共检出40种VACs(C6醇类3种、高级醇类9种、酯类22种、挥发酸类3种、萜烯类2种、其他1种)。各发酵组高级醇总质量浓度在249.05~281.96 mg/L之间,均低于300 mg/L,以QA23组高级醇含量最低。高级醇对香气具有积极贡献,能够增加葡萄酒香气的复杂性。其中,TD12+QA23组(255.67 mg/L)高级醇总质量浓度低于HV26+QA23组(269.13 mg/L)、X-SC15组(258.00 mg/L)和X-NF组(281.96 mg/L)。酯类物质总质量浓度由高到低分别为HV26+QA23组(82.46 mg/L)、TD12+ QA23组(74.17 mg/L)、QA23组(67.66 mg/L)、 X-NF组(64.11 mg/L)、X-SC15组(60.38 mg/L)。其中,HV26+QA23组(3.98 mg/L)乙酸苯乙酯(玫瑰和蜂蜜香)含量最高,分别是TD12+QA23组、QA23组、X-SC15组和X-NF组的2.15、2.54、3.59倍和3.90倍,表明HV26与酿酒酵母混合发酵能够显著增加白葡萄酒的花果类香气。
2种葡萄酒中VACs总含量最高的均为高级醇,种类最多的均为酯类。‘马瑟兰’葡萄酒(图2a)各发酵组VACs总量高于‘霞多丽’葡萄酒(图2d);而‘霞多丽’葡萄酒(图2e)各发酵组酯类物质总数量占比高于‘马瑟兰’葡萄酒(图2b)。与‘马瑟兰’葡萄酒一样,乙酸乙酯也是‘霞多丽’葡萄酒中含量最高的酯类物质,其中HV26+QA23组乙酸乙酯质量浓度最高(67.93 mg/L),分别是TD12+QA23组、QA23组、X-SC15组和X-NF组的1.03、1.11、1.57倍和1.29倍,表明TD12和HV26参与的混菌发酵有助于提升红葡萄酒VACs总量,特别是HV26,在白葡萄酒发酵过程中,能够降低挥发酸含量、促进酯类物质合成(特别是乙酸苯乙酯);与之相比,TD12混菌发酵降低高级醇含量能力较强。
为筛选混合发酵条件下对‘马瑟兰’和‘霞多丽’葡萄酒特征风味具有重要贡献的VACs,采用OAV对葡萄酒中各VACs的贡献度进行评估。OAV>1表明该组分对葡萄酒风味形成具有显著贡献[30]。由图2c、f可知,在‘马瑟兰’和‘霞多丽’葡萄酒中分别筛选出10种和13种OAV>1的VACs。其中,1-己醇(果香)[31]、1-丙醇、苯乙醇(玫瑰香)[32]、乙酸乙酯(低浓度时表现为果香和花香)[33]、己酸乙酯(果香和草莓香)[34-35]、己酸和辛酸为两个品种葡萄酒共有,多为能给葡萄酒提供良好风味的物质。丁酸、异丁酸和2,3-丁二酮是‘马瑟兰’葡萄酒特有关键香气物质,异戊醇、9-癸烯酸乙酯、乙酸苯乙酯、乙酸异戊酯、癸酸乙酯和辛酸乙酯是‘霞多丽’葡萄酒特有关键香气物质,这些物质是2种葡萄酒独特风味形成的重要物质基础。其中,异戊醇具有乙醇味、溶剂味,浓度过高会掩盖葡萄酒的果香,破坏风味的协调性。异戊醇在‘霞多丽’葡萄酒中的OAV>1,但在‘马瑟兰’葡萄酒中的OAV<1,其中TD12+RX60组(306.36 mg/L)异戊醇质量浓度低于HV26+RX60组(368.68 mg/L)、M-SC15组(424.61 mg/L)和M-NF组(319.47 mg/L),因此,从降低高级醇含量方面考虑,TD12更适合‘马瑟兰’葡萄酒发酵。1-丙醇含量过高会增加酒体的辛辣味[36],HV26混菌发酵体系(HV26+RX60组和HV26+QA23组)1-丙醇含量在‘马瑟兰’和‘霞多丽’葡萄酒中均低于TD12混菌发酵体系(TD12+RX60组和TD12+QA23组),这表明HV26混菌发酵在降低1-丙醇含量方面能力突出。己酸和辛酸会给葡萄酒带来草本和脂肪味。Ding Yinting等[37]在‘爱格丽’自然发酵葡萄酒中也发现己酸的OAV>1;Arcari等[38]对来自3个不同地区和6个年份的12组‘美乐’葡萄酒的VACs进行检测,结果发现辛酸OAV>1。这表明己酸和辛酸的产生与酵母菌种类和葡萄品种等因素密切相关。本研究中TD12参与的混合发酵体系中己酸和辛酸含量均低于商业酵母发酵体系,表明其在降低脂肪酸浓度方面具有一定潜力。
2.4 基于主发酵产物与关键香气物质的PCA
为直观揭示葡萄品种、酵母种类和接种方式对葡萄酒VACs的影响,对不同发酵组‘马瑟兰’和‘霞多丽’葡萄酒中的主发酵产物和OAV>1的VACs进行PCA。由图3a可知,PC1和PC2分别解释总方差的31.6%和22.6%,累计方差贡献率为54.2%。自然发酵组NF在 第3象限且离原点和其他发酵组较远,表明PCA可以很好地区分自然发酵和接种发酵‘马瑟兰’葡萄酒;混菌发酵组TD12+RX60和HV26+RX60离原点较RX60和SC15更近,表明混菌发酵和单菌发酵可被PCA模型较好地区分。M-SC15组在第1象限,与1-丙醇、1-己醇、苯乙醇和己酸乙酯相关性强,这些物质可为葡萄酒带来花香和果香等优良风味;TD12+RX60组在第2象限,与异丁酸和甘油相关性强;M-NF组在第3象限,与果糖和乳酸的相关性强;HV26+RX60组和RX60组在第4象限,与己酸、乙酸乙酯、柠檬酸、酒石酸和葡萄糖相关性强。
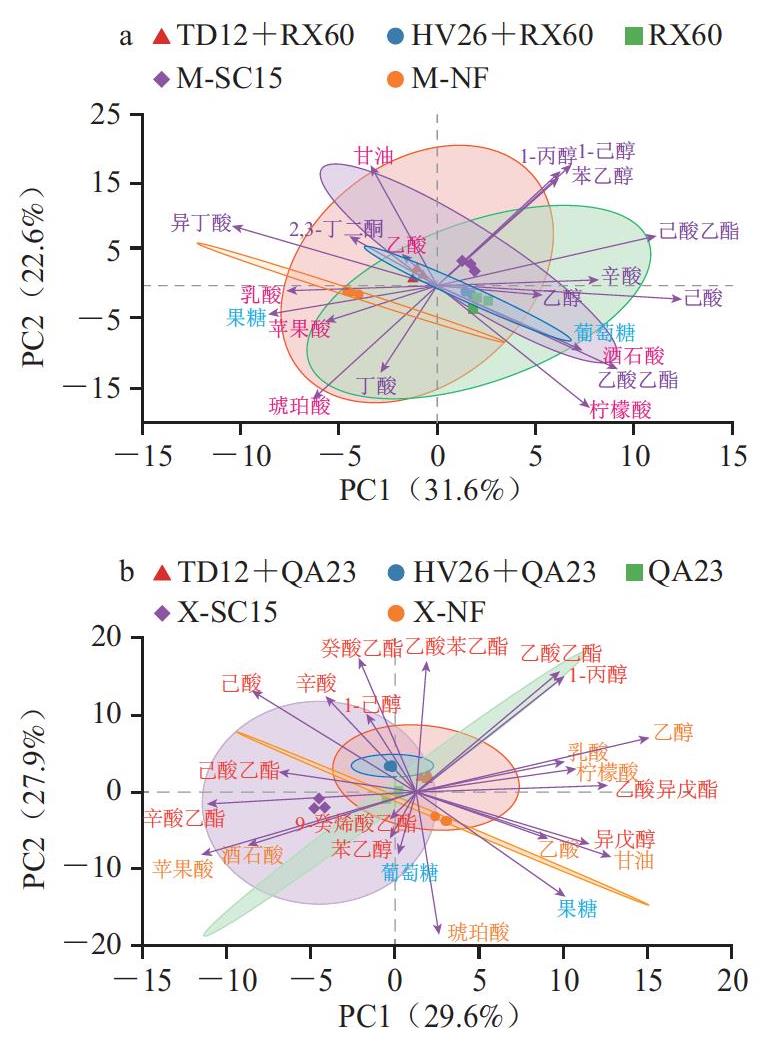
图3 ‘马瑟兰’(a)和‘霞多丽’(b)葡萄酒中主发酵产物和OAV>1 VACs的PCA双标图
Fig.3 Principal component analysis biplots of major fermentation products and volatile aroma compounds with odor activity value > 1 in ‘Marselan’ (a) and ‘Chardonnay’ (b) wines
由图3b可知,PC1和PC2分别解释总方差的29.6%和27.9%,累计方差贡献率为57.5%。与‘马瑟兰’相同,X-NF组被单独划分,表明PCA可以较好地区分自然发酵和接种发酵;混菌发酵组TD12+QA23和HV26+QA23位于正半轴,而单菌发酵组QA23和SC15分别处于原点附近和负半轴,表明混菌发酵和单菌发酵组可以被较好地区分。TD12+QA23组在第1象限,与乙酸苯乙酯、乙酸乙酯和1-丙醇有较强联系,这些物质有助于增强葡萄酒的花香和果香。HV26+QA23组在第2象限,与己酸、辛酸和1-己醇有较强关联;X-SC15在第3象限,与辛酸乙酯、苹果酸关联较强;X-NF在第4象限,与果糖和琥珀酸相关性强。以上结果表明,与单一菌株发酵相比,混合发酵显著改变了2种葡萄酒的感官品质和香气轮廓,提升其香气复杂性和整体品质。
3 结 论
本研究以2株本土非酿酒酵母TD12和HV26与商业酿酒酵母构建混合接种发酵体系,系统探究该体系在红葡萄酒和白葡萄酒酿造过程中的发酵性能和香气品质表现,明确了菌株复配效应、葡萄品种差异对酿造过程及葡萄酒品质的影响。结果表明,2株菌株均具良好产业应用潜力:与单菌发酵相比,混合发酵能够提升葡萄酒香气的复杂性和浓郁度。其中,TD12可显著提升‘马瑟兰’葡萄酒中的甘油含量,降低‘霞多丽’中琥珀酸及异戊醇等高级醇含量,优化酒体口感;HV26能降低2种葡萄酒的乙酸和苹果酸含量,且在‘霞多丽’葡萄酒发酵过程中定向强化乙酸苯乙酯等酯类合成,赋予其玫瑰、蜂蜜香气,提升花果香品质。葡萄品种显著影响发酵周期与VACs组成,特征香气物质呈品种特异性。本研究结果也证实,对于特定非酿酒酵母菌株,其发酵性能和产香特性受葡萄品种和复配酿酒酵母菌株的显著影响。因此,酿酒师在实际生产中,针对目标葡萄品种与品质需求,在使用前应对非酿酒酵母的酿造特性、葡萄品种和酿酒酵母的适配性进行深入评价,实现菌株资源的高效利用与葡萄酒品质的精准提升。本研究可为本土优良葡萄酒酵母菌株的筛选、工艺优化提供理论依据与实践参考。下一阶段在深入解析TD12和HV26的产香机制的同时,将进行更大规模的验证实验,优化混合发酵工艺参数,为产业化应用提供更加完善的理论和技术支撑。
[1] Pretorius I S. Tailoring wine yeast for the new millennium: novel approaches to the ancient art of winemaking[J]. Yeast, 2000, 16(8):675-729. DOI:10.1002/1097-0061(20000615)16:8<675::aid-yea585>3.0.co;2-b.
[2] Maicas S, Mateo J J. The life of Saccharomyces and non-Saccharomyces yeasts in drinking wine[J]. Microorganisms, 2023,11(5): 1178. DOI:10.3390/microorganisms11051178.
[3] Yin Liang, Wang Congcong, Zhu Xiaohua, et al. A multi-step screening approach of suitable non-Saccharomyces yeast for the fermentation of hawthorn wine[J]. LWT-Food Science and Technology, 2020, 127:109432. DOI:10.1016/j.lwt.2020.109432.
[4] Sun Wangsheng, Chen Xiaowen, Bi Pengfei, et al. Screening and characterization of indigenous non-Saccharomyces cerevisiae with high enzyme activity for kiwifruit wine production[J]. Food Chemistry,2024, 440: 138309. DOI:10.1016/j.foodchem.2023.138309.
[5] Escribano-Viana R, González-Arenzana L, Portu J, et al. Wine aroma evolution throughout alcoholic fermentation sequentially inoculated with non- Saccharomyces/Saccharomyces yeasts[J]. Food Research International, 2018, 112: 17-24. DOI:10.1016/j.foodres.2018.06.018.
[6] Sadoudi M, Tourdot-Maréchal R, Rousseaux S, et al. Yeast-yeast interactions revealed by aromatic profile analysis of Sauvignon Blanc wine fermented by single or co-culture of non-Saccharomyces and Saccharomyces yeasts[J]. Food Microbiology, 2012, 32(2): 243-253. DOI:10.1016/j.fm.2012.06.006.
[7] Comitini F, Gobbi M, Domizio P, et al. Selected non-Saccharomyces wine yeasts in controlled multistarter fermentations with Saccharomyces cerevisiae[J]. Food Microbiology, 2011, 28(5): 873-882. DOI:10.1016/j.fm.2010.12.001.
[8] Vejarano R, Gil-Calderón A. Commercially available non-Saccharomyces yeasts for winemaking: current market, advantages over Saccharomyces, biocompatibility, and safety[J]. Fermentation, 2021, 7(3): 171. DOI:10.3390/fermentation7030171.
[9] 王婧, 李敏, 高娉娉, 等. 耐热克鲁维酵母和戴尔有孢圆酵母在冰葡萄酒酿造中的应用潜力[J]. 食品与发酵工业, 2021, 47(1): 79-87.DOI:10.13995/j.cnki.11-1802/ts.025161.
[10] Balmaseda A, Rozès N, Bordons A, et al. The use of Torulaspora delbrueckii to improve malolactic fermentation[J]. Microbial Biotechnology, 2024, 7(1): e14302. DOI:10.1111/1751-7915.14302.
[11] Benito S. The impact of Torulaspora delbrueckii yeast in winemaking[J]. Applied Microbiology and Biotechnology, 2018,102(7): 3081-3094. DOI:10.1007/s00253-018-8849-0.
[12] 张明霞, 吴玉文, 段长青. 葡萄与葡萄酒香气物质研究进展[J].中国农业科学, 2008, 41(7): 2098-2104. DOI:10.3864/j.issn.0578-1752.2008.07.030.
[13] Lleixà J, Martín V, Giorello F, et al. Analysis of the NCR mechanisms in Hanseniaspora vineae and Saccharomyces cerevisiae during winemaking[J]. Frontiers in Genetics, 2019, 9: 747. DOI:10.3389/fgene.2018.00747.
[14] 张博钦, 方梓庄, 成池芳, 等. 5株低产乙醇的非酿酒酵母筛选及其酿造特性[J]. 食品科学, 2021, 42(8): 114-121. DOI:10.7506/spkx1002-6630-20200315-229.
[15] Cheng Yichao, Geng Shijin, Zhang Jin, et al. A comprehensive study on fermentation and aroma contributions of Torulaspora delbrueckii in diverse wine varieties: insights from pure and co-fermentation studies[J]. Food Research International, 2025, 199: 115340. DOI:10.1016/j.foodres.2024.115340.
[16] Liu Jing, Arneborg N, Toldam-Andersen T B, et al. Effect of sequential fermentations and grape cultivars on volatile compounds and sensory profiles of Danish wines[J]. Journal of the Science of Food and Agriculture, 2017, 97(11): 3594-3602. DOI:10.1002/jsfa.8218.
[17] Puertas B, Jiménez M J, Cantos-Villar E, et al. Use of Torulaspora delbrueckii and Saccharomyces cerevisiae in semi-industrial sequential inoculation to improve quality of Palomino and Chardonnay wines in warm climates[J]. Journal of Applied Microbiology, 2017, 122(3): 733-746. DOI:10.1111/jam.13375.
[18] 李金霞, 刘光全, 程池. 酿酒酵母26S rDNA D1/D2区域序列分析及其系统发育研究[J]. 酿酒, 2007, 34(1): 37-39. DOI:10.3969/j.issn.1002-8110.2007.01.017.
[19] Duan L L, Shi Y, Jiang R, et al. Effects of adding unsaturated fatty acids on fatty acid composition of Saccharomyces cerevisiae and major volatile compounds in wine[J]. South African Journal of Enology and Viticulture, 2015, 30(2): 285-295. DOI:10.21548/36-2-962.
[20] Sui Xiuyu, Zhu Zhiqi, Cheng Fansheng, et al. Evaluation of physicochemical properties, antioxidant capacity, and volatile flavor compounds during the wine fermentation of Mei (Prunus mume) fruit[J]. LWT-Food Science and Technology, 2024, 201: 116177. DOI:10.1016/j.lwt.2024.116177.
[21] 尤雅, 段长青, 燕国梁. 扁平云假丝酵母与酿酒酵母混合发酵对葡萄酒乙醇含量及香气的影响[J]. 食品科学, 2018, 39(20): 146-154.DOI:10.7506/spkx1002-6630-201820022.
[22] 刘沛通, 许丹丹, 许引虎, 等. 4株本土非酿酒酵母的发酵特性[J].食品科学, 2021, 42(14): 86-93. DOI:10.7506/spkx1002-6630-20200409-121.
[23] 刘晓燕, 赵晓敏, 张小月, 等. 混菌顺序发酵对赤霞珠干红葡萄酒品质的影响[J]. 中国酿造, 2022, 41(4): 65-72. DOI:10.11882/j.issn.0254-5071.2022.04.011.
[24] Zhao Xiangdong, Procopio S, Becker T. Flavor impacts of glycerol in the processing of yeast fermented beverages: a review[J]. Journal of Food Science and Technology, 2015, 52(12): 7588-7598. DOI:10.1007/s13197-015-1977-y.
[25] Silva-Sousa F, Oliveira B, Franco-Duarte R, et al. Bridging the gap:linking Torulaspora delbrueckii genotypes to fermentation phenotypes and wine aroma[J]. FEMS Yeast Research, 2024, 24: foae034.DOI:10.1093/femsyr/foae034.
[26] 陆洋洋, 张熠莹, 兰义宾, 等. 山东蓬莱产区4种酿酒葡萄自然发酵中酵母菌的多样性[J]. 食品科学, 2025, 46(12): 127-136.DOI:10.7506/spkx1002-6630-20241028-188.
[27] Wang Ziran, Zhou Jingyuan, Xu Xiangyu, et al. Adoption of table grape cultivars: an attribute preference study on Chinese grape growers[J]. Scientia Horticulturae, 2017, 216: 66-75. DOI:10.1016/j.scienta.2017.01.001.
[28] 罗来庆, 林海明, 焦宇知, 等. 非酿酒酵母与酿酒酵母混合发酵对葡萄酒香气的影响[J]. 中国酿造, 2022, 41(10): 89-94. DOI:10.11882/j.issn.0254-5071.2022.10.015.
[29] 周得刚, 徐彬艳, 王青霞, 等. 戴尔有孢圆酵母与酿酒酵母细胞间接触对‘赤霞珠’葡萄酒风味品质的影响[J]. 中国农业科学, 2024,57(16): 3264-3282. DOI:10.3864/j.issn.0578-1752.2024.16.013.
[30] Sui Xiuyu, Zhu Zhiqi, Cheng Fansheng, et al. Dynamic changes and correlation of quality, flavor and microorganisms of Mei (Prunus mume) vinegar during fermentation and clarification[J]. Food Research International, 2024, 197: 115209. DOI:10.1016/j.foodres.2024.115209.
[31] 曾硕, 郭新宇, 牛东升, 等. 多手段评测5种猕猴桃的挥发性风味成分[J]. 果树学报, 2025, 42(7): 1518-1531. DOI:10.13925/j.cnki.gsxb.20250100.
[32] 曾奥, 许炳烨, 王雪, 等. 新疆大果沙棘原浆、籽油和果油气味特征及产品间相关性[J]. 北京林业大学学报, 2024, 46(2): 132-142.DOI:10.12171/j.1000-1522.20230241.
[33] 高熳熳. 发酵工艺影响赤霞珠葡萄酒品质的机制研究[D]. 天津:天津科技大学, 2024. DOI:10.27359/d.cnki.gtqgu.2024.000417.
[34] 薛靖侨, 张晓颖, 李斌, 等. 基于GC-MS/GC-IMS联用技术的不同品种草莓特征香气物质解析[J]. 食品工业科技, 2026, 47(16): 313-322.DOI:10.13386/j.issn1002-0306.2025040335.
[35] 王洪, 罗惠波, 廖玉琴, 等. 野生猕猴桃鸭梨利口酒工艺的研究[J].食品研究与开发, 2017, 38(22): 110-115. DOI:10.3969/j.issn.1005-6521.2017.22.023.
[36] La Fuente-Blanco A D, Sáenz-Navajas M P, Ferreira V. Levels of higher alcohols inducing aroma changes and modulating experts’ preferences in wine model solutions: levels of higher alcohols inducing aroma changes[J]. Australian Journal of Grape and Wine Research,2017, 23(2): 162-169. DOI:10.1111/ajgw.12273.
[37] Ding Yinting, Wang Lin, Gao Yujie, et al. Microbial succession during spontaneous fermentation of Ecolly grapes and their important contribution to flavor metabolites[J]. Food Bioscience, 2024, 62:105149. DOI:10.1016/j.fbio.2024.105149.
[38] Arcari S G, Caliari V, Sganzerla M, et al. Volatile composition of Merlot red wine and its contribution to the aroma: optimization and validation of analytical method[J]. Talanta, 2017, 174: 752-766.DOI:10.1016/j.talanta.2017.06.074.