胞外多糖(extracellular polysaccharide,EPS)是菌体生长代谢过程中分泌到细胞外的一类重要次级代谢产物,根据单糖组成主要分为同型多糖和异型多糖[1]。同型多糖由单一类型的单糖构成,如仅由葡萄糖组成的葡聚糖或仅由果糖组成的果聚糖;异型多糖由两种及以上的单糖构成,常见单糖包括葡萄糖、半乳糖、鼠李糖、甘露糖等[1]。EPS不仅具有潜在的抗氧化[2-3]、抗肿瘤[4]及降胆固醇[5]等活性,还因其独特的理化性质,可作为天然食品添加剂应用于食品工业。例如,EPS可作为增稠剂、稳定剂、乳化剂、凝胶剂应用于酸奶、奶酪、饮料等发酵乳制品中,改善产品的质构与口感。研究表明,乳酸菌EPS可赋予发酵乳制品独特的质构和风味,同时具备乳化、增稠及稳定体系的功能。此外,EPS还能够改善食品体系的胶凝及持水等特性[6],在食品行业中展现出广泛的应用潜力[7-8]。
然而,不同乳酸菌菌株的EPS合成能力存在显著差异,且同一菌株的EPS产量受培养基组分与培养条件的显著调控,经工艺优化后EPS产量相较基础条件可提升数倍。例如,Bayburt等[9]研究发现,优化碳源、氮源及培养条件后唾液乳杆菌KC27L和罗伊氏乳杆菌KC21L的EPS产量分别达464 mg/L和433 mg/L,较基础培养基显著提升;Peng Qingting等[10]研究发现,嗜热链球菌IMAU20246在以蔗糖为碳源的培养基中培养时,EPS产量可达(617±5.9)mg/L,分别是以乳糖、葡萄糖和半乳糖为碳源时的1.5、1.2倍和1.8倍。王新等[11]筛选高产EPS乳酸菌并将其应用于酸奶发酵,发现由EPS产量最高菌株所制酸奶的黏度显著高于对照组,说明EPS在提升酸奶黏度及改善产品质构方面也具有积极作用。作为天然食品改良剂,EPS的使用无需在包装上进行额外标注,符合消费者对清洁标签食品的期望。综上,筛选高产EPS乳酸菌并探究提升其EPS合成能力的调控策略具有重要的现实意义,而制备活菌含量高、贮藏稳定性优异的专用菌剂是实现该菌株产业化应用的核心关键。
高密度培养是高活性菌剂制备的关键环节,该技术能够在有限发酵容积和较短培养周期内实现菌体高密度增殖。菌体密度提升可进一步驱动代谢产物EPS产量增长,显著提高单批次发酵体系中EPS总产量。因此,高密度培养可在提高菌剂活性的同时有效解决乳酸菌常规条件下EPS产量普遍较低的问题,为乳酸菌菌体与胞外多糖的工业化高效制备、实际应用提供技术支撑。研究表明,通过调控培养条件可实现菌株EPS产量提升[12]。
本实验室前期从四川泡菜中分离得到一株产EPS的植物乳植杆菌(Lactiplantibacillus plantarum)RS20D,该菌株在基础发酵条件下的EPS产量为322.81 mg/L,该EPS不仅能在体外有效诱导巨噬细胞RAW 264.7释放NO,表现出良好的免疫刺激活性;而且将其应用于发酵乳制备时能有效改善产品质地,显示出优越的应用潜力[13]。然而,目前针对该菌株的高密度发酵工艺参数尚未明确,同时高密度培养体系对菌株EPS合成能力的影响仍缺乏系统性探究。
因此,本研究聚焦植物乳植杆菌RS20D的高密度培养,利用单因素试验与响应面法系统探究并确定其最优培养基组分与发酵条件,同时研究培养条件对菌体EPS产量的影响,以期在获得高密度菌体的同时,实现EPS产量的同步高效提升,从而为该功能性菌株的产业化应用提供良好的参考。
1 材料与方法
1.1 菌株、材料与试剂
植物乳植杆菌RS20D CGMCC No.13272来源于四川农业大学食品学院食品微生物与发酵团队。
胡萝卜、番茄、黄瓜、土豆 市售。
葡萄糖、蔗糖、酵母浸粉、乙酸钠、柠檬酸氢二铵、柠檬酸、柠檬酸钠、磷酸氢二钠、磷酸二氢钠、磷酸二氢钾、磷酸氢二钾、碳酸钠、七水硫酸镁、一水硫酸锰、七水硫酸亚铁、吐温80、三氯乙酸、无水乙醇(均为分析纯) 成都市科隆化学品有限公司;麦芽糖、牛肉浸粉、蛋白胨、琼脂(均为生化试剂)北京索莱宝科技有限公司;半乳糖、牛肉膏(均为分析纯) 青岛高科技工业园海博生物技术有限公司;果糖、海藻糖、乳糖(均为分析纯) 上海瑞永生物科技有限公司;酵母膏、胰蛋白胨、大豆蛋白胨(均为生化试剂) 北京奥博星生物科技有限公司。
MRS液体培养基:葡萄糖20 g、牛肉浸粉8 g、酵母浸粉4 g、蛋白胨10 g、磷酸氢二钾2 g、乙酸钠5 g、柠檬酸氢二铵2 g、硫酸镁0.2 g、硫酸锰0.04 g、吐温80 1 g、蒸馏水1 000 mL,121 ℃高压蒸汽灭菌20 min。
1.2 仪器与设备
HVE-50高压蒸汽灭菌锅 日本Hirayama公司;DHP-9162电热恒温培养箱、DHG-9245A电热恒温鼓风干燥箱 上海一恒科技有限公司;1300生物安全柜、BR4i冷冻离心机 美国Thermo Fisher Scientific公司;PHSJ-3F pH计 上海雷磁科学仪器有限公司;UV-1800PC 紫外-可见分光光度计 上海美谱达仪器有限公司。
1.3 方法
1.3.1 菌种活化
将-80 ℃保存的植物乳植杆菌RS20D甘油管于4 ℃解冻,菌液划线接种到MRS固体培养基上,37 ℃恒温培养48 h,挑取单菌落接种到MRS液体培养基,37 ℃静置培养24 h,进一步以2%接种量转接至新鲜MRS液体培养基,在同样条件下培养,即获得活化种子液。
1.3.2 生长曲线绘制
将活化的种子液(2 mL)接种至100 mL MRS液体培养基中,37 ℃厌氧培养36 h,每隔2 h取发酵液,分为2份:一份利用传统平板计数法测定活菌数,另一份使用pH计测定pH值,分别绘制菌体的生长曲线和产酸曲线。
1.3.3 发酵培养基组分优化
1.3.3.1 单因素试验
碳源的优化:分别以麦芽糖、果糖、海藻糖、乳糖、半乳糖、蔗糖(添加量均为20 g/L)替代MRS培养基中的碳源(葡萄糖),筛选最优碳源。确定最优碳源后,进一步考察不同添加量(15、30、45、60、75、90 g/L)最优碳源对活菌数的影响。
氮源的优化:分别以牛肉膏、牛肉浸粉、酵母膏、酵母浸粉、胰蛋白胨、蛋白胨及大豆蛋白胨(添加量均为20 g/L)替代MRS培养基中的氮源(蛋白胨、牛肉浸粉与酵母浸粉),筛选最优氮源。确定最优氮源后,进一步考察不同添加量(5、15、30、45、60、75 g/L)最优氮源对活菌数的影响。
金属离子的优化:以0.24 g/L添加量为基准,以Mg2+、 Mn2+、Fe2+、质量比1∶1的Mg2+与Mn2+、质量比1∶1的Mg2+与Fe2+、质量比1∶1的Fe2+与Mn2+及质量比1∶1∶1的Mg2+、Mn2+与Fe2+分别替代MRS培养基中的硫酸镁与硫酸锰,筛选最优金属离子组合。
缓冲盐的优化:分别以柠檬酸-柠檬酸钠、磷酸氢二钠-磷酸二氢钠、磷酸氢二钠-磷酸二氢钾、磷酸氢二钾-乙酸钠-柠檬酸钠及磷酸氢二钠-柠檬酸替代MRS培养基中的缓冲盐体系(磷酸氢二钾0.2%、柠檬酸氢二铵0.2%、乙酸钠),筛选最优缓冲盐组合。确定最佳缓冲盐体系后,进一步考察其浓度(0.02、0.04、0.06、0.08、0.10、0.12 mol/L)对活菌数的影响。
吐温80添加量优化:在MRS液体培养基基础上,进一步考察吐温80添加量(0.5、1.0、1.5、2.0、2.5 g/L)对植物乳植杆菌RS20D活菌数的影响。
外源营养因子优化:在MRS液体培养基基础上,进一步考察外源营养因子对植物乳植杆菌RS20D活菌数的影响。选取胡萝卜、番茄、黄瓜、土豆为原料制备果蔬汁液,具体制备方法:胡萝卜、番茄、黄瓜洗净,去皮后直接榨汁,用4层医用脱脂纱布过滤以去除大颗粒残渣,收集滤液备用,分别制得胡萝卜汁、番茄汁、黄瓜汁;土豆经洗净、去皮、切丁后,加入2倍质量的蒸馏水,煮沸30 min,用4层医用脱脂纱布趁热过滤取上清液,制得土豆汁。分别以胡萝卜汁、番茄汁、黄瓜汁、土豆汁作为MRS液体培养基的外源营养因子,添加量为10、30、50、70、90 g/L,考察不同外源营养因子及添加量对活菌数的影响。
1.3.3.2 响应面试验
在单因素试验的基础上,采用Box-Behnken试验设计方法[14],以麦芽糖添加量(A)、牛肉浸粉添加量(B)、磷酸氢二钾-乙酸钠-柠檬酸钠浓度(C)为因素,以活菌数(Y)为响应指标,应用Design-Expert 12.0软件设计3因素3水平响应面试验,因素水平如表1所示。其他培养基成分同MRS基础培养基并添加最优营养因子,在2%接种量、37 ℃条件下进行厌氧培养,并测定10 h发酵液中的活菌数。
表1 响应面试验因素水平
Table1 Factors and levels for response surface methodology
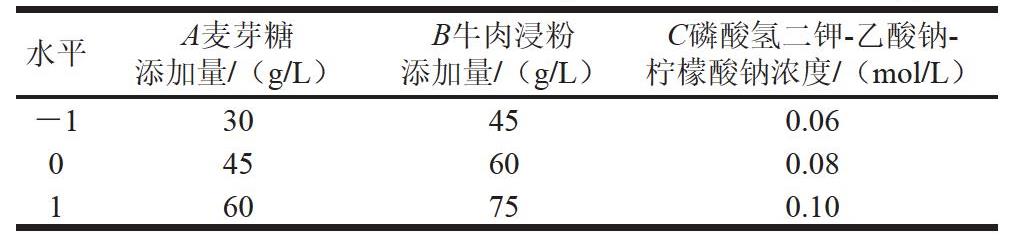
水平添加A量麦/芽(糖g/L)添B加牛量肉/浸(g粉/L)柠C檬磷酸酸钠氢浓二度钾/-乙(m酸ol钠/L-)-130450.06045600.08160750.10
1.3.4 静态培养条件优化
将种子液分别以2%、3%、4%、5%、6%接种量接种至优化后的培养基中[15],其他培养条件不变,考察接种量对活菌数的影响,确定最适接种量。在此基础上,依次考察不同培养温度(31、33、35、37、39 ℃)、不同初始pH值(5.5、6.0、6.5、7.0、7.5)对活菌数的影响,确定最适培养温度和初始pH值。
1.3.5 培养条件优化前后EPS产量对比
分别将种子液接种至MRS基础培养基与优化培养基,前者采用初始培养条件培养,后者采用优化后静态培养条件培养,定时取样并测定EPS产量。EPS产量测定参考赖鲸慧[16]的方法并略作修改:向发酵液中加入终质量浓度4 g/100 mL的三氯乙酸,沸水煮10 min,4 ℃、8 000 r/min离心20 min。取上清液,加入4倍体积预冷无水乙醇,置于4 ℃冰箱过夜,4 ℃、8 000 r/min离心20 min,得到多糖沉淀,使用80%乙醇清洗沉淀,将沉淀复溶于超纯水,转移至截留分子质量8 000~14 000 Da的透析袋,4 ℃超纯水透析3 d,间隔4 h更换一次透析外液,采用苯酚-硫酸法测定EPS产量。
1.4 数据处理
以上实验均进行3次重复,结果采用x±s表示,利用Origin 24b软件进行数据分析,响应面优化试验利用Design-Expert 12.0软件进行设计和分析,使用SPSS Statistics 20进行单因素方差分析。
2 结果与分析
2.1 植物乳植杆菌RS20D的生长曲线和产酸曲线
由图1可知,植物乳植杆菌RS20D接种到新培养基2 h内处于适应期,2 h后进入对数生长期,活菌数呈指数式快速增长,此时产生大量代谢产物乳酸,使培养液pH值迅速下降,活菌数从初始的5.33×10⁷ CFU/mL增至2.85×109 CFU/mL。随着营养物质的消耗,菌体生长速率放缓,在10 h后进入稳定期,生长代谢速率下降,乳酸等有机酸积累速率下降,pH值也逐渐趋于稳定,生长阶段 pH值呈先快速下降后趋于稳定的趋势,从初始的5.62快速降低并最终稳定在3.76。10 h后活菌数量变化不明显,为缩短发酵周期,确定10 h为植物乳植杆菌RS20D发酵终点。
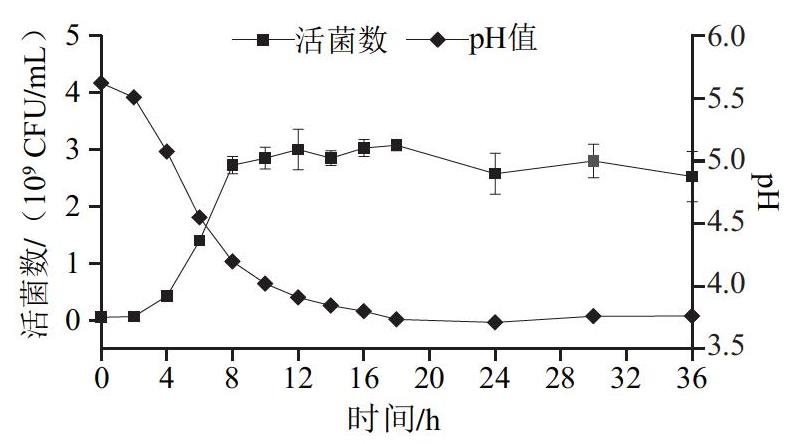
图1 植物乳植杆菌RS20D的生长曲线和产酸曲线
Fig.1 Growth curve and acid-production curve of L. plantarum RS20D
2.2 发酵培养基组分优化结果
2.2.1 发酵培养基组分优化单因素试验结果
2.2.1.1 植物乳植杆菌RS20D最优碳源及其添加量选择
碳源是大多数微生物培养基的主要组成成分,可为细胞生长提供能量[17]。不同微生物对碳源具有选择偏向性,合适的碳源可促进细胞碳骨架合成和细胞代谢吸收,从而加快菌体增殖[18-19];部分碳源(如海藻糖)还能通过促进肽聚糖的生物合成增强细胞壁的结构稳定性[20]。由图2A可知,在以麦芽糖、蔗糖、海藻糖为碳源的培养基中,植物乳植杆菌RS20D生长至稳定期时的活菌数均高于以葡萄糖为碳源的MRS基础培养基,其中菌体对麦芽糖的利用能力最强,活菌数为4.17×10⁹ CFU/mL, 其次为蔗糖、海藻糖。这与多数文献报道的植物乳植杆菌培养基优化的研究结果[18,21-23]一致。类似的,Petrut等[17]研究发现,鼠李糖乳杆菌、唾液链球菌等乳酸菌对不同碳源的利用情况不同,且以麦芽糖为碳源的培养基更有利于菌体生长。因此,植物乳植杆菌RS20D的最优碳源为麦芽糖。由图2B可知,当麦芽糖添加量为45 g/L 时,发酵液中的活菌数最高(4.62×10⁹ CFU/mL)。当麦芽糖添加量高于45 g/L时,发酵液中的活菌数减少,原因可能是麦芽糖浓度过高,提高了培养基渗透压,同时使碳氮比失衡,抑制了菌体生长。综上,植物乳植杆菌RS20D生长所需最优碳源为麦芽糖,且最优添加量为45 g/L。
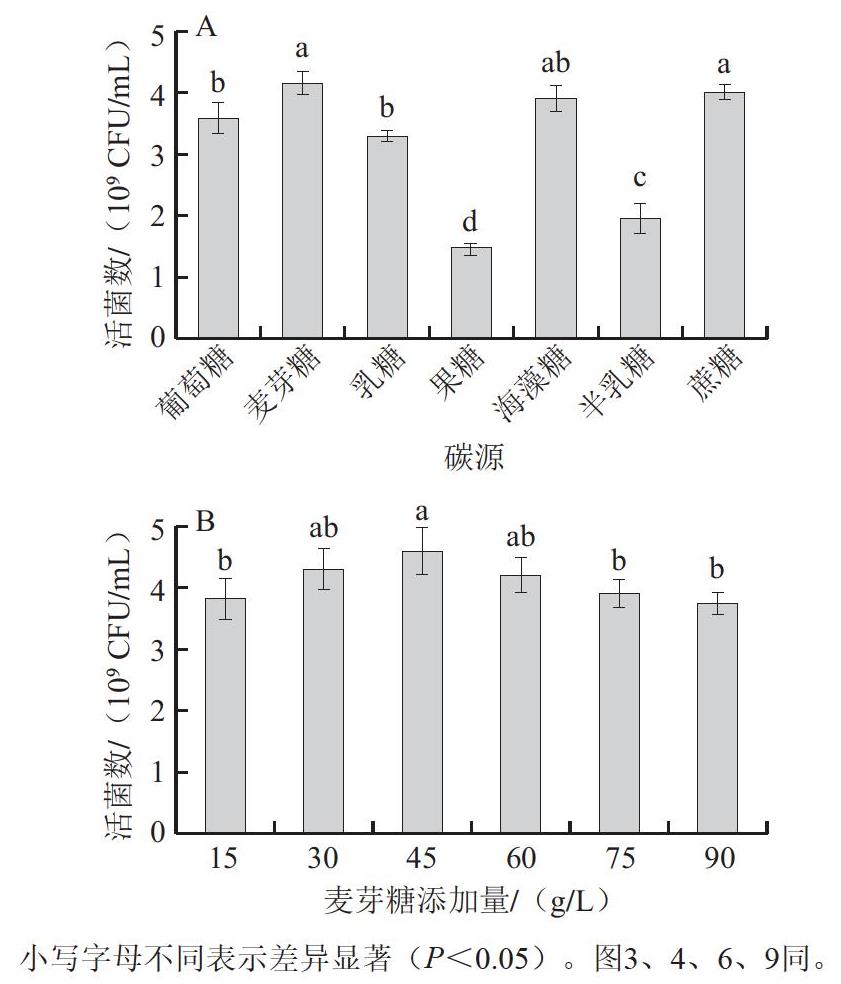
图2 碳源种类(A)和麦芽糖添加量(B)对植物乳植杆菌RS20D活菌数的影响
Fig.2 Effects of carbon-source types (A) and maltose addition (B) on viable cell count of L. plantarum RS20D
2.2.1.2 植物乳植杆菌RS20D最优氮源及其添加量选择
不同菌株对氮源的利用能力不同,其最适氮源也不尽相同[24]。相比硫酸铵、硝酸钾等无机氮源,有机氮源(如牛肉浸粉、蛋白胨等)还含有核苷酸、维生素及营养因子,对微生物生长的促进作用更为显著[23]。Hang Feng等[25]研究加氏乳杆菌、嗜酸乳杆菌与瑞士乳杆菌的氮源偏好发现,瑞士乳杆菌在所有供试酵母提取物中均表现出最佳生长状况;相比之下,嗜酸乳杆菌与加氏乳杆菌则在富含核苷酸的酵母提取物中表现出更高的活菌数。由图3A可知,植物乳植杆菌RS20D对不同氮源的利用情况具有较大差异。与对照组相比,除牛肉膏之外的其他6种氮源对菌体生长均有一定的促进作用。在以牛肉浸粉为氮源的培养基中,活菌数最高(3.80×10⁹ CFU/mL),即菌体对牛肉浸粉的利用率最高。牛肉浸粉含有丰富的有机氮源(如氨基酸和核苷酸等),同时富含B族维生素(烟酸、泛酸等),可为乳酸菌的糖酵解及氨基酸代谢通路提供必要的辅酶,且易于菌体吸收,保证其营养需求[26]。因此,植物乳植杆菌RS20D的最优氮源为牛肉浸粉。由图3B可知,当培养基中牛肉浸粉添加量为60 g/L, 活菌数最高(4.37×10⁹ CFU/mL),显著高于添加量5~45 g/L时的活菌数。当培养基中牛肉浸粉添加量大于60 g/L时,活菌数下降,原因可能是牛肉浸粉中含有一定的矿物质,当超过最适添加量后,高浓度矿物质会增大培养基渗透压,使细胞脱水,影响其生长代谢。综上,植物乳植杆菌RS20D生长所需最优氮源为牛肉浸粉,且最优添加量为60 g/L。
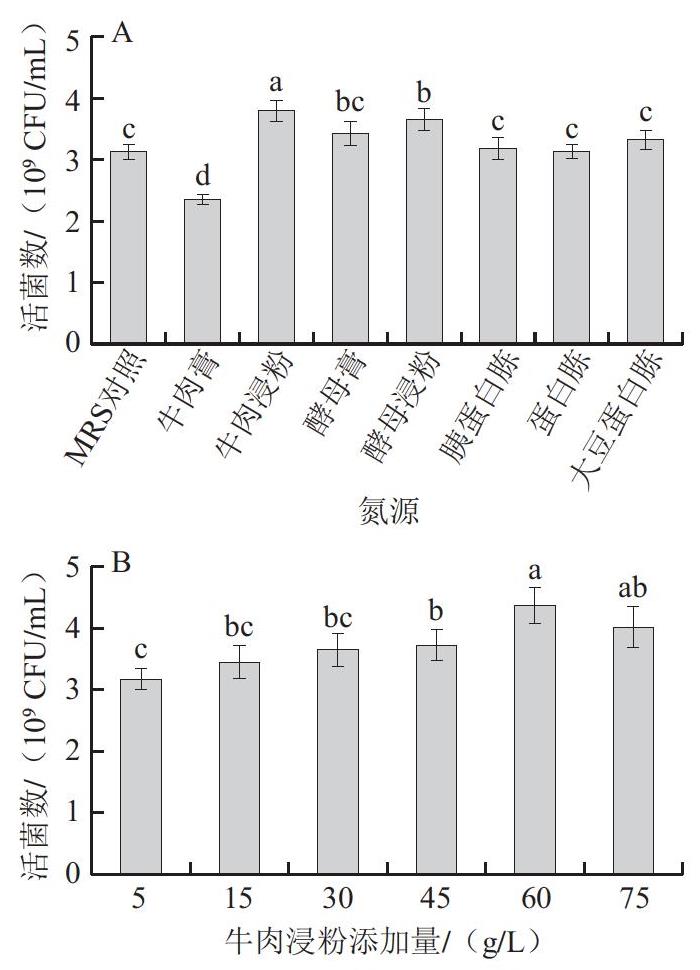
图3 氮源种类(A)和牛肉浸粉添加量(B)对 植物乳植杆菌RS20D活菌数的影响
Fig.3 Effects of nitrogen-source types (A) and beef extract powder addition (B) on viable cell count of L. plantarum RS20D
2.2.1.3 植物乳植杆菌RS20D最优金属离子及其添加量选择
金属离子可作为辅酶因子促进酶促催化反应,既是微生物生长必需营养元素,也能为菌体代谢提供活性功能组分[27]。培养基部分组分虽含有金属离子,但含量常难以满足菌体生长需求,因此需额外补加。由图4可知,当培养基中同时添加Mg2+和Mn2+(1∶1,m/m)时,菌体生长最佳,活菌数(3.97×109 CFU/mL)显著高于其他组。Mn2+作为乳酸脱氨酶的重要金属辅基,可有效促进乳糖代谢途径,从而提升其乳酸产量[28]。Mg2+与Mn2+是多种乳酸菌关键代谢酶的必需辅因子,对其酶活性具有重要调控作用,并能提升菌株应对胁迫环境的耐受能力[29]。Ding Xiang等[30]通过爬坡试验与响应面试验设计对植物乳植杆菌Y44的培养基进行系统优化,硫酸镁与硫酸锰质量浓度分别为0.58 g/L与0.25 g/L时最有利于植物乳植杆菌Y44生长。Fe2+对菌体生长的促进作用最弱,可能是由于Fe2+极易发生氧化,可与培养基中的其他组分发生反应,难以有效维持酶催化活性。综上,植物乳植杆菌RS20D生长所需最优金属离子为质量比1∶1的Mg2+与Mn2+,其添加量为0.24 g/L,即七水硫酸镁添加量为1.22 g/L、一水硫酸锰添加量为0.37 g/L。
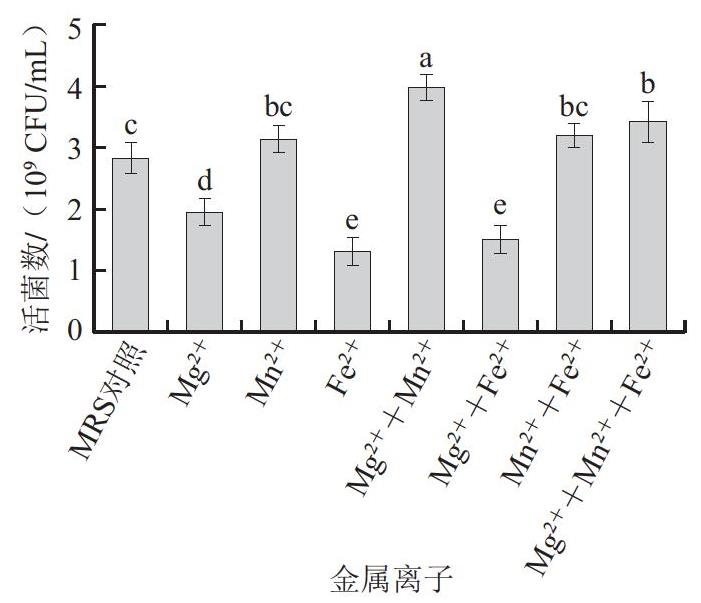
图4 金属离子对植物乳植杆菌RS20D活菌数的影响
Fig.4 Effects of metal ions on viable cell count of L. plantarum RS20D
2.2.1.4 植物乳植杆菌RS20D最优缓冲盐及其添加量选择
乳酸菌在发酵过程中会产生大量乳酸,导致培养基pH值迅速下降,从而影响菌体生长。磷酸盐、柠檬酸等缓冲盐体系能中和部分酸性物质,延缓pH值骤降,将培养基pH值维持在适宜乳酸菌生长的范围。此外,部分缓冲盐所含K+、Na+等离子可作为辅酶因子参与菌株代谢活动[26]。由图5可知,不同缓冲盐体系及同一缓冲盐体系的不同浓度对于植物乳植杆菌RS20D活菌数均有不同程度的影响。菌体在磷酸氢二钾-乙酸钠-柠檬酸钠作为缓冲盐体系的培养基中生长表现最好,当其浓度为0.08 mol/L时,活菌数最高(3.78×109 CFU/mL)。有研究表明,磷酸氢二钾对乳双歧杆菌生长具有促进作用,是较为理想的缓冲盐体系选择[31]。综上,植物乳植杆菌RS20D生长所需最优缓冲盐体系为磷酸氢二钾-乙酸钠-柠檬酸钠,且最优添加量为0.08 mol/L。
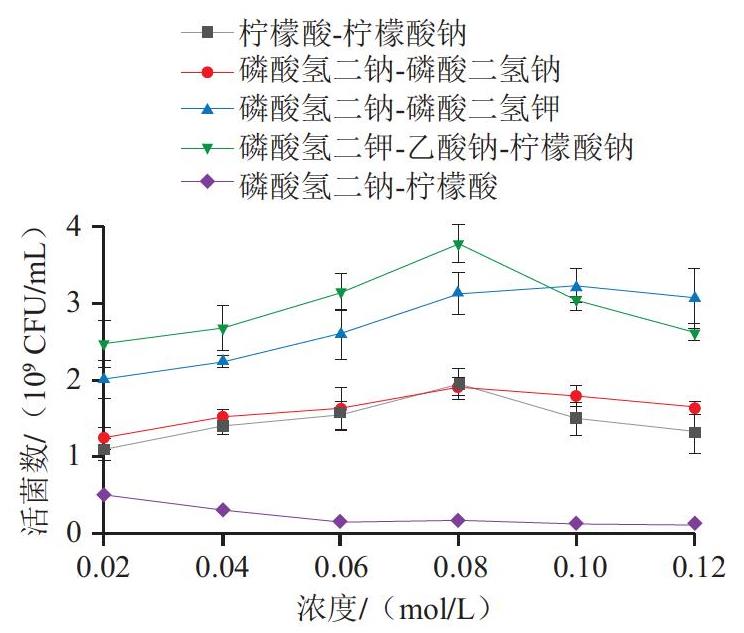
图5 不同缓冲盐体系对植物乳植杆菌RS20D活菌数的影响
Fig.5 Effects of different buffer-salt systems on viable cell count of L. plantarum RS20D
2.2.1.5 植物乳植杆菌RS20D最优吐温80添加量选择
吐温80是一种非离子型表面活性剂,可用作乳化剂、增溶剂及稳定剂等。培养基中添加适量吐温80,既可促进疏水性物质在水相中均匀分散,提升其生物利用率;亦可通过改变细胞膜脂肪酸组分调控膜通透性,强化菌体对环境营养物质的吸收能力[32]。由图6可知,随着吐温80添加量的逐渐增大,植物乳植杆菌RS20D活菌数呈现先升高后降低的趋势。活菌数在吐温80添加量为1.5 g/L时达到最大(3.20×109 CFU/mL);而过高浓度的吐温80可能会造成细胞内渗透压失衡并破坏细胞膜稳定性,影响菌株生长。因此,植物乳植杆菌RS20D生长所需最优吐温80添加量为1.5 g/L。
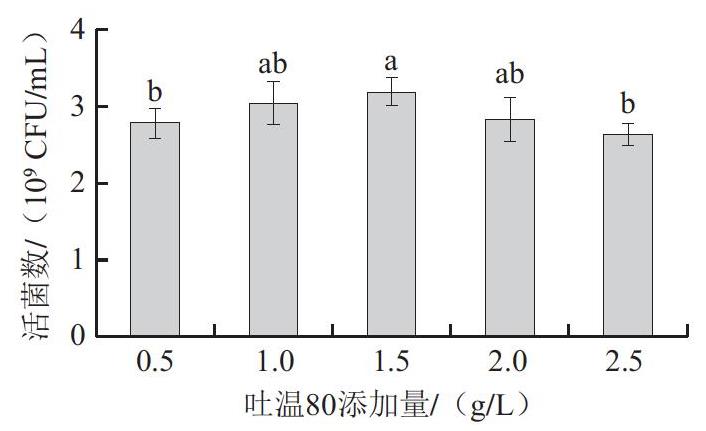
图6 吐温80添加量对植物乳植杆菌RS20D活菌数的影响
Fig.6 Effects of Tween 80 addition on viable cell count ofL. plantarum RS20D
2.2.1.6 植物乳植杆菌RS20D最优营养因子及其添加量选择
植物乳植杆菌营养需求复杂,其生长代谢过程需要多种外源性生长因子,包括氨基酸、维生素和核苷酸等关键营养物质,天然果蔬汁富含维生素、矿物质和膳食纤维等营养物质,在菌体生理功能调控中发挥重要作用。其中,维生素可通过促进脂肪酸生物合成及调控糖代谢关键酶表达促进菌体生长[26]。因此,果蔬汁不仅能提供乳酸菌代谢所必需的外源性生长因子,还有助于维持其代谢稳态,从而为菌体创造适宜的增殖环境[33]。由图7可知,不同营养因子及其浓度梯度对植物乳植杆菌RS20D的活菌数均产生显著影响,其变化趋势均表现为随添加量增加呈先升后降的趋势。其中,当番茄汁添加量为30 g/L时,活菌数达到峰值(3.48×109 CFU/mL),说明该营养因子添加量最适宜植物乳植杆菌RS20D生长。综上,植物乳植杆菌RS20D生长所需最优营养因子为番茄汁,且最优添加量为30 g/L。
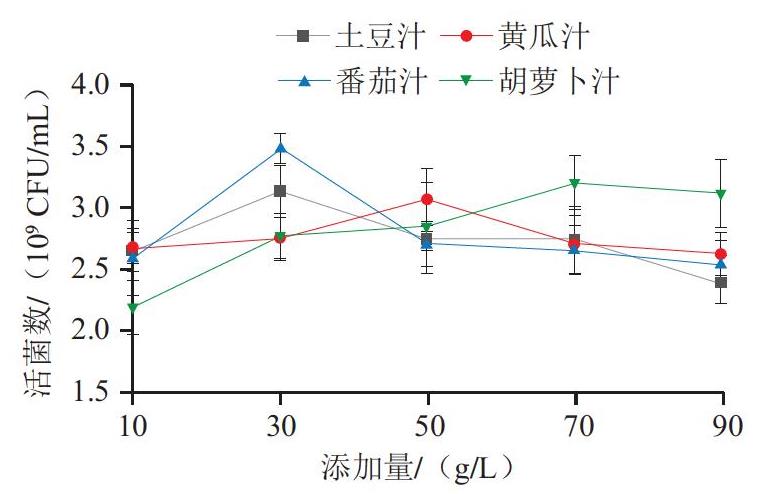
图7 不同营养因子对植物乳植杆菌RS20D活菌数的影响
Fig.7 Effects of different nutritional factors on viable cell count of L. plantarum RS20D
2.2.2 发酵培养基组分优化响应面试验结果
2.2.2.1 Box-Behnken试验设计结果与方差分析
使用Design-Expert 12.0软件对表2数据进行多元回归拟合,得到多项回归方程为:Y=-23.985+0.250 167A+0.458 000B+260.375 000C-0.000 222AB-1.583 330AC+0.500 000BC-0.001 344A2-0.003 900B2-1 256.250 000C2。
表2 Box-Behnken试验设计及结果
Table2 Box-Behnken design and corresponding results
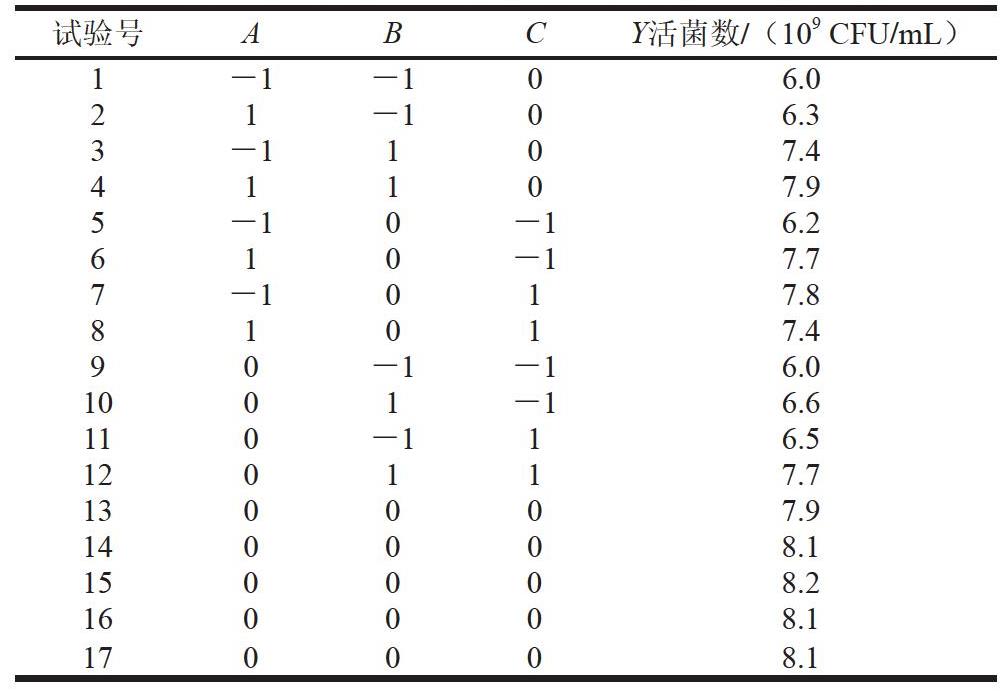
试验号ABCY活菌数/(109 CFU/mL)1-1-106.021-106.33-1107.441107.95-10-16.2610-17.77-1017.881017.490-1-16.01001-16.6110-116.5120117.7130007.9140008.1150008.2160008.1170008.1
由表3可知,回归模型极显著(P<0.000 1),失拟项不显著(P>0.05),表明该模型可以较好地拟合实际情况,具有较高的可靠性。由回归方程系数显著性检验可知,模型中一次项A、B、C,二次项A2、B2、C2对结果影响显著(P<0.05、P<0.01);交互项AC对结果影响极显著(P<0.01),交互项AB、BC对结果影响不显著(P>0.05)。由F值可知,各因素对活菌数的影响排序为B>C>A,即3个因素对活菌数的影响大小为牛肉浸粉添加量>磷酸氢二钾-乙酸钠-柠檬酸钠浓度>麦芽糖添加量。该模型决定系数R2=0.976 7,校正决定系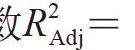 0.946 8,说明实测活菌数与模型预测值拟合程度良好,该模型可有效分析并预测植物乳植杆菌RS20D在培养基中的生长状况。
表3 回归方程方差分析及显著性检验
Table3 Analysis of variance and significance tests for fitted regression equations
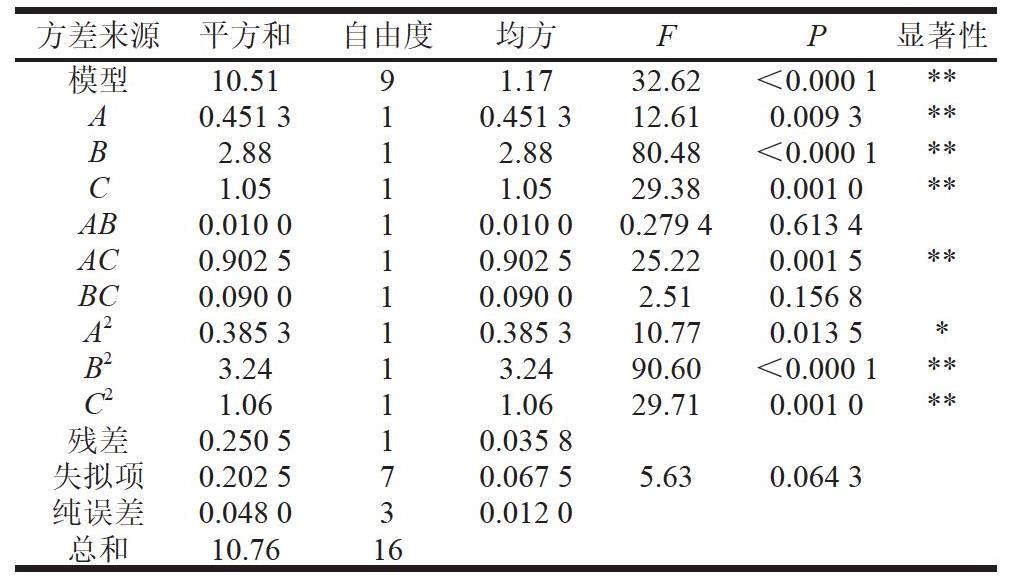
方差来源平方和自由度均方FP显著性模型10.5191.1732.62<0.000 1**A0.451 310.451 312.610.009 3**B2.8812.8880.48<0.000 1**C1.0511.0529.380.001 0**AB0.010 010.010 00.279 40.613 4AC0.902 510.902 525.220.001 5**BC0.090 010.090 02.510.156 8A20.385 310.385 310.770.013 5*B23.2413.2490.60<0.000 1**C21.0611.0629.710.001 0**残差0.250 510.035 8失拟项0.202 570.067 55.630.064 3纯误差0.048 030.012 0总和10.7616
注:*.影响显著(P<0.05);**.影响极显著(P<0.01)。
2.2.2.2 各因素间交互作用
等高线形状可直观反映因素间交互作用的强弱:其轮廓越接近椭圆形,交互效应越显著。由图8可知,所有交互作用的三维响应面均呈开口向下的凸形,表明在所考察的范围内存在最大值。响应面的陡峭程度直观反映响应值对因素对的敏感性,麦芽糖添加量与磷酸氢二钾-乙酸钠-柠檬酸钠浓度交互作用响应面具有明显的曲率,响应面陡峭,说明这两组交互对活菌数影响显著。与之相反,麦芽糖添加量与牛肉浸粉添加量、牛肉浸粉添加量与磷酸氢二钾-乙酸钠-柠檬酸钠浓度交互作用响应面较为平缓,表明其对活菌数的影响较弱。对等高线图的分析可知,麦芽糖添加量与缓冲盐交互作用的等高线呈明显的椭圆形,提示因素间存在较强的交互效应;而麦芽糖添加量与牛肉浸粉添加量、牛肉浸粉添加量与磷酸氢二钾-乙酸钠-柠檬酸钠浓度交互作用的等高线更接近圆形,证实其交互作用较弱。这与方差分析结果一致。
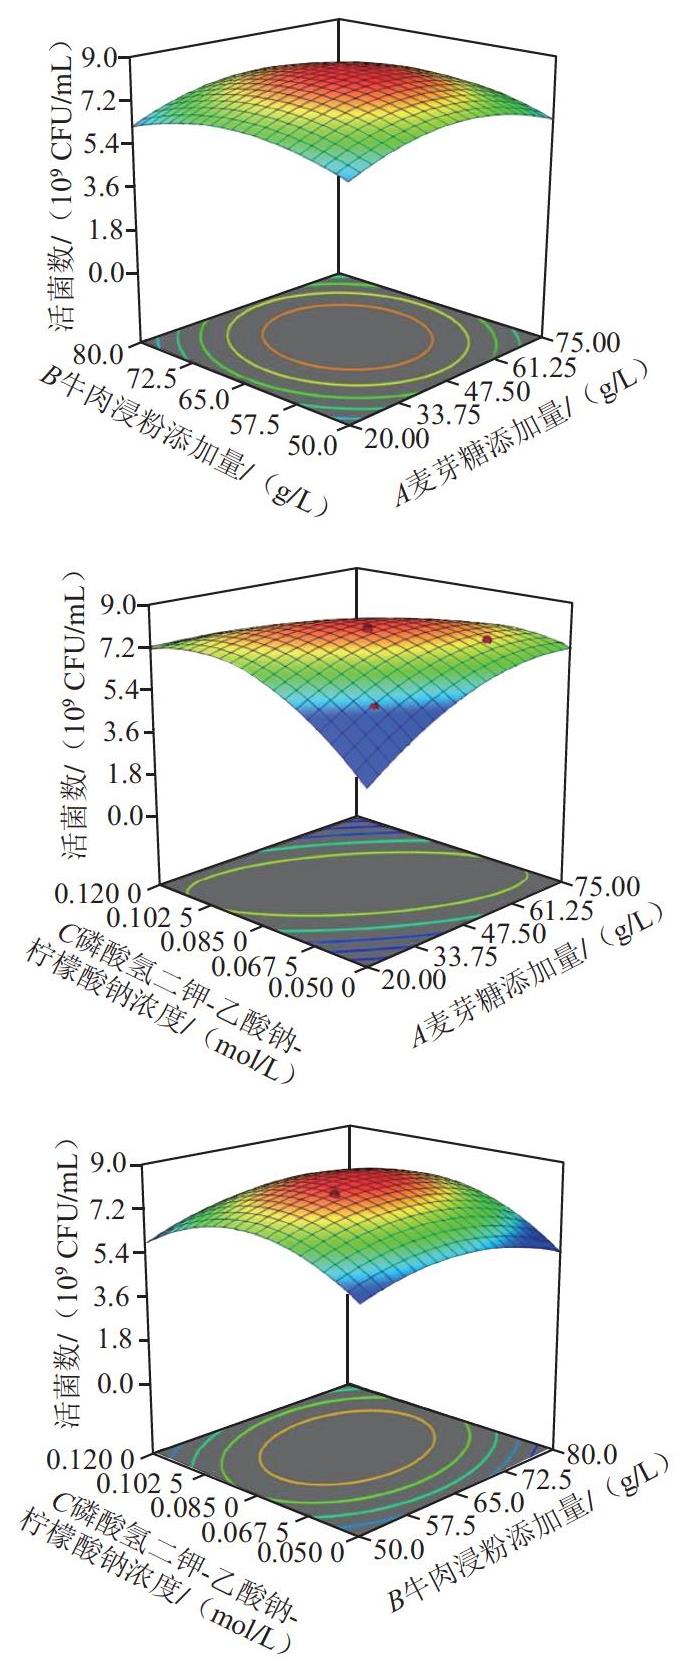
图8 各因素交互作用对活菌数影响的响应面及等高线图
Fig.8 Response surface and contour plots for interactive effects of various factors on viable cell count
2.2.2.3 回归模型验证
当麦芽糖添加量为47.313 g/L、牛肉浸粉添加量为65.629 g/L、磷酸氢二钾-乙酸钠-柠檬酸钠浓度为0.087 mol/L时,植物乳植杆菌RS20D活菌数最大理论预测值为8.273×109 CFU/mL。为方便实际操作,修改培养基组成为麦芽糖添加量47.3 g/L、牛肉浸粉添加量65.6 g/L、磷酸氢二钾-乙酸钠-柠檬酸钠浓度0.1 mol/L,在此条件下进行3次验证实验,植物乳植杆菌RS20D活菌数为8.17×109 CFU/mL,与预测值接近,说明模型可靠,可以用于预测。
2.3 植物乳植杆菌RS20D静态培养条件优化
由图9A可知,随着接种量的增加,活菌数呈现先上升后下降的趋势。当接种量为4%时,植物乳植杆菌RS20D的活菌数最高,为8.52×10⁹ CFU/mL。当接种量超过4%后,活菌数反而降低,这可能是因为过高的初始接种量导致培养基中的营养物质被快速消耗,无法维持菌体的持续生长繁殖。张娜等[15]研究发现植物乳植杆菌BF_15的培养基发酵最适接种量为5%,在此条件下乳酸菌活菌数达8.92×109 CFU/mL,是优化前的3.88倍;Wang Junyong等[34]利用单因素试验和响应面试验得出植物乳植杆菌R301在接种量为3%条件下可获得最大EPS产量,说明不同菌种发酵的最适接种量不同。综上,植物乳植杆菌RS20D的最优接种量为4%。
由图9B可知,植物乳植杆菌RS20D在培养温度为37 ℃时活菌数达到最高,为8.55×10⁹ CFU/mL。乳酸菌的最适生长温度通常为30~40 ℃,但菌株间存在显著差异。偏离此最适温度范围,无论是过低还是过高,均会对乳酸菌的生长与代谢产生不利影响。当温度过低时,菌体延滞期增长,代谢反应速率减慢,菌体生长缓慢。培养温度过高会破坏菌体膜结构,影响关键酶活性[35-36]。丁翔[37]研究发现植物乳植杆菌Y44在37 ℃下生长良好,温度过高或过低均会导致活菌数下降。Ko等[38]的研究显示,清酒乳杆菌KCKM 0001等部分菌株能在5~37 ℃快速生长,不同菌株的最适生长温度范围存在差异。综上,植物乳植杆菌RS20D的最优培养温度为37 ℃。
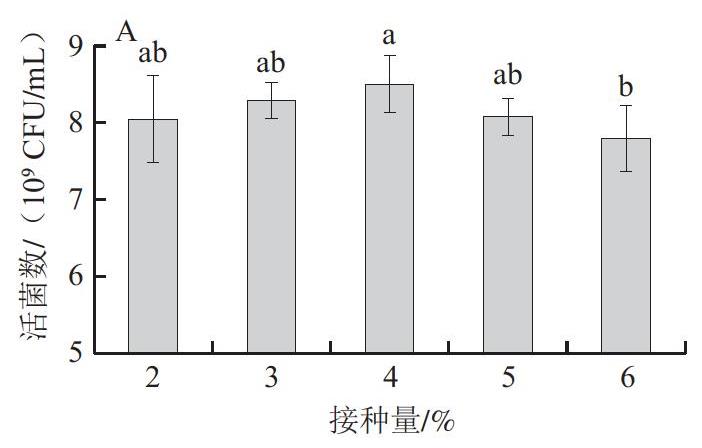
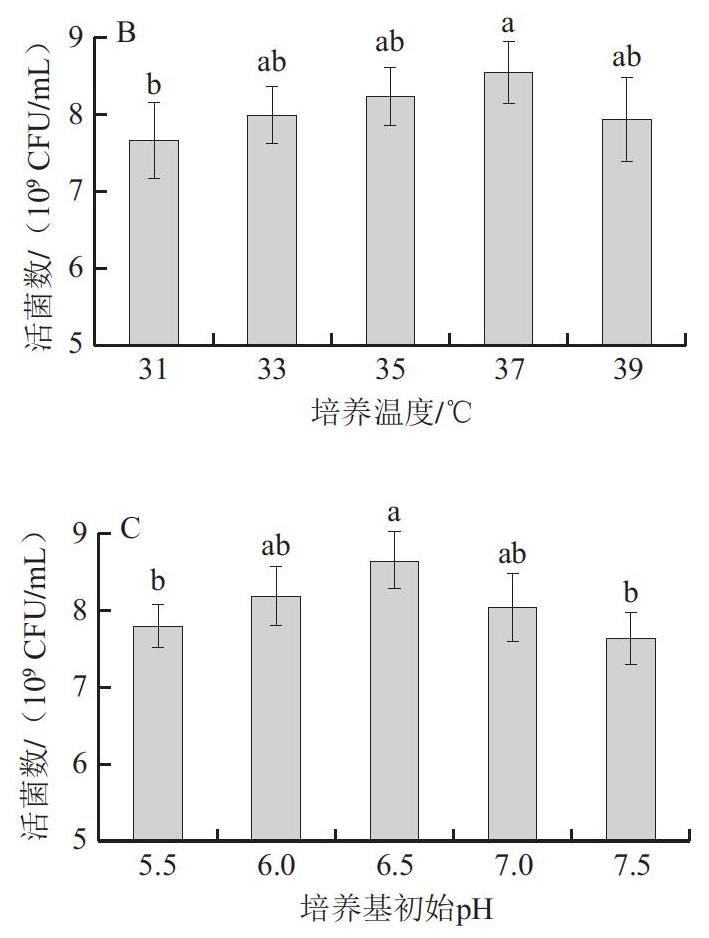
图9 接种量(A)、培养温度(B)和培养基初始pH值(C)对 植物乳植杆菌 RS20D活菌数的影响
Fig.9 Effects of inoculum (A), culture temperature (B) and initial medium pH (C) on the viable cell count of L. plantarum RS20D
由图9C可知,当培养基初始pH值在5.5~6.5范围内逐渐增加时,植物乳植杆菌RS20D活菌数也逐渐提高,当pH值为6.5时,活菌数最高,为8.67×10⁹ CFU/mL。乳酸菌生长代谢生成乳酸致使体系pH值下降;若培养基初始pH值过低,过酸环境会破坏植物乳植杆菌细胞膜完整结构、改变蛋白空间构象并干扰脂质代谢进程[39-40]。 当初始pH值高于6.5时,对菌体生长也有抑制作用。上述结果表明,植物乳植杆菌RS20D培养基的最优初始 pH值为6.5。综上所述,在最优培养基及最优静态培养条件的优化策略下,植物乳植杆菌RS20D活菌数最终可达8.67×10⁹ CFU/mL,是优化前(2.85×109 CFU/mL)的3.04倍。
2.4 植物乳植杆菌RS20D培养条件优化前后EPS产量对比
由图10可知,在优化条件下,菌株多糖产量可达713.58 mg/L,相比优化前(305.32 mg/L)提升133.7%(P< 0.05)。研究发现,在产EPS的最优培养条件下,植物乳植杆菌MF460的EPS产量可达515.48 mg/L[41]、植物乳植杆菌YT013的EPS产量可达630 mg/L[42];在以蔗糖为碳源的培养基中,植物乳植杆菌ZE2的EPS产量为211.53 mg/L[43], 而本研究植物乳植杆菌RS20D在优化策略下的EPS产量在目前已报道的植物乳植杆菌多糖研究中处于较高水平,展现出良好的应用潜力。
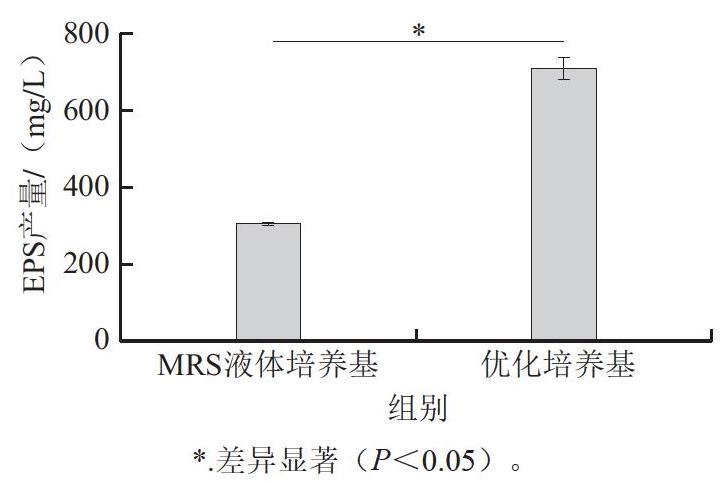
图10 植物乳植杆菌RS20D在MRS液体培养基优化前后的EPS产量对比
Fig.10 Comparison of EPS yields of L. plantarum RS20D before and after MRS liquid medium optimization
3 结 论
本研究以产EPS的植物乳植杆菌RS20D为研究对象,利用单因素试验和响应面优化试验,获得了最优培养基组分与培养条件,实现了菌体的高密度培养。优化后的培养基组成为:麦芽糖47.3 g/L、牛肉浸粉65.6 g/L、七水硫酸镁1.22 g/L、一水硫酸锰0.37 g/L、磷酸氢二钾-乙酸钠-柠檬酸钠0.1 mol/L、吐温80 1.5 g/L及番茄汁30 g/L。最优静态培养条件确定为:接种量4%(V/V)、培养温度37 ℃、培养基初始pH值6.5。在最优培养基配方与培养条件下,植物乳植杆菌RS20D活菌数可达8.67×10⁹ CFU/mL,是优化前(2.85×109 CFU/mL)的3.04倍,此时菌株的EPS产量达713.58 mg/L,较优化前(305.32 mg/L)提升约133.7%,表明培养基优化联合培养条件优化策略可显著增强该菌的EPS产量(P<0.05)。因此,本研究确定了植物乳植杆菌RS20D的最佳培养策略,在获得高密度植物乳植杆菌RS20D菌体的同时,实现其EPS产量的同步提升。研究结果不仅为进一步通过发酵罐放大培养及补料策略提高菌体密度提供实验依据,还可推动乳酸菌在高活性益生菌制剂制备及其高附加值EPS产品的工业化开发,具有重要的实践意义。
[1] Liu Wei, Wei Yajun, Xiang Rong, et al. Lactic acid bacteria exopolysaccharides unveiling multifaceted insights from structure to application in foods and health promotion[J]. Foods, 2025, 14(5): 823.DOI:10.3390/foods14050823.
[2] Li Yuwei, Li Chen, Zhang Na, et al. Mitigation of oxidative stressinduced aging by extracellular polysaccharides from Lactiplantibacillus plantarum R6-1 from Sayram ketteki[J]. International Journal of Biological Macromolecules, 2025, 308: 142392. DOI:10.1016/j.ijbiomac.2025.142392.
[3] Adesulu-Dahunsi A T, Sanni A I, Jeyaram K, et al. Extracellular polysaccharide from Weissella confusa OF126: production,optimization, and characterization[J]. International Journal of Biological Macromolecules, 2018, 111: 514-525. DOI:10.1016/j.ijbiomac.2018.01.060.
[4] Wu Jiayi, Zhang Yuheng, Ye Ling, et al. The anti-cancer effects and mechanisms of lactic acid bacteria exopolysaccharides in vitro: a review[J]. Carbohydrate Polymers, 2021, 253: 117308. DOI:10.1016/j.carbpol.2020.117308.
[5] Ouarabi L, Ouarabi L, Hamma-Faradji S, et al. Exopolysaccharides from lactic acid bacteria: structure, biosynthesis, and health benefits[J]. Microbes and Infection, 2025, 27(8): 105581. DOI:10.1016/j.micinf.2025.105581.
[6] Moradi M, Guimarães J T, Sahin S. Current applications of exopolysaccharides from lactic acid bacteria in the development of food active edible packaging[J]. Current Opinion in Food Science, 2021, 40: 33-39. DOI:10.1016/j.cofs.2020.06.001.
[7] Lynch K M, Coffey A, Arendt E K. Exopolysaccharide producing lactic acid bacteria: their techno-functional role and potential application in gluten-free bread products[J]. Food Research International, 2018, 110: 52-61. DOI:10.1016/j.foodres.2017.03.012.
[8] Zhou Yang, Cui Yanhua, Qu Xiaojun. Exopolysaccharides of lactic acid bacteria: structure, bioactivity and associations: a review[J]. Carbohydrate Polymers, 2019, 207: 317-332. DOI:10.1016/j.carbpol.2018.11.093.
[9] Bayburt A A, Yuksekdag Z, Cinar-Acar B. Impact of physical parameters on EPS production and gene expression in Ligilactobacillus salivarius KC27L and Limosilactobacillus reuteri KC21L strains[J]. Folia Microbiologica, 2025. DOI:10.1007/s12223-025-01330-z.
[10] Peng Qingting, Hu Haimin, Dai A, et al. Mechanisms of exopolysaccharide synthesis by Streptococcus thermophilus IMAU20246 determined by the carbon source[J]. Food Chemistry, 2025, 481: 144069. DOI:10.1016/j.foodchem.2025.144069.
[11] 王新, 张居典, 邵景海, 等. 胞外多糖对酸奶稳定性的研究[J]. 中国乳业, 2021(9): 125-129. DOI:10.16172/j.cnki.114768.2021.09.024.
[12] Zheng Jinshui, Wittouck S, Salvetti E, et al. A taxonomic note on the genus Lactobacillus: description of 23 novel genera, emended description of the genus Lactobacillus Beijerinck 1901, and union of Lactobacillaceae and Leuconostocaceae[J]. International Journal of Systematic and Evolutionary Microbiology, 2020, 70(4): 2782-2858. DOI:10.1099/ijsem.0.004107.
[13] Zhu Yuanting, Wang Xingjie, Pan Wanshu, et al. Exopolysaccharides produced by yogurt-texture improving Lactobacillus plantarum RS20D and the immunoregulatory activity[J]. International Journal of Biological Macromolecules, 2019, 121: 342-349. DOI:10.1016/j.ijbiomac.2018.09.201.
[14] Wang Tao, Lu Yingying, Yan Hong, et al. Fermentation optimization and kinetic model for high cell density culture of a probiotic microorganism: Lactobacillus rhamnosus LS-8[J]. Bioprocess and Biosystems Engineering, 2020, 43(3): 515-528. DOI:10.1007/s00449-019-02246-y.
[15] 张娜, 周悦, 朱维红, 等. 母乳婴儿源植物乳杆菌高密度培养与冻干保护剂优化[J]. 现代食品科技, 2025, 41(11): 77-88. DOI:10.13982/j.mfst.1673-9078.2025.11.1210.
[16] 赖鲸慧. 不同乳酸菌胞外多糖特性比较及在凝固型酸奶中的应用研究[D]. 雅安: 四川农业大学, 2022. DOI:10.27345/d.cnki.gsnyu.2022.001475.
[17] Petrut S, Rusu E, Tudorache I S, et al. Influence of various carbon sources on growth and biomass accumulation of some lactic acid bacteria strains[J]. Revista de Chimie, 2019, 70(7): 2434-2438. DOI:10.37358/rc.19.7.7356.
[18] 金玉洁, 何国庆. 植物乳杆菌ZU018增殖培养基的优化[J]. 食品工业科技, 2020, 41(14): 94-100. DOI:10.13386/j.issn1002-0306.2020.14.016.
[19] Yin Hongmei, Zhong Yadong, Xia Shengkun, et al. Effects of fermentation with Lactobacillus plantarum NCU137 on nutritional,sensory and stability properties of Coix (Coix lachryma-jobi L.) seed[J]. Food Chemistry, 2020, 314: 126037. DOI:10.1016/j.foodchem.2019.126037.
[20] 任文荣, 王俊国. 应激处理及外源添加海藻糖对乳酸菌喷雾干燥抗性影响的研究进展[J]. 食品科学, 2025, 46(24): 335-342.DOI:10.7506/spkx1002-6630-20250625-178.
[21] 李娜, 杨江华, 韦宇拓. 植物乳杆菌ZJ316高密度发酵条件优化[J].中国酿造, 2021, 40(5): 43-48. DOI:10.11882/j.issn.0254-5071.2021.05.008.
[22] 衡利冰, 夏永军, 艾连中, 等. 植物乳杆菌AR307发酵培养基优化研究[J].工业微生物, 2024, 54(1): 81-86. DOI:10.3969/j.issn.1001-6678.2024.01.024.
[23] 周宁萍, 蒋雪, 裴琪, 等. 红酸汤源植物乳杆菌NCU001929的高密度培养条件研究[J]. 食品与发酵工业, 2024, 50(21): 36-44.DOI:10.13995/j.cnki.11-1802/ts.037927.
[24] Hu Mengyu, Wang Dingyuan, Tang Xin, et al. Improving the utilization efficiency of nitrogen source through co-culture of Lactobacillus strains with different nitrogen source metabolisms[J].LWT-Food Science and Technology, 2024, 191: 115701. DOI:10.1016/j.lwt.2023.115701.
[25] Hang Feng, Shi Yangyang, Yan Shaoquan, et al. Strain-specific nitrogen source preferences and pH-controlled fermentation of Lactobacillus gasseri, L. acidophilus, and L. helveticus for industrial probiotic production[J]. Journal of Microbiological Methods, 2025,239: 107307. DOI:10.1016/j.mimet.2025.107307.
[26] 陈园园. 德氏乳杆菌保加利亚亚种QH38-1高密度发酵工艺的优化[D]. 呼和浩特: 内蒙古农业大学, 2023. DOI:10.27229/d.cnki.gnmnu.2023.001915.
[27] Yan Lilong, Ma Yifei, Yang Zhixuan, et al. Synergistic effect of copper ions on Pseudomonas sp. DX-21 for enhanced tetracycline removal:a mechanistic study[J]. Journal of Hazardous Materials, 2025, 498:139993. DOI:10.1016/j.jhazmat.2025.139993.
[28] Dong Zixing, Gu Lei, Zhang Juan, et al. Optimisation for high cell density cultivation of Lactobacillus salivarius BBE 09-18 with response surface methodology[J]. International Dairy Journal, 2014,34(2): 230-236. DOI:10.1016/j.idairyj.2013.07.015.
[29] 孔洁, 张涵, 李亭玉, 等. 矿物质复合微量元素对乳酸菌生长及生物学特征的影响[J]. 延边大学农学学报, 2018, 40(2): 76-81.DOI:10.13478/j.cnki.jasyu.2018.02.013.
[30] Ding Xiang, Qian Fang, Mu Guangqing, et al. Optimization of medium composition of Lactobacillus plantarum Y44 using Plackett-Burman and Box-Behnken designs[J]. Preparative Biochemistry &Biotechnology, 2023, 53(9): 1058-1066. DOI:10.1080/10826068.2023.2166957.
[31] 徐显睿, 李翠凤, 张宗博, 等. 响应面法优化乳双歧杆菌Z-1高密度发酵培养基[J]. 食品工程, 2020(3): 39-47. DOI:10.3969/j.issn.1673-6044.2020.03.011.
[32] 钱志浩, 崔树茂, 唐鑫, 等. 基于细胞膜脂肪酸调控提高乳杆菌冻干存活率[J]. 食品与发酵工业, 2021, 47(16): 1-8. DOI:10.13995/j.cnki.11-1802/ts.026748.
[33] Lillo-Pérez S, Guerra-Valle M, Orellana-Palma P, et al. Probiotics in fruit and vegetable matrices: opportunities for nondairy consumers[J].LWT-Food Science and Technology, 2021, 151: 112106. DOI:10.1016/j.lwt.2021.112106.
[34] Wang Junyong, Zhang Jing, Guo Henan, et al. Optimization of exopolysaccharide produced by Lactobacillus plantarum R301 and its antioxidant and anti-inflammatory activities[J]. Foods, 2023, 12(13):2481. DOI:10.3390/foods12132481.
[35] 陈百莹, 郑苗, 邓泽元, 等. 植物乳杆菌ZJ316培养基优化和高密度培养的研究[J]. 中国食品学报, 2020, 20(7): 65-74. DOI:10.16429/j.1009-7848.2020.07.009.
[36] Adu K T, Wilson R, Nichols D S, et al. Proteomic analysis of Lactobacillus casei GCRL163 cell-free extracts reveals a SecB homolog and other biomarkers of prolonged heat stress[J]. PLoS ONE, 2018, 13(10): e0206317. DOI:10.1371/journal.pone.0206317.
[37] 丁翔. 植物乳杆菌Y44高密度培养及冻干菌粉研制[D]. 大连: 大连工业大学, 2023. DOI:10.26992/d.cnki.gdlqc.2023.000764.
[38] Ko H I, Kim S R, Lim J Y, et al. Evaluation of growth behavior of lactic acid bacteria isolated from kimchi via kinetic modeling[J]. LWT-Food Science and Technology, 2024, 204: 116463. DOI:10.1016/j.lwt.2024.116463.
[39] Zhu Jiang, Sun Yuwei, Zhang Shiyao, et al. Unraveling the genetic adaptations in cell surface composition and transporters of Lactiplantibacillus plantarum for enhanced acid tolerance[J]. Journal of Agricultural and Food Chemistry, 2024, 72(10): 5368-5378. DOI:10.1021/acs.jafc.3c09292.
[40] Yang Huan, He Muwen, Wu Chongde. Cross protection of lactic acid bacteria during environmental stresses: stress responses and underlying mechanisms[J]. LWT-Food Science and Technology, 2021, 144:111203. DOI:10.1016/j.lwt.2021.111203.
[41] Mıdık F, Tokatlı M, Bağder Elmacı S, et al. Influence of different culture conditions on exopolysaccharide production by indigenous lactic acid bacteria isolated from pickles[J]. Archives of Microbiology,2020, 202(4): 875-885. DOI:10.1007/s00203-019-01799-6.
[42] Zhang Rentao, Zhou Zhongkun, Ma Yunhao, et al. Production of the exopolysaccharide from Lactiplantibacillus plantarum YT013 under different growth conditions: optimum parameters and mathematical analysis[J]. International Journal of Food Properties, 2023, 26(1):1941-1952. DOI:10.1080/10942912.2023.2239518.
[43] Angelov A, Georgieva A, Petkova M, et al. On the molecular selection of exopolysaccharide-producing lactic acid bacteria from indigenous fermented plant-based foods and further fine chemical characterization[J]. Foods, 2023, 12(18): 3346. DOI:10.3390/foods12183346.