2,3-丁二醇是一种重要的二元醇类化合物,其在常温下为无色液体、低温下为晶体,能够与水、乙醇及乙醚等有机溶剂互溶。2,3-丁二醇含有两个手性碳,存在左旋型(2R,2R)、右旋型(2S,2S)和内消旋型3种立体构型[1]。在2,3-丁二醇合成过程中会伴随副产物乙偶姻的积累,2,3-丁二醇脱氢酶可催化乙偶姻转化成2,3-丁二醇,是该生物合成途径中的关键功能酶。
2,3-丁二醇醇理化性质优良、应用范围广泛,目前已应用在医药、食品、化妆品、精细化工及航天等诸多领域[2-4]。在日化与材料领域,其可作为药物载体,也可用于生产润湿剂、软化剂等化工助剂;在化工合成领域,2,3-丁二醇通过脱水反应生成甲基乙基酮,甲基乙基酮进一步脱水可转化为1,3-丁二烯,1,3-丁二烯是合成橡胶的重要基础材料[5];在食品工业中,2,3-丁二醇可作为食品添加剂,用于调控食品质地和湿度,有效保持食品原有新鲜度和口感[6]。在精细化工领域,2,3-丁二醇是多种化学品合成的重要中间体,广泛应用制药、农药、香料和其他精细化工产品的生产,尤其在特种药物合成生产中具有不可替代的作用[7]。在医药领域,2,3-丁二醇具有杀菌作用,0.1%即可杀灭多数微生物[8]。
当前,2,3-丁二醇的工业化生产方法主要分为化学合成法和生物发酵法。化学合成法以石油裂解产物为原料,通过多步化学反应制备2,3-丁二醇。该方法存在生产成本高、工艺流程复杂、环境污染严重等问题,极大限制了其工业化规模化应用[9]。在石油价格波动上涨、生态环境保护力度加大及低碳可持续发展的行业背景下,开发低成本、环境友好的新型生产工艺成为2,3-丁二醇产业的研究重点。生物发酵法是目前工业化生产2,3-丁二醇的主流方法,该工艺以可再生生物质资源为底物,通过微生物发酵合成目标产物。与传统化学合成法相比,生物发酵法反应条件温和、操作简便、生产成本更低,且绿色低碳、环境相容性好,契合绿色化工的发展理念,兼具经济效益与生态效益[10-11],符合当代工业绿色环保与可持续发展的核心要求[12]。目前,可用于发酵合成2,3-丁二醇的微生物种类丰富,主要包括芽孢杆菌属(Bacillus)、克雷伯菌属(Klebsiella)、沙雷氏菌属(Serratia)、肠杆菌属(Enterobater)和类芽孢菌属(Paenibacillus)等[13]。其中,具备工业化生产潜力的核心菌株主要包括肺炎克雷伯菌(K. Pneumoniae)[14]、解淀粉芽孢杆菌(B. amyloliquefaciens)[15]、多黏芽孢杆菌(B. polymyxa)[16-17]、产酸克雷伯菌(K. oxytoca)[18]、粘质沙雷氏菌(S. marcescens)[19]和枯草芽孢杆菌(B. subtilis)[20]等。芽孢杆菌属和克雷伯氏菌属是最具工业应用价值的两类细菌,且芽孢杆菌为公认安全菌株,完全满足大规模工业化发酵的安全生产规范。
在微生物合成2,3-丁二醇的代谢途径中,单糖在细胞体内先经糖酵解转化成丙酮酸,丙酮酸在乙酰乳酸合成酶作用下合成乙酰乳酸,然后乙酰乳酸通过2种途径合成乙偶姻:其一,乙酰乳酸经乙酰乳酸脱羧酶直接催化生成乙偶姻;其二,乙酰乳酸先发生自发反应生成双乙酰,然后在双乙酰还原酶催化下生成乙偶姻。最终,乙偶姻在2,3-丁二醇脱氢酶催化作用下转化为2,3-丁二醇[21]。
解淀粉芽孢杆菌为革兰氏阳性兼性厌氧芽孢杆菌,与枯草芽孢杆菌亲缘关系较近[22]。该菌种大多分离自土壤环境,少数分离自畜禽体内[23]。其菌落多呈淡黄色、表面隆起且质地粗糙,在液体培养过程中伴有菌膜形成;菌体呈杆状,可形成椭圆形内生芽孢,具备运动能力[24]。解淀粉芽孢杆菌在生长过程中会向胞外分泌多种酶类,是生产工业用酶的主要菌种之一,可合成蛋白酶、淀粉酶、脂肪酶等[25-26]。此外,解淀粉芽孢杆菌在代谢过程中会分泌多种具有抗真菌、抗细菌活性的代谢产物,在农作物病害防控和畜禽养殖领域突显出重大的应用潜力[27-28]。
本研究以实验室保藏的15株菌株为筛选对象,通过发酵性能比较筛选2,3-丁二醇高产菌株,并对其发酵条件进行优化,以实现目标产物产量提升。
1 材料与方法
1.1 菌株、材料与试剂
15株菌株(包括芽孢杆菌、解淀粉芽孢杆菌35M[29]、肠杆菌和沙雷氏菌) 本实验室保藏;2,3-丁二醇标准品 上海阿拉丁生化科技股份有限公司;所用试剂均为分析纯。
LB培养基:氯化钠10.0 g、蛋白胨10.0 g、酵母粉5.0 g(1 L固体培养基加入20 g琼脂),补水定容至1 000 mL;发酵培养基:蛋白胨10.0 g/L、磷酸二氢钾0.75 g/L、磷酸氢二钾0.75 g/L、2-(N-吗啉基)乙磺酸(20 mmol/L)4.265 g/L、Na2S 0.5 g/L、L-半胱氨酸0.024 g/L、Na2SeO3-Na2WO4 1.0 mL、微量元素母液1.0 mL;种子液:从-80 ℃冰箱取出甘油管保存菌株,在LB平板划线培养得到单菌落,30 ℃倒置培养过夜;将平板中的单菌落接至LB液体培养基中,30 ℃、200 r/min培养过夜作为种子液。
1.2 仪器与设备
DL-CJ-2ND I超净工作台 上海沪净医疗器械有限公司;303A-2培养箱 上海圣欣科学仪器有限公司;PC-96聚合酶链式反应(polymerase chain reaction,PCR)仪 美国ABI公司;ZQZY-78C摇床 上海知楚仪器有限公司;L-CM-1524R小型台式冷冻离心机 基因有限公司;Cary 60紫外分光光度计 美国Thermo Fisher Scientific公司;1200高效液相色谱(high performance liquid chromatography,HPLC)仪 美国Agilent公司。
1.3 方法
1.3.1 产2,3-丁二醇菌株筛选
芽孢杆菌、肠杆菌和沙雷氏菌均为已报道的可产2,3-丁 二醇的菌株,因此,以实验室保藏并初步鉴定的芽孢杆菌、肠杆菌和沙雷氏菌作为实验材料,利用发酵培养基发酵后,通过HPLC法检测发酵上清液中2,3-丁二醇含量。
1.3.2 2,3-丁二醇含量测定
用HPLC法[30-31]测定发酵液中2,3-丁二醇含量。取1 mL发酵液,8 000 r/min离心5 min,取上清液过0.45 μm 滤膜至进样瓶。HPLC条件:Aminex HPX-87H有机酸分析柱(300 mm×7.8 mm);流动相:5 mmol/L H2SO4 (经0.22 μm滤膜过滤);柱温65 ℃;流速0.6 mL/min;进样量20 μL;检测器为示差折光检测器。以2,3-丁二醇溶液质量浓度为横坐标(x)、峰面积为纵坐标(y)绘制标准曲线[30-31],计算回归方程与决定系数。
1.3.3 发酵工艺优化单因素试验
1.3.3.1 不同碳源对2,3-丁二醇产量的影响
分别以葡萄糖、麦芽糖、蔗糖和果糖作为唯一碳源配制发酵培养基,以1%(V/V)接种量接入种子液,30 ℃、200 r/min培养,每隔24 h取发酵液,测定2,3-丁二醇含量,以考察葡萄糖、麦芽糖、蔗糖和果糖对菌株产2,3-丁二醇的影响。
1.3.3.2 初始葡萄糖添加量对2,3-丁二醇产量的影响
向发酵培养基中分别添加50、100、150、200 g/L葡萄糖作为碳源,以1%(V/V)接种量接入种子液,30 ℃、200 r/min培养,发酵完成后收集发酵液,测定 2,3-丁二醇含量,以考察不同初始葡萄糖含量对菌株产2,3-丁二醇的影响。
1.3.3.3 不同发酵温度对2,3-丁二醇产量的影响
以100 g/L葡萄糖为碳源,以1%(V/V)接种量接入种子液,25、30、37 ℃,200 r/min培养,发酵完成后收集发酵液,测定2,3-丁二醇含量,以考察不同发酵温度对菌株产2,3-丁二醇的影响。
1.3.3.4 不同转速对2,3-丁二醇产量的影响
以100 g/L葡萄糖为碳源,以1%(V/V)接种量接入种子液,37 ℃,180、200、220 r/min培养,发酵完成后收集发酵液,测定2,3-丁二醇含量,以考察不同转速对菌株产2,3-丁二醇的影响。
1.3.3.5 初始pH值对2,3-丁二醇产量的影响
以100 g/L葡萄糖为碳源,选择pH 6、7、8的发酵培养,以1%(V/V)接种量接入种子液,37 ℃、220 r/min培养,发酵完成后收集发酵液,测定2,3-丁二醇含量,以考察培养基初始pH值对菌株产2,3-丁二醇的影响。
1.3.4 发酵工艺优化正交试验
基于单因素试验结果,进一步对葡萄糖添加量(50、100、150 g/L)、发酵温度(25、30、37 ℃)和初始pH值(6、7、8)3个因素进行正交试验优化。
1.3.5 生长曲线绘制
采用紫外分光光度法测定菌体浓度,动态监测菌株生长状况。在发酵过程中每2 h取样,以去离子水作为空白对照,将发酵液稀释适当倍数后测定其OD600 nm值,以发酵时间为横坐标,对应时间点测得的OD600 nm为纵坐标,绘制菌株生长曲线。
1.4 数据处理
采用SPSS 26整理数据并进行单因素方差分析、Origin绘图。
2 结果与分析
2.1 2,3-丁二醇含量定量分析
以2,3-丁二醇标准品质量浓度为横坐标(x)、对应色谱峰面积为纵坐标(y)进行线性回归拟合,得到标准曲线方程y=238 185x+39 376,决定系数为0.999 7,表明在所设置质量浓度范围内,2,3-丁二醇与检测器响应值具有良好的线性相关性,符合定量分析要求[32]。由图1a可知,2,3-丁二醇标准品保留时间为17.384 min。由图1b可知,菌株35M发酵液中2,3-丁二醇保留时间为17.171 min,与标准品出峰时间基本吻合,可实现准确定性。将样品峰面积代入上述标准曲线方程,即可计算发酵体系中2,3-丁二醇的实际质量浓度。
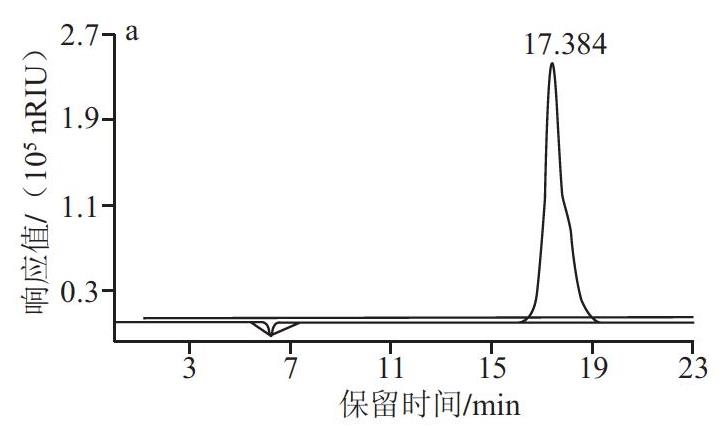
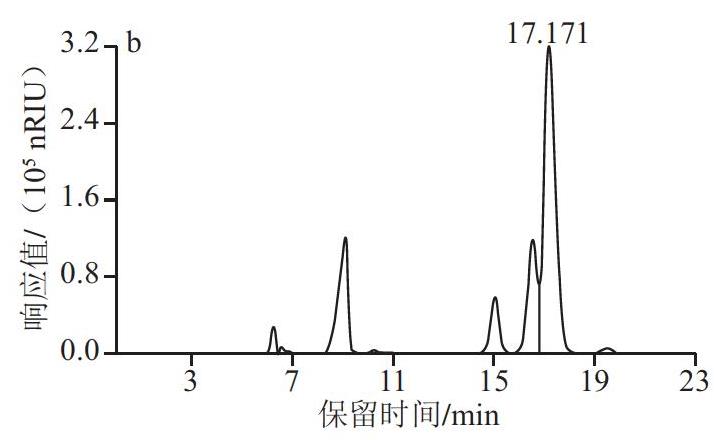
图1 2,3-丁二醇标准品(a)与35M发酵液(b) HPLC图
Fig.1 HPLC chromatograms of 2,3-butanediol standard (a) and strain 35M fermentation broth (b)
2.2 不同菌株产2,3-丁二醇能力对比
芽孢杆菌属、肠杆菌属和沙雷氏菌属细菌是合成 2,3-丁二醇的优势功能菌种,具备良好的产物合成潜力。基于此,本研究以实验室保藏且经初步鉴定的多株菌株为筛选对象,通过发酵实验系统对比不同菌株的2,3-丁二醇合成能力。由表1可知,芽孢杆菌、肠杆菌和沙雷氏菌发酵液中均可检出2,3-丁二醇,各菌株均具有高产2,3-丁二醇潜力。其中,菌株JS8-1和35M合成2,3-丁二醇产量较高。然而,肠杆菌JS8-1在生长过程中会合成大量胞外多糖,该过程会竞争性消耗发酵体系中的葡萄糖底物,大幅降低底物利用率与目标产物转化效率,进而限制 2,3-丁二醇积累。综上,选用解淀粉芽孢杆菌35M作为生产 2,3-丁二醇的出发菌株。
表1 不同菌株产2,3-丁二醇能力对比
Table1 Comparison of 2,3-butanediol-producing capacity among different strains
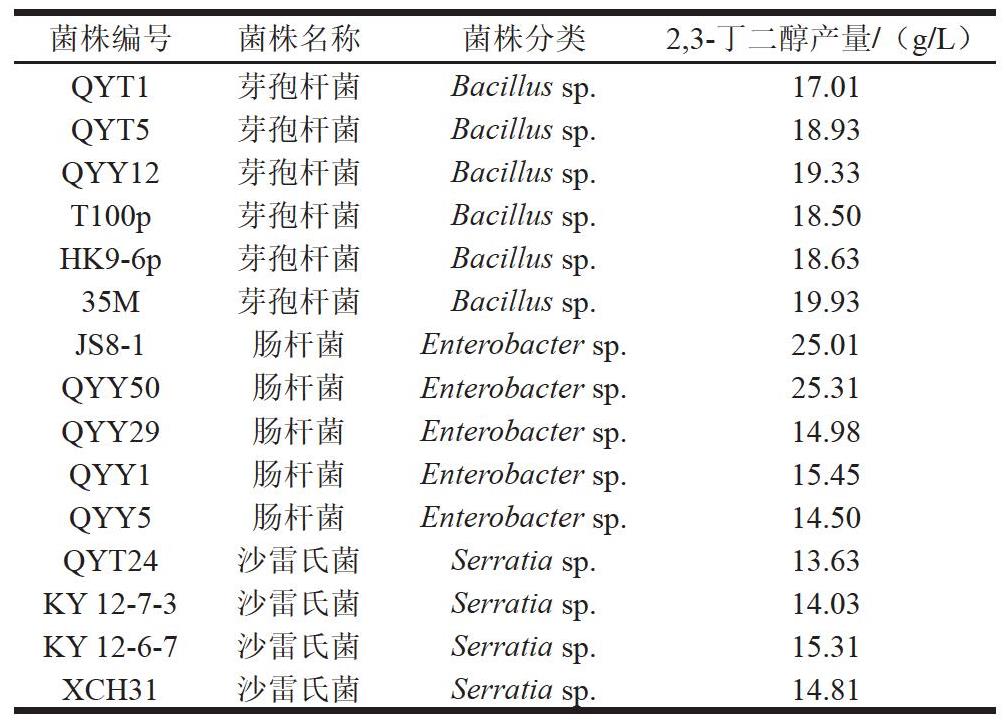
菌株编号菌株名称菌株分类2,3-丁二醇产量/(g/L)QYT1芽孢杆菌Bacillus sp.17.01QYT5芽孢杆菌Bacillus sp.18.93QYY12芽孢杆菌Bacillus sp.19.33T100p芽孢杆菌Bacillus sp.18.50HK9-6p芽孢杆菌Bacillus sp.18.6335M芽孢杆菌Bacillus sp.19.93JS8-1肠杆菌Enterobacter sp.25.01QYY50肠杆菌Enterobacter sp.25.31QYY29肠杆菌Enterobacter sp.14.98QYY1肠杆菌Enterobacter sp.15.45QYY5肠杆菌Enterobacter sp.14.50QYT24沙雷氏菌Serratia sp.13.63KY 12-7-3沙雷氏菌Serratia sp.14.03KY 12-6-7沙雷氏菌Serratia sp.15.31XCH31沙雷氏菌Serratia sp.14.81
2.3 解淀粉芽孢杆菌35M产2,3-丁二醇发酵条件优化单因素试验结果
2.3.1 碳源选择
由图2可知,不同碳源对菌株35M合成2,3-丁二醇具有显著影响。其中,以葡萄糖作为碳源时,2,3-丁二醇产量最高为19.50 g/L;以麦芽糖作为碳源时,2,3-丁二醇产量最高为12.75 g/L;以果糖作为碳源时,2,3-丁二醇产量最高为16.30 g/L;以蔗糖作为碳源时,2,3-丁二醇产量最高为17.43 g/L。以葡萄糖为碳源,2,3-丁二醇产量达到最高水平,表明葡萄糖是合成2,3-丁二醇的优势碳源。有报道[33]以葡萄糖为甲基芽孢杆菌唯一碳源进行发酵,2,3-丁二醇的最高产量可达20.53 g/L,与本研究结果一致。因此,本研究选用葡萄糖作为后续发酵生产2,3-丁二醇的碳源。
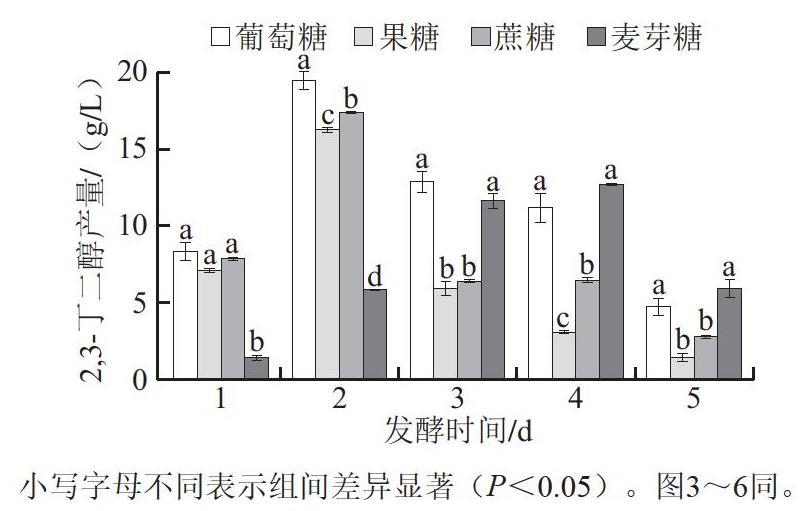
图2 碳源种类对菌株35M 发酵产2,3-丁二醇的影响
Fig.2 Effects of carbon-source types on 2,3-butanediol production by strain 35M
2.3.2 葡萄糖添加量选择
初始葡萄糖浓度是调控微生物发酵代谢与产物合成的关键参数。葡萄糖浓度过低会导致碳源供给不足,限制菌体增殖与目标产物积累;而葡萄糖浓度过高易形成高渗透压胁迫,抑制菌体生长代谢,从而降低目标产物合成效率[34]。由图3可知,发酵1 d时,随着葡萄糖添加量的增加,2,3-丁二醇含量呈下降趋势。此后,同一发酵时间,随着葡萄糖添加量的增加,2,3-丁二醇含量呈先上升再下降的趋势。在添加50 g/L葡萄糖时,2,3-丁二醇产量最高达22.17 g/L;在添加100 g/L葡萄糖时,2,3-丁二醇产量最高达37.98 g/L;在添加150 g/L葡萄糖时,2,3-丁二醇产量最高达38.85 g/L;在添加200 g/L葡萄糖时,2,3-丁二醇产量最高达33.82 g/L。在相同的发酵时间下,当初始葡萄糖质量浓度提高至150 g/L和200 g/L时,2,3-丁二醇产量反而下降,这可能是因为菌株35M对葡萄糖的转运和代谢能力在100 g/L已接近饱和,再继续提高初始葡萄糖质量浓度不仅无法促进产物合成,反而会因底物抑制降低转化率。因此,在摇瓶发酵条件下最适葡萄糖添加量为100 g/L。
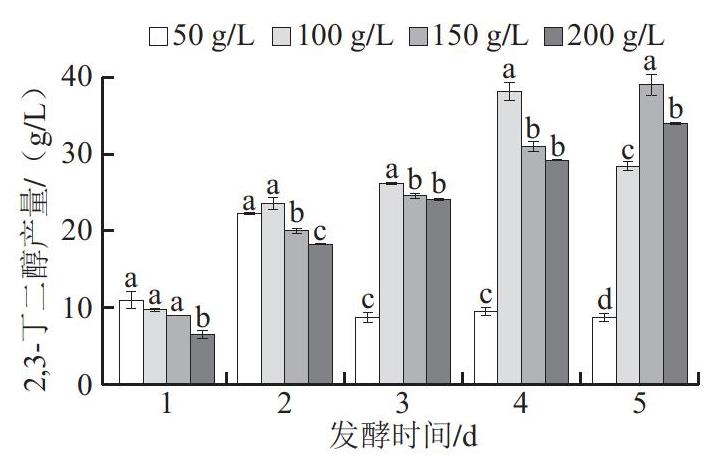
图3 初始葡萄糖添加量对菌株35M发酵产2,3-丁二醇影响
Fig.3 Effects of initial glucose addition on 2,3-butanediol production by strain 35M
值得注意的是,菌株35M具有良好的高糖耐受性,在葡萄糖质量浓度高达200 g/L的培养基中仍可生长。有研究采用地衣芽孢杆菌DSM 8785发酵产2,3-丁二醇,当葡萄糖质量浓度为180 g/L时,2,3-丁二醇产量达72.6 g/L, 采用分批补料发酵工艺后,其产物积累量进一步提升至144.7 g/L[35]。相比之下,本研究仅采用摇瓶一次性分批发酵模式,未采用补料调控策略,因此2,3-丁二醇产量仅为38.85 g/L,远低于该文献分批发酵水平。后续可借鉴补料发酵策略对解淀粉芽孢杆菌35M发酵工艺作进一步优化,以此显著提升2,3-丁二醇产量。
2.3.3 发酵温度选择
温度是调控发酵产物积累的关键环境因素之一,一方面可通过改变胞内关键代谢酶的催化活性重塑菌体代谢网络,另一方面能够改变发酵体系黏度、底物溶解度等理化参数,进而调控碳代谢流向与产物合成效率[36]。因此,筛选最适发酵温度需兼顾菌体正常生长与目标产物合成能力两大指标[37]。由图4可知,2,3-丁二醇产量整体随发酵温度的升高而增加,与25、30 ℃相比,37 ℃条件下菌株35M对葡萄糖的消耗速率更快,2,3-丁二醇积累水平也明显更高。发酵温度为37 ℃时,2,3-丁二醇产量最高为37.98 g/L;在25 ℃与30 ℃条件下,随着发酵时间的延长,2,3-丁二醇产量逐渐增加,最高分别为28.66 g/L和29.00 g/L。有报道显示,以木糖为底物时,栖异地克雷伯氏菌(K. variicola)SN5在37 ℃发酵可获得最高2,3-丁二醇产量[38]。因此,确定菌株35M以葡萄糖为底物合成2,3-丁二醇的最佳发酵温度为37 ℃。
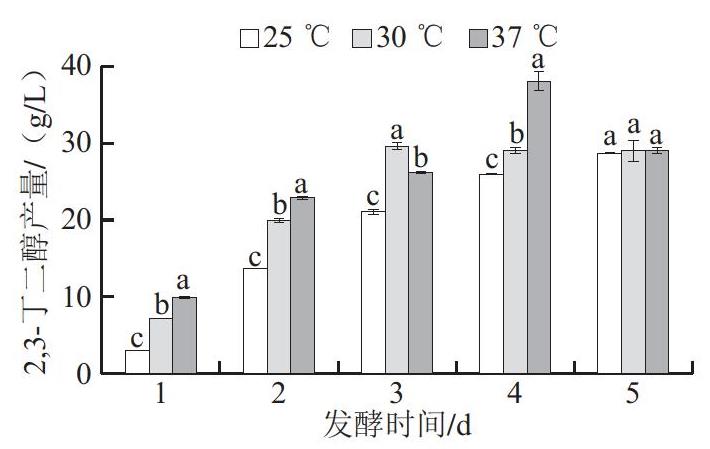
图4 不同发酵温度对菌株35M发酵产2,3-丁二醇的影响
Fig.4 Effects of different fermentation temperatures on 2,3-butanediol production by strain 35M
2.3.4 转速选择
摇床转速通过改变发酵体系溶氧含量调控菌株代谢过程,转速提升能够有效提高发酵体系的溶氧水平,而溶氧供给失衡会直接扰乱菌体正常生理代谢与产物合成[39]。由图5可知,随着摇床转速升高,2,3-丁二醇产量整体逐步升高。当摇床转速为180、200、220 r/min时,2,3-丁二醇最高产量分别为14.63、16.81、25.10 g/L。虽然提高摇床转速可增加发酵体系溶氧水平,有利于菌体生长,但2,3-丁二醇合成途径属于兼性厌氧代谢,在维持适宜菌体生长的前提下,相对较低的溶氧条件更有利于代谢流向2,3-丁二醇积累,从而提高目标产物产量[40]。同时,2,3-丁二醇属于微氧发酵产物,溶氧水平过高会导致2,3-丁二醇逆向转化为副产物乙偶姻,这与杨欢欢[41]、樊亚超[42]等的研究结论相同。综上,确定摇瓶发酵生产2,3-丁二醇的最佳摇床转速为220 r/min。
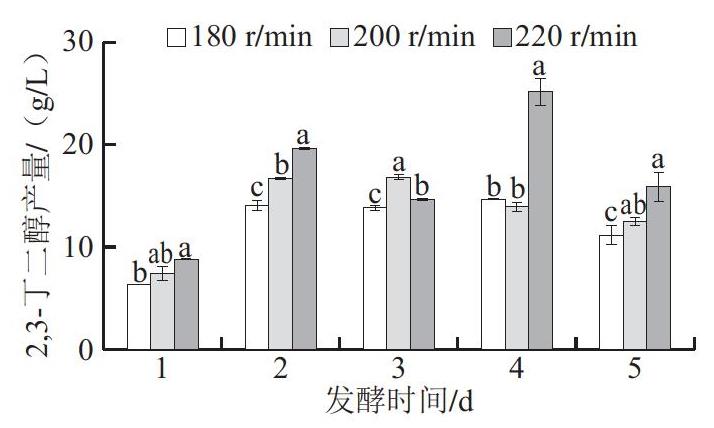
图5 不同转速对菌株35M发酵产2,3-丁二醇的影响
Fig.5 Effects of different rotation speeds on 2,3-butanediol production by strain 35M
2.3.5 初始pH值选择
pH值是调控细菌胞内代谢网络的关键环境参数,尤其在伴随多种副产物生成的复杂发酵过程中,pH值对代谢流分配的调控作用尤为关键[43]。碱性环境更利于有机酸积累,但会抑制2,3-丁二醇合成,降低目标产物积累;而在酸性条件下,有机酸产量降至碱性条件下的1/10左右,同时2,3-丁二醇产量可提升3~7倍[44]。由图6可知,当初始pH值处于6~8范围内时,2,3-丁二醇产量随初始pH值升高整体呈下降趋势。当初始pH值为6时,2,3-丁二醇产量最高为45.67 g/L;当初始pH值为7和8时,2,3-丁二醇产量随着发酵时间的延长而上升,产量最高分别达到33.29 g/L和31.65 g/L。有研究指出,栖异地克雷伯氏菌SN5以木糖为底物进行发酵时,2,3-丁二醇产量最高的pH值也为6[38]。与本研究结果一致。因此,以葡萄糖为底物时,菌株35M产2,3-丁二醇的最适初始pH值为6。
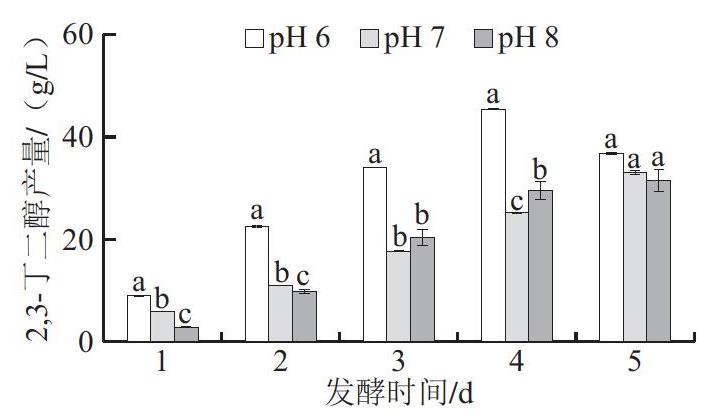
图6 初始pH值对菌株35M发酵产2,3-丁二醇的影响
Fig.6 Effects of initial pH on 2,3-butanediol production by strain 35M
2.4 发酵条件优化后解淀粉芽孢杆菌35M生长曲线和2,3-丁二醇产量
发酵条件优化后,菌株35M生长曲线与2,3-丁二醇产量随发酵时间变化如图7所示。菌体浓度在发酵过程中呈现升高后趋于平稳、随后下降的变化趋势,符合微生物典型生长周期变化规律。目标产物2,3-丁二醇产量呈现先升高后降低的趋势,发酵96 h时,产量达到最高,为45.78 g/L。
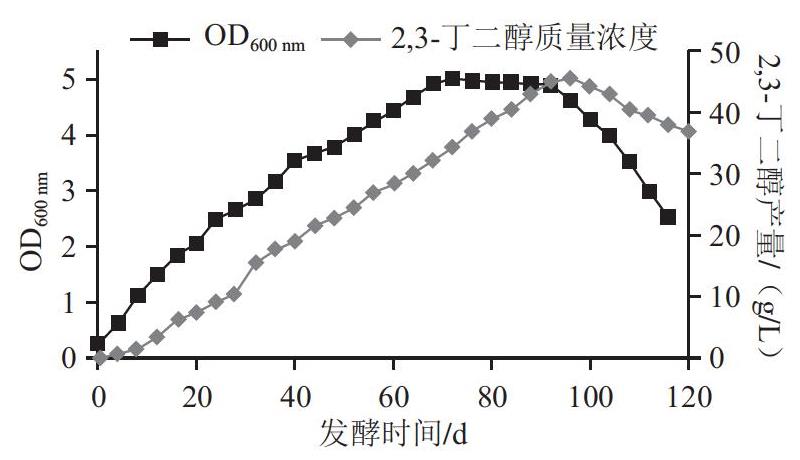
图7 菌株35M生长曲线及其2,3-丁二醇产量变化曲线
Fig.7 Growth curve and the corresponding 2,3-butanediol production curve of strain 35M
2.5 解淀粉芽孢杆菌35M产2,3-丁二醇发酵条件优化正交试验结果
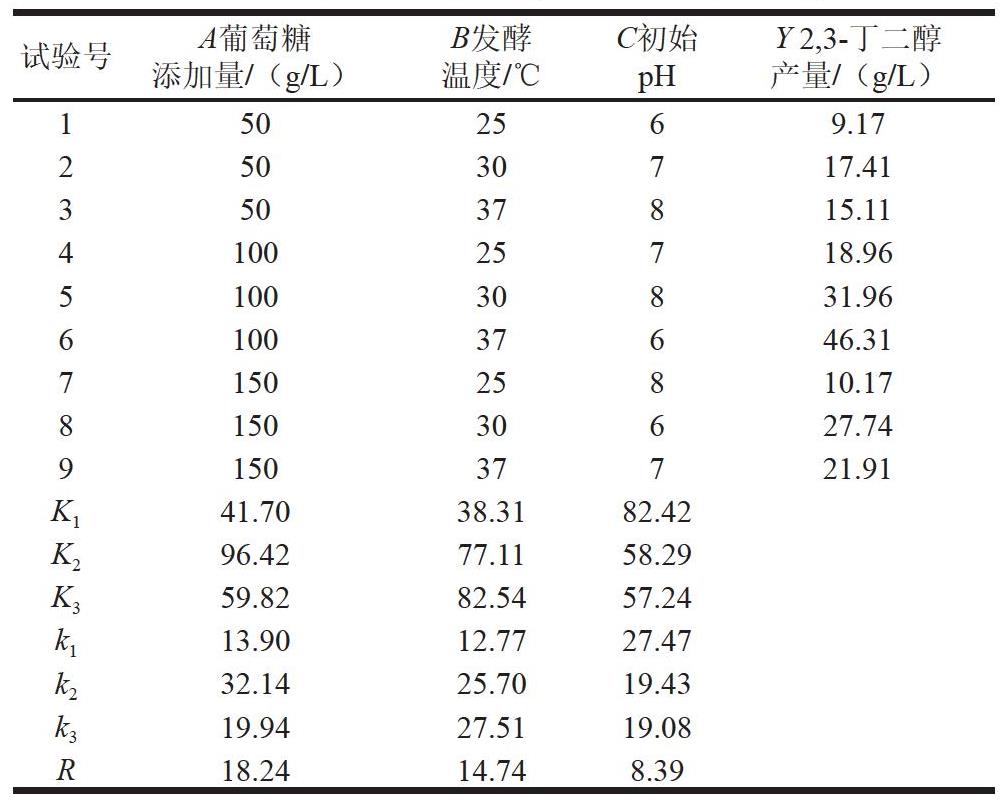
基于单因素试验结果,进一步对葡萄糖添加量(A)、 发酵温度(B)和初始pH值(C)3个因素进行正交试验优化,采用3因素3水平正交表L9(34)设计实验,共设置9组 培养基进行发酵,结果如表2所示。各组产物积累存在明显差异,其中第6组2,3-丁二醇产量最高,达46.31 g/L, 而第1组2,3-丁二醇产量最低,仅为9.17 g/L。极差分析结果显示,3个因素对2,3-丁二醇产量的影响主次顺序为葡萄糖添加量>发酵温度>初始pH值,3个因素最佳水平组合为A2B3C1,即葡萄糖添加量为100 g/L、发酵温度为37 ℃、初始pH值为6。该参数组合对应正交试验 第6组,其2,3-丁二醇产量46.31 g/L为正交试验所有组别中的最高值,较优化前(19.93 g/L)提高132%,验证了该工艺组合条件培养下,解淀粉芽孢杆菌35M具备最优的2,3-丁二醇合成能力。
表2 正交试验设与结果
Table2 Orthogonal array design and corresponding results
试验号添加A量葡/萄(糖g/L)温B发度酵/℃C初pH始产Y 2量,3/-丁(g二/L醇)1502569.1725030717.4135037815.11410025718.96510030831.96610037646.31715025810.17815030627.74915037721.91K141.7038.3182.42K296.4277.1158.29K359.8282.5457.24k113.9012.7727.47k232.1425.7019.43k319.9427.5119.08R18.2414.748.39
3 结 论
以15株实验室保藏菌株作为筛选对象,通过摇瓶发酵对比各菌株2,3-丁二醇合成能力,结果显示解淀粉芽孢杆菌35M具有较强的2,3-丁二醇合成能力,且具有良好的底物耐受性,因此,选取解淀粉芽孢杆菌35M作为目标菌株开展发酵条件系统优化。首先,碳源筛选结果表明,以葡萄糖作为碳源时,2,3-丁二醇产量明显优于麦芽糖、果糖、蔗糖。单因素试验结果显示,解淀粉芽孢杆菌35M产2,3-丁二醇的较优发酵条件为:葡萄糖添加量100 g/L、发酵温度37 ℃、转速220 r/min、培养基初始pH 6。在此优化条件下,解淀粉芽孢杆菌35M合成2,3-丁二醇的最高产量为45.78 g/L。根据单因素优化结果,通过正交试验优化得到最佳发酵条件:葡萄糖添加量100 g/L、发酵温度37 ℃、初始pH 6,与单因素试验最优参数保持一致。正交试验优化中,摇床转速控制为200 r/min,低于单因素试验最优转速。溶氧水平由摇床转速直接决定,可同步调控菌体增殖与2,3-丁二醇代谢流向,过高转速会促使菌株35M提前进入对数生长期,诱导胞内蛋白酶大量生成,加剧葡萄糖底物消耗,进而影响2,3-丁二醇合成与积累。综上,确定解淀粉芽孢杆菌35M发酵产2,3-丁二醇的最优工艺条件为:葡萄糖添加量100 g/L、发酵温度37 ℃、初始pH 6、摇床转速200 r/min。
解淀粉芽孢杆菌35M兼具蛋白酶分泌与2,3-丁二醇合成的双重代谢特性[29],未来可围绕两条代谢通路的内在关联展开深入研究,重点解析蛋白酶基因表达对2,3-丁二醇生物合成途径的影响,为该菌株工业化发酵生产2,3-丁二醇提供分子层面理论支撑。此外,解淀粉芽孢杆菌是一种潜在的生物防治剂,且其合成的2,3-丁二醇还具有植物生长促进作用[45]。综合发酵性能与附加生物功能,解淀粉芽孢杆菌35M在2,3-丁二醇绿色生物制造领域具备突出应用潜力,值得深入探索。
[1] 陈川. 克雷伯肺炎杆菌中2,3-丁二醇手性异构体合成途径的解析和调控研究[D]. 天津: 天津科技大学, 2014.
[2] Tinôco D, Borschiver S, Coutinho P L, et al. Technological development of the bio-based 2,3-butanediol process[J]. Biofuels,Bioproducts and Biorefining, 2021, 15(2): 357-376. DOI:10.1002/bbb.2173.
[3] Gawal P M, Subudhi S. Advances and challenges in bio-based 2,3-BD downstream purification: a comprehensive review[J].Bioresource Technology Reports, 2023, 24: 101638. DOI:10.1016/j.biteb.2023.101638.
[4] Ebrahimian F, Mohammadi A. Assessing the environmental footprints and material flow of 2,3-butanediol production in a woodbased biorefinery[J]. Bioresource Technology, 2023, 387: 129642.DOI:10.1016/j.biortech.2023.129642.
[5] Ji Xiaojun, Huang He, Ouyang Pingkai. Microbial 2,3-butanediol production: a state-of-the-art review[J]. Biotechnology Advances,2011, 29(3): 351-364. DOI:10.1016/j.biotechadv.2011.01.007.
[6] Taiwo A E, Madzimbamuto T N, Ojumu T V. Recovery of acetoin from Bacillus subtilis fermentation broth by supercritical CO2 extraction[J].Biomass Conversion and Biorefinery, 2025, 15(4): 5351-5359.DOI:10.1007/s13399-024-05298-7.
[7] 马成伟, 杜彤, 孙亚琴, 等. 生物转化法生产2,3-丁二醇的研究[J].精细与专用化学品, 2006, 14(15): 15-18. DOI:10.3969/j.issn.1008-1100.2006.15.005.
[8] Wu Jing, Zhou Yujie, Zhang Wen, et al. Screening of a highly inhibitortolerant bacterial strain for 2,3-BDO and organic acid production from non-detoxified corncob acid hydrolysate[J]. AMB Express, 2019, 9: 153. DOI:10.1186/s13568-019-0879-1.
[9] 孟文斯. 2,3-丁二醇合成在乙酸溢流消除中的作用分析与低成本生产[D]. 济南: 山东大学, 2020. DOI:10.27272/d.cnki.gshdu.2020.005791.
[10] Tinôco D, Freire D M G. Scale-up of 2,3-butanediol production by Paenibacillus peoriae NRRL BD-62 using constant oxygen transfer rate-based strategy[J]. Fuel, 2023, 340: 127603. DOI:10.1016/j.fuel.2023.127603.
[11] Tanwee T N N, Lipscomb G L, Vailionis J L, et al. Metabolic engineering of Caldicellulosiruptor bescii for 2,3-butanediol production from unpretreated lignocellulosic biomass and metabolic strategies for improving yields and titers[J]. Applied and Environmental Microbiology, 2024, 90: e01951-23. DOI:10.1128/aem.01951-23.
[12] 王家旺, 邓利廷, 孙健, 等. 产2,3-丁二醇的酿酒酵母菌的筛选及其鉴定[J]. 中国酿造, 2020, 39(1): 21-25. DOI:10.11882/j.issn.0254-5071.2020.01.005.
[13] Maina S, Prabhu A A, Vivek N, et al. Prospects on bio-based 2,3-butanediol and acetoin production: recent progress and advances[J]. Biotechnology Advances, 2022, 54: 107783. DOI:10.1016/j.biotechadv.2021.107783.
[14] Rehman S, Khairul Islam M, Khalid Khanzada N, et al. Whole sugar 2,3-butanediol fermentation for oil palm empty fruit bunches biorefinery by a newly isolated Klebsiella pneumoniae PM2[J]. Bioresource Technology, 2021, 333: 125206. DOI:10.1016/j.biortech.2021.125206.
[15] Han Ju, Wang Fan, Li Zhihao, et al. Isolation and identification of an osmotolerant Bacillus amyloliquefaciens strain T4 for 2,3-butanediol production with tobacco waste[J]. Preparative Biochemistry & Biotechnology, 2022, 52(2): 210-217. DOI:10.1080/10826068.2021.1925912.
[16] Folle A B, De Souza B C, Reginatto C, et al. Medium composition and aeration to high (R,R)-2,3-butanediol and acetoin production by Paenibacillus polymyxa in fed-batch mode[J]. Archives of Microbiology, 2023, 205(5): 171. DOI:10.1007/s00203-023-03521-z.
[17] Ju J H, Jo M H, Heo S Y, et al. Production of highly pure R,R-2,3-butanediol for biological plant growth promoting agent using carbon feeding control of Paenibacillus polymyxa MDBDO[J]. Microbial Cell Factories, 2023, 22(1): 121. DOI:10.1186/s12934-023-02133-y.
[18] Meng Wensi, Zhang Yongjia, Cao Menghao, et al. Efficient 2,3-butanediol production from whey powder using metabolically engineered Klebsiella oxytoca[J]. Microbial Cell Factories, 2020, 19(1): 162. DOI:10.1186/s12934-020-01420-2.
[19] Rao Ben, Zhang Liao yuan, Sun Jian’an, et al. Characterization and regulation of the 2,3-butanediol pathway in Serratia marcescens[J].Applied Microbiology and Biotechnology, 2012, 93(5): 2147-2159.DOI:10.1007/s00253-011-3608-5.
[20] Vikromvarasiri N, Noda S, Shirai T, et al. Investigation of two metabolic engineering approaches for (R,R)-2,3-butanediol production from glycerol in Bacillus subtilis[J]. Journal of Biological Engineering,2023, 17(1): 3. DOI:10.1186/s13036-022-00320-w.
[21] Faria P E, Castro A M, Freire D M G, et al. Enzymes and pathways in microbial production of 2,3-butanediol and 3-acetoin isomers[J].Critical Reviews in Biotechnology, 2023, 43(1): 67-81. DOI:10.1080/07388551.2021.2004990.
[22] Priest F G, Goodfellow M, Shute L A, et al. Bacillus amyloliquefaciens sp. nov., nom. rev[J]. International Journal of Systematic Bacteriology,1987, 37(1): 69-71. DOI:10.1099/00207713-37-1-69.
[23] Fan Ben, Blom J, Klenk H P, et al. Bacillus amyloliquefaciens,Bacillus velezensis, and Bacillus siamensis form an o“perational group B. amyloliquefaciens” within the B. subtilis species complex[J].Frontiers in Microbiology, 2017, 8: 22. DOI:10.3389/fmicb.2017.00022.
[24] 王继华, 徐世强, 张木清. 解淀粉芽孢杆菌的研究进展[J]. 亚热带农业研究, 2017, 13(3): 191-195. DOI:10.13321/j.cnki.subtrop.agric.res.2017.03.010.
[25] Wang Hui, Yang Lian, Ping Yanhai, et al. Engineering of a Bacillus amyloliquefaciens strain with high neutral protease producing capacity and optimization of its fermentation conditions[J]. PLoS ONE, 2016,11(1): e0146373. DOI:10.1371/journal.pone.0146373.
[26] Wang Hongbin, Huang Lin, Li Yanzhen, et al. Characterization and application of a novel laccase derived from Bacillus amyloliquefaciens[J]. International Journal of Biological Macromolecules, 2020, 150: 982-990. DOI:10.1016/j.ijbiomac.2019.11.117.
[27] Chen X H, Koumoutsi A, Scholz R, et al. Genome analysis of Bacillus amyloliquefaciens FZB42 reveals its potential for biocontrol of plant pathogens[J]. Journal of Biotechnology, 2009, 140(1/2): 27-37.DOI:10.1016/j.jbiotec.2008.10.011.
[28] Woldemariam Yohannes K, Wan Zhen, Yu Qinglin, et al. Prebiotic,probiotic, antimicrobial, and functional food applications of Bacillus amyloliquefaciens[J]. Journal of Agricultural and Food Chemistry,2020, 68(50): 14709-14727. DOI:10.1021/acs.jafc.0c06396.
[29] Xie Fuhong, Feng Fei, Liu Dehai, et al. Bacillus amyloliquefaciens 35M can exclusively produce and secrete proteases when cultured in soybean-meal-based medium[J]. Colloids and Surfaces B: Biointerfaces, 2022, 209: 112188. DOI:10.1016/j.colsurfb.2021.112188.
[30] Zhao Mei, Huang Dixuan, Zhang Xiaojuan, et al. Metabolic engineering of Escherichia coli for producing adipic acid through the reverse adipate-degradation pathway[J]. Metabolic Engineering, 2018,47: 254-262. DOI:10.1016/j.ymben.2018.04.002.
[31] Zhu Bingfeng, Xu Yan. Production of tetramethylpyrazine by batch culture of Bacillus subtilis with optimal pH control strategy[J]. Journal of Industrial Microbiology & Biotechnology, 2010, 37(8): 815-821.DOI:10.1007/s10295-010-0726-5.
[32] 张显. 高产乙偶姻枯草芽孢杆菌的代谢工程改造[D]. 无锡: 江南大学, 2013.
[33] 林燕环, 陈飞雪, 魏宸鑫, 等. 高温产2,3-丁二醇甲基芽孢杆菌的筛选及其发酵优化[J]. 食品与发酵工业, 2024, 50(18): 98-106.DOI:10.13995/j.cnki.11-1802/ts.039706.
[34] Li Zhi, Wang Hui, Tang Zongxun, et al. Effects of pH value and substrate concentration on hydrogen production from the anaerobic fermentation of glucose[J]. International Journal of Hydrogen Energy,2008, 33(24): 7413-7418. DOI:10.1016/j.ijhydene.2008.09.048.
[35] Jurchescu I M, Hamann J, Zhou Xiye, et al. Enhanced 2,3-butanediol production in fed-batch cultures of free and immobilized Bacillus licheniformis DSM 8785[J]. Applied Microbiology and Biotechnology, 2013, 97(15): 6715-6723. DOI:10.1007/s00253-013-4981-z.
[36] Cloughley J B. The effect of temperature on enzyme activity during the fermentation phase of black tea manufacture[J]. Journal of the Science of Food and Agriculture, 1980, 31(9): 920-923. DOI:10.1002/jsfa.2740310909.
[37] 董云舟, 堵国成, 陈坚. 芽孢杆菌发酵产碱性果胶酶温度控制策略[J]. 应用与环境生物学报, 2005, 11(3): 359-362.
[38] 冉光耀, 罗琇元, 廖海丽, 等. 木糖发酵产2,3-丁二醇菌株的筛选鉴定及其发酵条件优化[J]. 中国酿造, 2024, 43(11): 85-91.DOI:10.11882/j.issn.0254-5071.2024.11.014.
[39] Huang W C, Chen S J, Chen T L. The role of dissolved oxygen and function of agitation in hyaluronic acid fermentation[J]. Biochemical Engineering Journal, 2006, 32(3): 239-243. DOI:10.1016/j.bej.2006.10.011.
[40] Fu Jing, Wang Zhiwen, Chen Tao, et al. NADH plays the vital role for chiral pure D-(-)-2,3-butanediol production in Bacillus subtilis under limited oxygen conditions[J]. Biotechnology and Bioengineering,2014, 111(10): 2126-2131. DOI:10.1002/bit.25265.
[41] 杨欢欢, 高健, 徐虹, 等. 利用菊芋菊粉制备R,R-2,3-丁二醇发酵工艺条件的优化[J]. 食品与发酵工业, 2011, 37(11): 6-10.
[42] 樊亚超, 张霖, 李晓姝, 等. Klebsiella pneumoniae CICC10011发酵产2,3-丁二醇的工艺研究[J]. 中国生物工程杂志, 2018, 38(2): 68-74.DOI:10.13523/j.cb.20180210.
[43] 司阳, 夏黎明. 利用玉米秸秆水解液发酵生产2,3-丁二醇[J]. 食品与发酵工业, 2010, 36(2): 26-29.
[44] Garg S K, Jain A. Fermentative production of 2,3-butanediol:a review[J]. Bioresource Technology, 1995, 51(2/3): 103-109.DOI:10.1016/0960-8524(94)00136-O.
[45] Wu Yuncheng, Zhou Jinyan, Li Chengguo, et al. Antifungal and plant growth promotion activity of volatile organic compounds produced by Bacillus amyloliquefaciens[J]. MicrobiologyOpen, 2019, 8(8): e00813.DOI:10.1002/mbo3.813.