我国是全球最大的苹果生产国与消费国,苹果栽培面积与年产量长期居于世界首位[1]。根据国家统计局最新数据,2022年我国苹果果园面积为1 955.77千 hm2,苹果产量达4 757.18万 t,同比增长3.5%[2]。苹果营养全面,富含维生素(如抗坏血酸)、多种矿物质(钙、镁、磷、铁等)及优质膳食纤维,同时含有丰富的类黄酮化合物及少量蛋白质、脂肪与生物活性酶类[3]。目前,我国苹果的主要加工形式包括浓缩苹果汁、苹果酒、苹果发酵饮料、果脯、果酱等。其中,苹果酒既保留了苹果的营养与风味,又符合市场对高品质饮品的需求[4]。
酵母菌种是决定苹果酒品质的重要因素之一。酿酒酵母(Saccharomyces cerevisiae)是乙醇发酵过程中的主导菌株;而某些特定的非酿酒酵母能够产生酯类、高级醇等关键挥发性香气物质,从而有效丰富并优化果酒风味轮廓与感官层次。二者通过代谢互补与相互作用共同构建果酒典型的风味体系[5-6]。研究表明,胶红酵母(Rhodotorula mucilaginosa)与酿酒酵母混菌发酵能有效提升果酒的综合品质与风味层次[7-8]。发酵温度是混菌发酵体系的核心调控参数,通过同时介导酿酒酵母等单一菌株的代谢活性及酿酒酵母与非酿酒酵母的种间互作关系驱动发酵动力学与代谢平衡重塑,进而系统性决定产品理化品质与感官特征[9-10]。目前,关于温度对胶红酵母与酿酒酵母混菌发酵过程中微生物互作及代谢调控的影响,尚缺乏系统性研究。
因此,本研究聚焦于发酵温度对混菌发酵苹果酒品质的影响,旨在系统探究其对酿酒酵母与胶红酵母混菌发酵体系下,酵母间相互作用与代谢特性差异的影响。通过对比分析不同温度条件下所得苹果酒的理化指标、风味物质及感官品质,明确混菌发酵最佳温度条件,为优化苹果酒混菌发酵工艺提供理论依据与实践指导。
1 材料与方法
1.1 菌株、材料与试剂
酿酒酵母CGMCC 2.3854 中国普通微生物菌种保藏管理中心;胶红酵母分离于自然发酵苹果酒;苹果 市购。
YPD固体培养基、YPD液体培养基 青岛高科技工业园海博生物技术有限公司;磷酸、甲醇、NaOH标准溶液、2,2′-联氮-双(3-乙基苯并噻唑啉-6-磺酸)(2,2′-azinobis(3-ethylbenzothiazoline-6-sulfonic acid),ABTS)、福林酚、仲辛醇、没食子酸、碳酸钠 上海麦克林生化科技有限公司;1,1-二苯基-2-三硝基苯肼(1,1-diphenyl-2-picrylhydrazyl,DPPH)、抗坏血酸、酒石酸、乳酸、乙酸、柠檬酸、琥珀酸、苹果酸、亚硝酸钠 上海阿拉丁生化科技股份有限公司。
1.2 仪器与设备
ZWY-211B恒温培养振荡器 上海智城分析仪器制造有限公司;Infinite 200酶标仪 瑞士Tecan公司;FE28-Standard pH计 梅特勒-托利多仪器(上海)有限公司;7890B-5977A气相色谱-质谱(gas chromatographymass spectrometry,GC-MS)仪 美国Agilent公司;FlavourSpec®风味分析仪 德国G.A.S.公司;LC-16高效液相色谱仪 日本Shimadzu公司;UltraScan PRO测色仪 美国HunterLab公司。
1.3 方法
1.3.1 接种方案
将酿酒酵母与胶红酵母分别接种于YPD液体培养基中,28 ℃活化培养24 h,连续转接两次;收集菌液,8 000 r/min离心10 min,采用0.9 g/100 mL NaCl溶液清洗3次,制备酵母细胞悬液;新鲜苹果经清洗、切块、压榨制得苹果汁,取200 mL果汁置于250 mL蓝盖瓶,通过加入食品级葡萄糖将可溶性固形物含量调至20 °Brix,经巴氏灭菌处理后接入酵母细胞,接种量为106 CFU/mL。共设置6个发酵处理组:SC-18(单独接种酿酒酵母,18 ℃发酵)、SC-23(单独接种酿酒酵母,23 ℃发酵)、SC-28(单独接种酿酒酵母,28 ℃发酵)、MF-18(同时接种酿酒酵母与胶红酵母,18 ℃发酵)、MF-23(同时接种酿酒酵母与胶红酵母,23 ℃发酵)、MF-28(同时接种酿酒酵母与胶红酵母,28 ℃发酵),以未接种酵母苹果汁为空白对照组。
1.3.2 发酵动力学与微生物动力学测定
使用手持式糖度计测定可溶性固形物含量。
CO2质量损失累积曲线测定:记录发酵前苹果汁和蓝盖瓶质量,每日定时测定发酵体系总质量,其与初始体系总质量的差值即为发酵过程中CO2释放引发的体系质量损失。
发酵过程中生物量变化:在苹果酒发酵过程中,根据发酵阶段动态设定取样频率,各节点视苹果酒实际代谢变化灵活确定,不设固定死板间隔。取样后用无菌水进行梯度稀释。采用YPD固体培养基,通过平板计数(28 ℃孵育48 h)监测发酵过程中酵母菌生物量变化。其中,酿酒酵母菌落光滑,呈乳白色;胶红酵母菌落光滑,呈红色,相对较小。
1.3.3 理化指标测定
采用pH计测定pH值;参考Yang Bo等[11]的方法测定总酸含量、葡萄糖含量、乙醇体积分数。采用测色仪于总透射模式下测定色泽参数(L*、a*、b*)。
1.3.4 有机酸与抗坏血酸含量测定
有机酸(酒石酸、苹果酸、乳酸、乙酸、柠檬酸、琥珀酸)和抗坏血酸含量测定参考Yang Bo等[11]的方法并作适当修改。采用配备ZORBAX-SB C18色谱柱(250 mm×4.6 mm,5 µm)及紫外检测器的高效液相色谱仪测定,柱温30 ℃、检测波长210 nm;流动相A为0.01 mol/L (NH4)2HPO4缓冲液(pH 2.5),B为甲醇,等度洗脱(98∶2,V/V),流速0.5 mL/min;进样量10 µL。配制含6种有机酸的混合标准工作液,设置50、100、150、250、500 mg/L系列质量浓度梯度,溶液经0.22 μm水系滤膜过滤后上机进样,以质量浓度与对应色谱峰面积拟合建立标准曲线。所有样品过滤后直接测定。
1.3.5 总酚、总黄酮含量及抗氧化活性测定
总酚含量测定参考Navajas-Porras等[12]的方法并稍作修改。将1 mL稀释至一定倍数的样品与1 mL福林酚溶液、2 mL 20 g/100 mL Na2CO3溶液和2 mL ddH2O混合,黑暗环境下反应30 min后,760 nm波长处测定吸光度。
总黄酮含量测定参考Wu Yingmei等[13]的方法并稍作修改。将200 μL样品与100 μL 5 g/100 mL NaNO2溶液混匀,6 min后加入100 μL 10 g/100 mL AlCl3溶液,混匀,6 min后加入1 mL 4 g/100 mL NaOH溶液,混匀,反应30 min后,在510 nm波长处测定吸光度。
DPPH自由基和ABTS阳离子自由基清除活性测定参照Zhao Huan等[14]的方法稍作修改。对于DPPH自由基清除活性,配制0.2 mmol/L DPPH乙醇溶液,于棕色蓝盖瓶中保存;将苹果酒稀释液与DPPH溶液按体积比1∶1混匀,避光静置反应30 min后于517 nm波长处测定吸光度,以没食子酸为标准品,绘制标准曲线;对于ABTS阳离子自由基清除活性,将14 mmol/L ABTS溶液与5 mmol/L K2S2O8按体积比1∶1混匀,避光反应12~16 h;采用80%乙醇稀释,调节734 nm波长处吸光度至0.7~0.8,得到ABTS阳离子工作液备用,取100 μL样品,加入900 μL ABTS阳离子工作液,混匀,避光孵育15 min后测定734 nm波长处吸光度,以Trolox为标准品,绘制标准曲线。DPPH自由基清除活性以没食子酸当量计,ABTS阳离子自由基清除活性以Trolox当量计,单位均为mg/L。
1.3.6 挥发性风味物质分析
参考Wu Yuzheng等[15]的方法,采用气相色谱-离子迁移谱(gas chromatography-ion mobility spectrometry,GC-IMS)法测定苹果汁和苹果酒中的挥发性有机化合物(volatile organic compounds,VOCs)。使用MXT-WAX色谱柱(30 m×0.53 mm,1 μm)。
参考Liu Shijiao等[16]的方法,采用固相微萃取结合GC-MS法测定苹果汁和苹果酒中的VOCs。将2 mL样品置于20 mL顶空瓶中,加入20 μL内标仲辛醇(600 mg/L)。将MS数据与NIST 14文库进行比较,对样品中的风味化合物进行定性。将风味化合物峰面积与内标物峰面积进行比较,对鉴定的风味化合物进行定量分析。
1.3.7 感官评价
苹果酒感官评定小组(10男10女,年龄20~30岁,身体健康)由本学院学生组成。感官评定在室温(25 ℃)条件下进行,将各组苹果酒取20 mL分装至品尝杯中,要求感官评定员对苹果酒的色泽、香气、乙醇味、澄清度、滋味和整体可接受性描述词进行评分。采用0~5分量表:0=“无法感知”、1=“非常微弱”、2=“微弱”、3=“中等”、4=“强烈”、5=“非常强烈”。各组样品评价间隔休息10 min,同时提供纯净水漱口,消除样品间风味残留,防止感官疲劳。
1.4 数据处理
所有结果均以x±s表示。通过Origin 2024b软件进行数据处理和图表绘制。采用SPSS 27.0软件进行单因素方差分析和邓肯检验,P<0.05表示差异显著。通过SIMCA 14.1软件对挥发性风味物质进行主成分分析(principal component analysis,PCA)。
2 结果与分析
2.1 苹果酒发酵动力学和微生物动力学
2.1.1 苹果酒发酵动力学
如图1A所示,在不同发酵温度下,各组均能完成发酵过程。随着发酵温度降低,酿酒酵母单菌发酵周期明显延长:28、23、18 ℃条件下分别需12、15、25 d完成发酵,表明低温可延缓酵母对可溶性固形物的利用速率。在18 ℃条件下,单菌发酵前3 d内可溶性固形物消耗缓慢,而混菌发酵组未出现该延滞现象,说明胶红酵母有助于促进酿酒酵母在低温下的发酵启动。进一步观察发现,在18 ℃与28 ℃条件下,混菌发酵组可溶性固形物含量下降速率均高于单菌发酵,提示胶红酵母可能提升了酿酒酵母在低温环境中的代谢活性。如图1B所示,CO2质量损失变化趋势与可溶性固形物结果基本一致:除SC-18组外,28 ℃条件下单菌发酵组CO2释放总量最高,且随着温度降低,CO2释放量逐渐减少,说明发酵温度直接影响酵母代谢强度,温度越高,发酵速率越快。该结果与Gamero等[17]的研究结论一致。
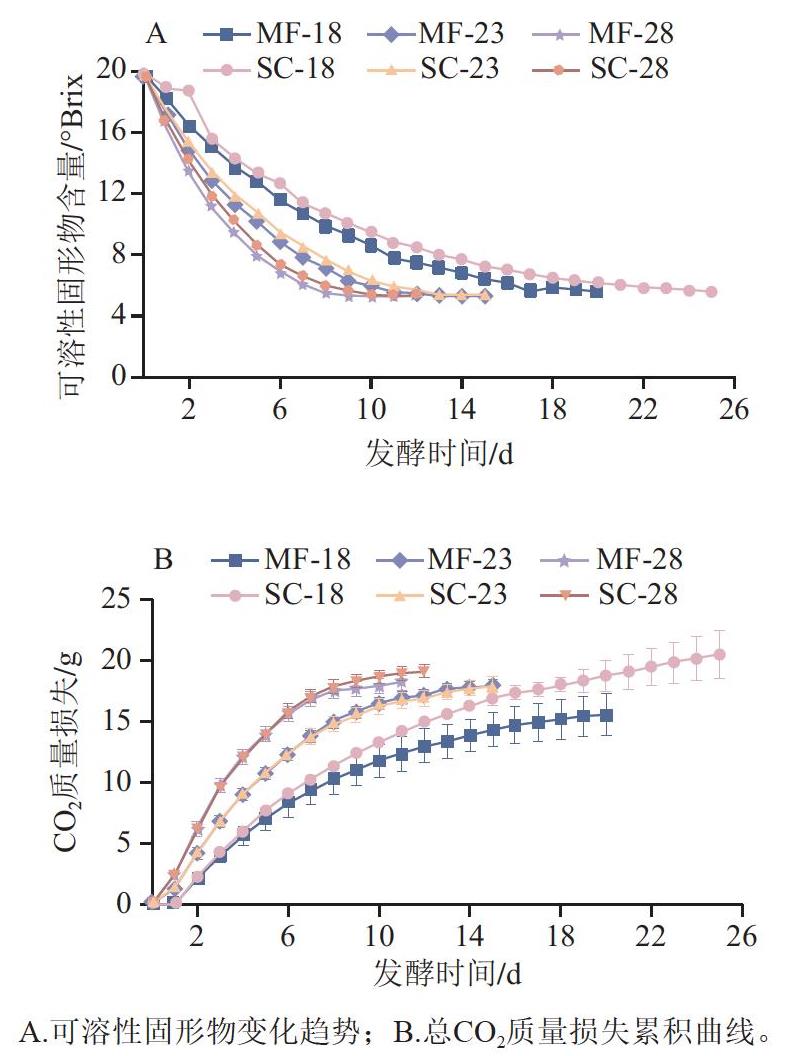
图1 单菌与混菌发酵动力学
Fig.1 Fermentation kinetics of pure- and mixed-culture fermentations
发酵温度可显著改变混菌体系发酵速率,如果统一固定发酵时长进行取样检测,各组微生物增殖进程、代谢物积累程度将存在时间尺度偏差,降低组间对比的科学性。本研究以发酵终点而非同一发酵时间点作为比较基准,旨在确保各组均完成其完整的代谢周期,从而客观反映不同温度下成品酒的真实品质。该处理方式既避免了因发酵速率不同所致的发酵阶段偏差,也符合工业化果酒生产按批次终点判定成品质量的实际工艺逻辑。
2.1.2 苹果酒发酵过程中微生物生长动力学特征
如图2所示,在单菌发酵组中,SC-23组和SC-28组酿酒酵母生物量于发酵1 d即达到峰值水平,均为7.95(lg(CFU/mL)),并始终维持较高水平;而在18 ℃条件下(SC-18组),酿酒酵母生长速率减缓,至发酵3 d才达到最大生物量,为7.99(lg(CFU/mL)),表明低温虽延缓生长进程,但未显著影响其最终生物量。在混菌发酵体系中,胶红酵母在混菌体系中呈现典型的种间竞争生长特征:接种后发酵1 d,生物量达到高峰,随后迅速衰减,直至无法检出,该趋势生长动态与已有文献报道[18]相符。发酵过程中,乙醇、有机酸不断累积,pH值持续下降、营养底物逐渐耗竭,多重环境胁迫共同削弱胶红酵母细胞耐受能力,最终造成菌体衰亡[19]。值得注意的是,胶红酵母在发酵体系中的存活时间随温度升高而缩短:在MF-18和MF-23组中可持续至发酵3 d,而在MF-28组中发酵2 d即完全消失。这一差异提示,低温条件可能减弱酿酒酵母的生长竞争优势,有效延长胶红酵母在发酵体系中的存续时间。
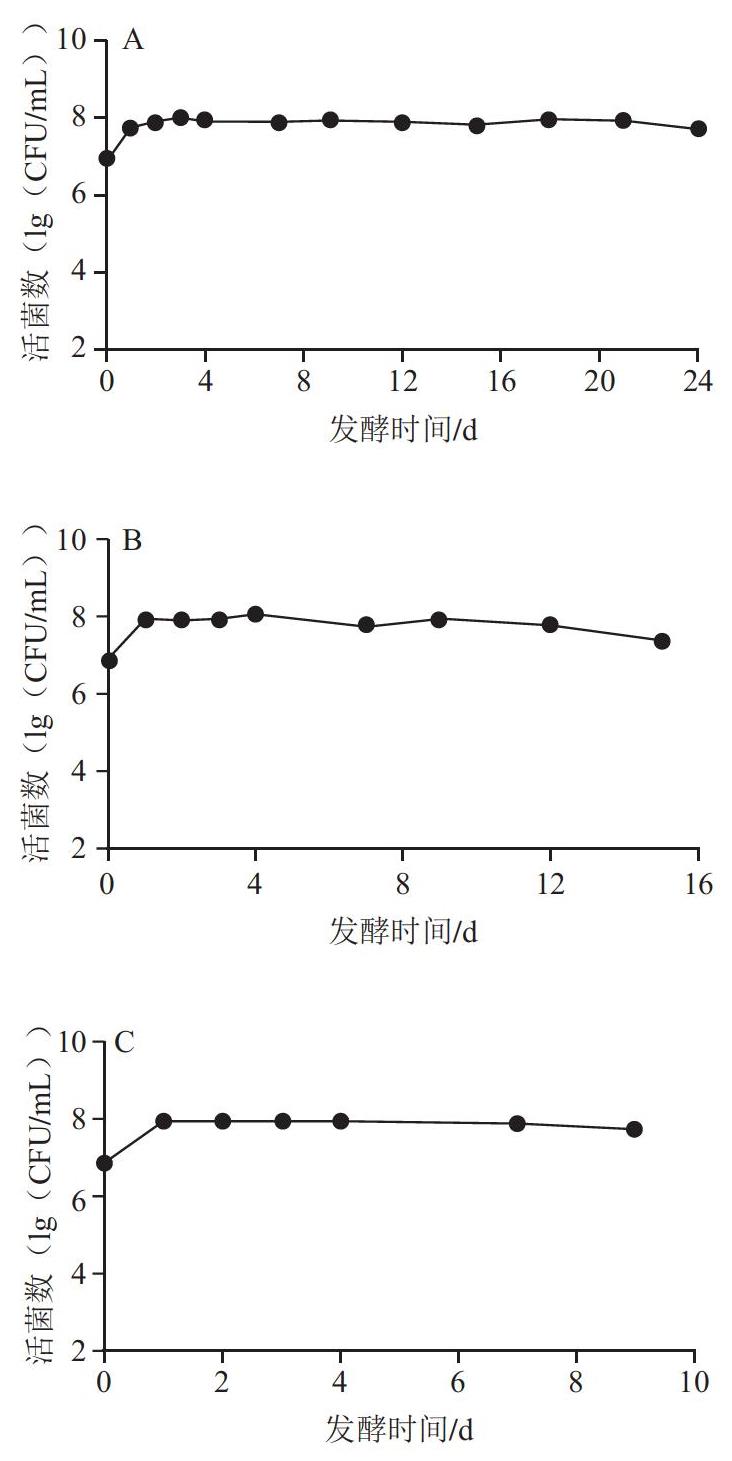
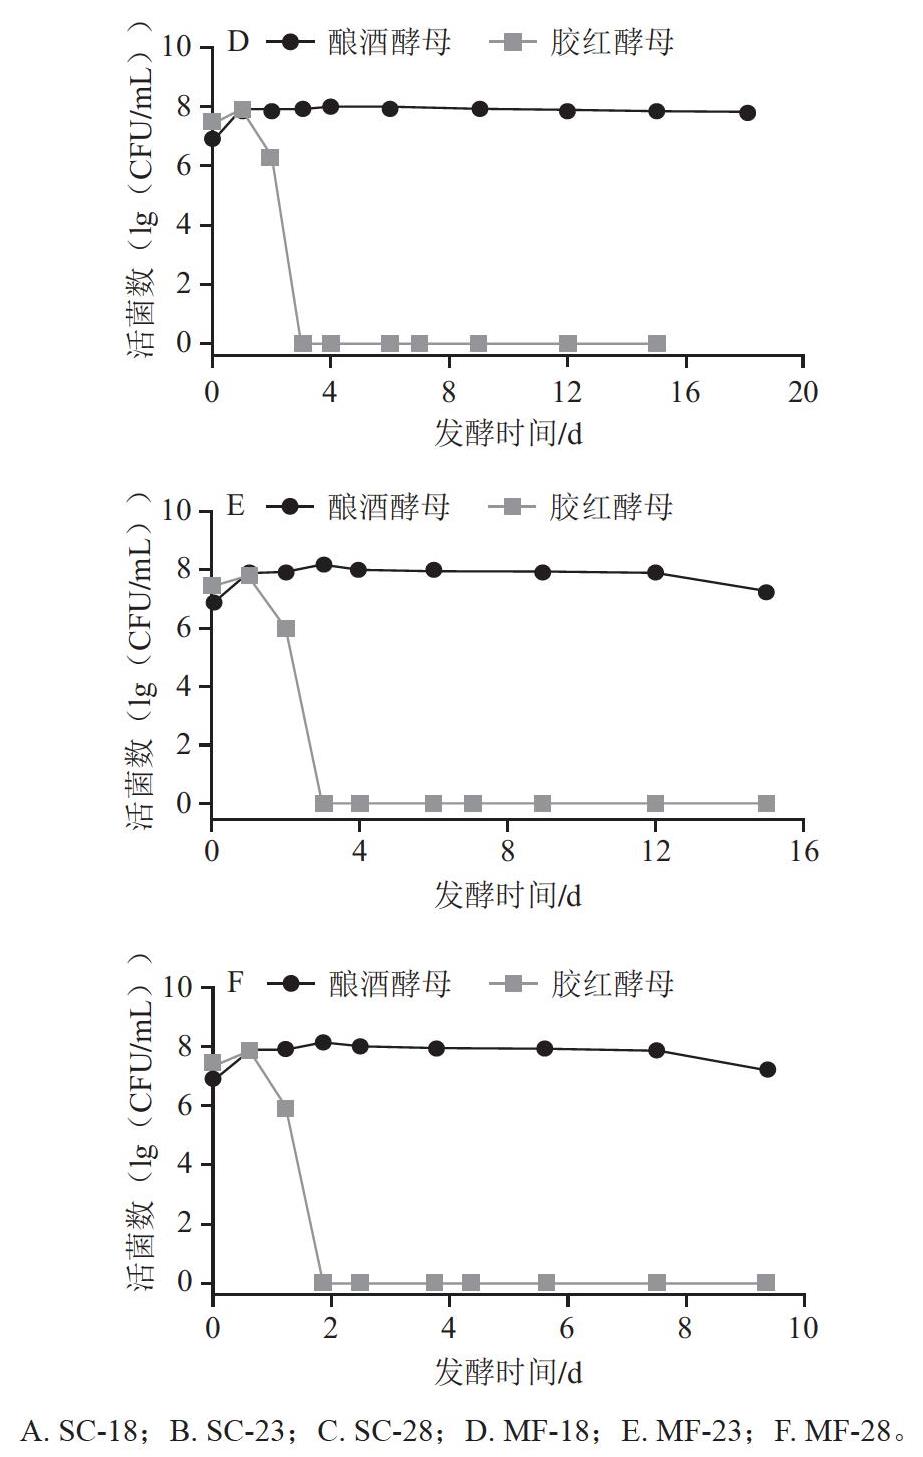
图2 不同发酵体系中酵母活菌数动态变化
Fig.2 Dynamic changes in viable yeast counts in different fermentation systems
2.2 苹果汁和苹果酒理化性质
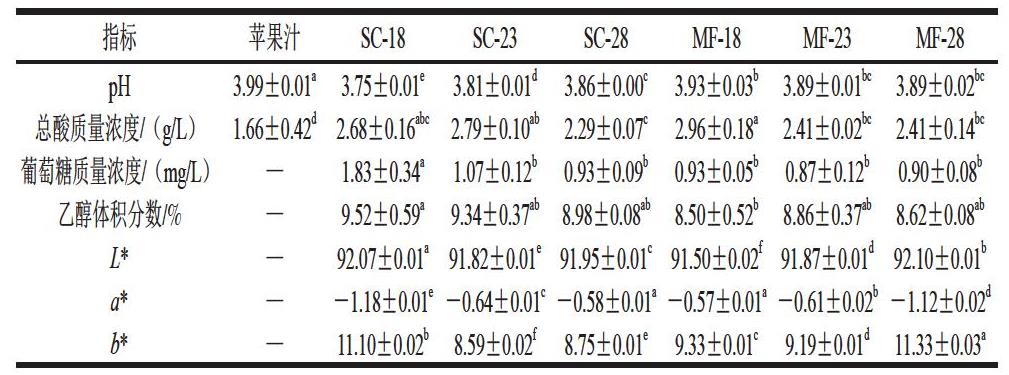
如表1所示,发酵后果酒pH值较苹果汁显著降低(P< 0.05),但在相同温度下,混菌发酵组pH值均显著高于酿酒酵母单菌发酵组(P<0.05)。与此同时,苹果酒总酸含量均显著高于苹果汁(P<0.05),其中MF-18组苹果酒总酸含量最高(2.96 g/L),随着温度升高,总酸含量下降,说明通过调控温度可改变苹果酒总酸含量。发酵完成后,各组苹果酒葡萄糖质量浓度均低于1.83 mg/L, 表明在不同温度下发酵进程均能够顺利完成。其中,混菌发酵组葡萄糖含量均低于对应的单菌发酵组,表明混菌发酵能更好地利用葡萄糖完成发酵。
表1 苹果汁和苹果酒的理化指标
Table1 Physicochemical parameters of apple juice and ciders
指标苹果汁SC-18SC-23SC-28MF-18MF-23MF-28pH3.99±0.01a3.75±0.01e3.81±0.01d3.86±0.00c3.93±0.03b3.89±0.01bc3.89±0.02bc总酸质量浓度/(g/L)1.66±0.42d2.68±0.16abc2.79±0.10ab2.29±0.07c2.96±0.18a2.41±0.02bc2.41±0.14bc葡萄糖质量浓度/(mg/L)—1.83±0.34a1.07±0.12b0.93±0.09b0.93±0.05b0.87±0.12b0.90±0.08b乙醇体积分数/%—9.52±0.59a9.34±0.37ab8.98±0.08ab8.50±0.52b8.86±0.37ab8.62±0.08abL*—92.07±0.01a91.82±0.01e91.95±0.01c91.50±0.02f91.87±0.01d92.10±0.01ba*—-1.18±0.01e-0.64±0.01c-0.58±0.01a-0.57±0.01a-0.61±0.02b-1.12±0.02db*—11.10±0.02b8.59±0.02f8.75±0.01e9.33±0.01c9.19±0.01d11.33±0.03a
注:同行小写字母不同表示差异显著(P<0.05);—.未检出。下同。
在乙醇体积分数方面,单菌发酵组苹果酒在18、23、28 ℃下的乙醇体积分数分别为9.52%、9.34%和8.98%,而相应温度下混菌发酵组苹果酒乙醇体积分数略低,分别为8.50%、8.86%和8.62%。色度是影响果酒视觉品质与消费者接受度的重要指标[20]。各组苹果酒L*值介于91.50~92.10之间,其中以SC-18组苹果酒L*值最高,酒体最为透亮。a*值表征苹果酒红绿色相偏移程度,数值越高,酒体红色调越突出,琥珀色或砖红色泽越明显,成熟及氧化特征更为鲜明。单菌发酵组苹果酒a*值随发酵温度升高而呈上升趋势,酒体色泽逐渐向红色偏移。相比之下,混菌发酵组(MF-18)的a*值在所有处理中最高,其呈现的红色调更为突出,更符合消费者的视觉偏好。b*值表征苹果酒黄-蓝色相偏移程度,数值越高,酒体金黄色或琥珀色调越浓郁,成熟感更强。MF-28组苹果酒b*值显著高于其他组(P<0.05),呈现更深的琥珀色泽,更符合典型苹果酒的预期外观特征。
2.3 苹果汁和苹果酒有机酸含量
有机酸是果酒的关键组分,在维持酒体稳定性和氧化还原平衡方面发挥着重要作用,同时对果酒风味、口感等感官特性具有决定性影响。如图3所示,苹果酒总有机酸含量均显著高于苹果汁(P<0.05),主要表现为酒石酸、乳酸与琥珀酸含量上升。其中,MF-28组苹果酒总有机酸质量浓度最高,达(4 529.69±56.33)mg/L。发酵温度对酒石酸积累具有显著影响,18 ℃条件下酿造苹果酒中的酒石酸含量最低。苹果酸含量过高会造成果酒口感粗糙、酸涩感强烈[21-22]。发酵后果酒中苹果酸含量较苹果汁降低24%以上,表明酵母代谢可有效弱化苹果酸带来的不良感官刺激。乳酸作为改善口感圆润度的重要有机酸,为无氧条件下葡萄糖糖酵解的代谢产物[23],在各苹果酒中的含量均显著高于苹果汁(P<0.05)。其中,MF-28苹果酒乳酸质量浓度最高,达(2 029.48±27.43)mg/L,提示该发酵条件有利于乳酸积累。琥珀酸除基础酸味外,还会带来咸味和苦味感官特征[24],低含量琥珀酸可提高果酒口感品质。发酵后,各组苹果酒琥珀酸含量均有所上升,混菌发酵苹果酒琥珀酸含量随温度升高呈梯度递增趋势。柠檬酸与琥珀酸积累呈现相反趋势:SC-23组与MF-18组苹果酒中的柠檬酸含量较高,而SC-28组与MF-28组较低;与之对应,MF-28苹果酒中琥珀酸含量最高,SC-18、SC-23、MF-18组则较低。该结果可能与酵母细胞内柠檬酸代谢途径有关:柠檬酸可在顺乌头酸酶与异柠檬酸裂解酶催化作用下转化为琥珀酸与乙醛[25]。发酵温度与菌种互作可能影响了该途径的代谢通量,从而造成两类有机酸积累差异。综上所述,MF-28苹果酒乳酸含量最高、乙酸含量较低,有机酸含量最为平衡,有利于强化苹果的馥郁风味,更带来清晰的结构感和丰富的层次变化。
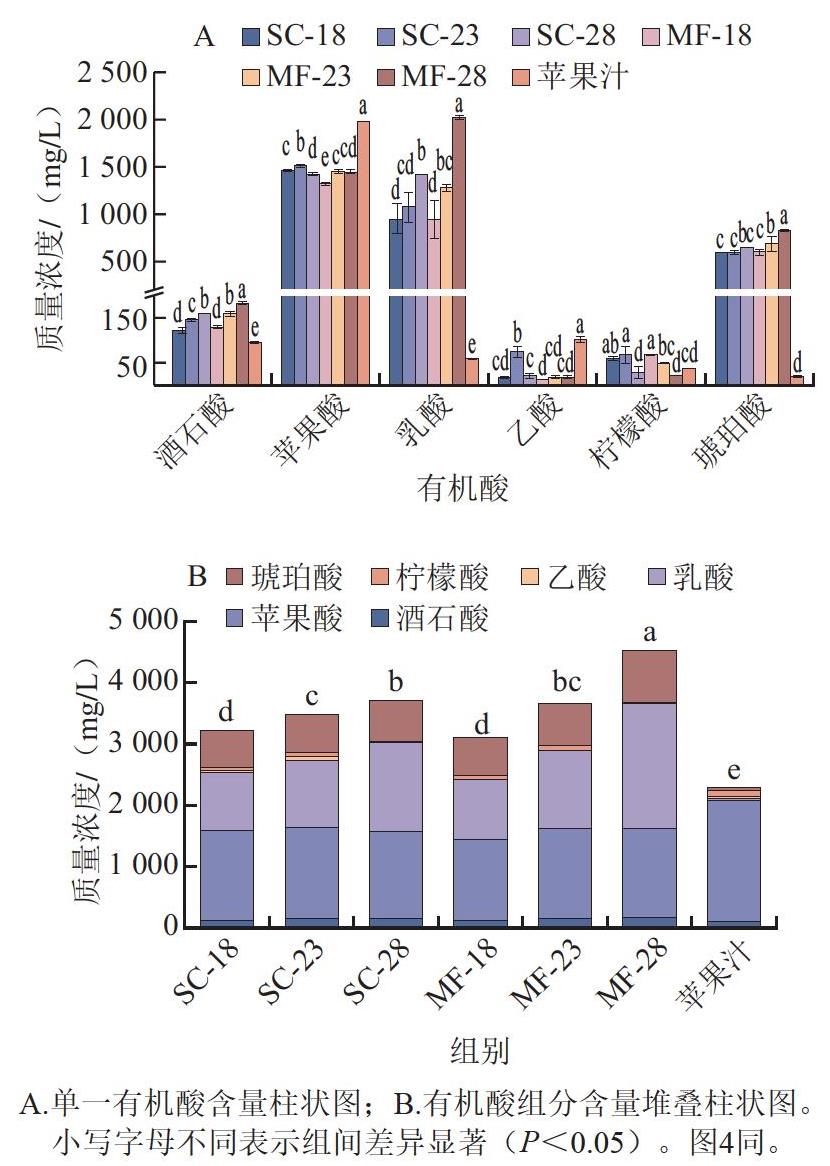
图3 苹果汁和苹果酒有机酸含量变化
Fig.3 Variations in organic acid contents of apple juice and cider
2.4 苹果汁和苹果酒总酚、总黄酮、抗坏血酸含量及抗氧化活性
总酚、总黄酮和抗坏血酸含量对果酒的色、香、味及抗氧化活性均具有重要影响[26]。如图4A所示,发酵后,苹果酒总黄酮质量浓度较苹果汁((0.110±0.001)g/L)显著下降(P<0.05),可能与发酵过程中类黄酮类物质的降解或转化有关。如图4B所示,总酚含量在发酵后几乎均显著上升(P<0.05),其中MF-28苹果酒总酚质量浓度最高,为(89.88±0.30)mg/L,SC-28次之,为(86.85±5.43)mg/L,说明较高温度下混菌发酵体系更利于酚类物质的溶出,或促进酵母代谢合成酚类物质。如图4C所示,抗坏血酸含量在发酵后也显著提升(P< 0.05),苹果汁抗坏血酸质量浓度为(14.50±0.11)mg/L, 而苹果酒中达24.7~26.7 mg/L,增幅超过65%,推测与发酵过程中相关还原态物质的生成或抗坏血酸前体的转化有关。
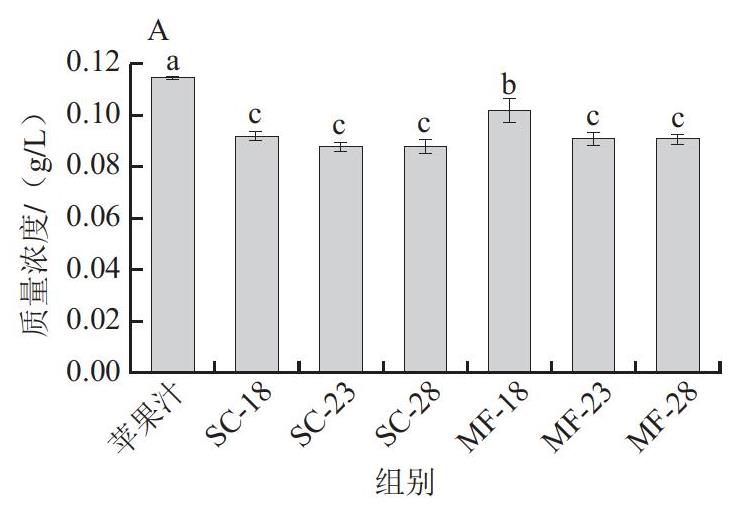
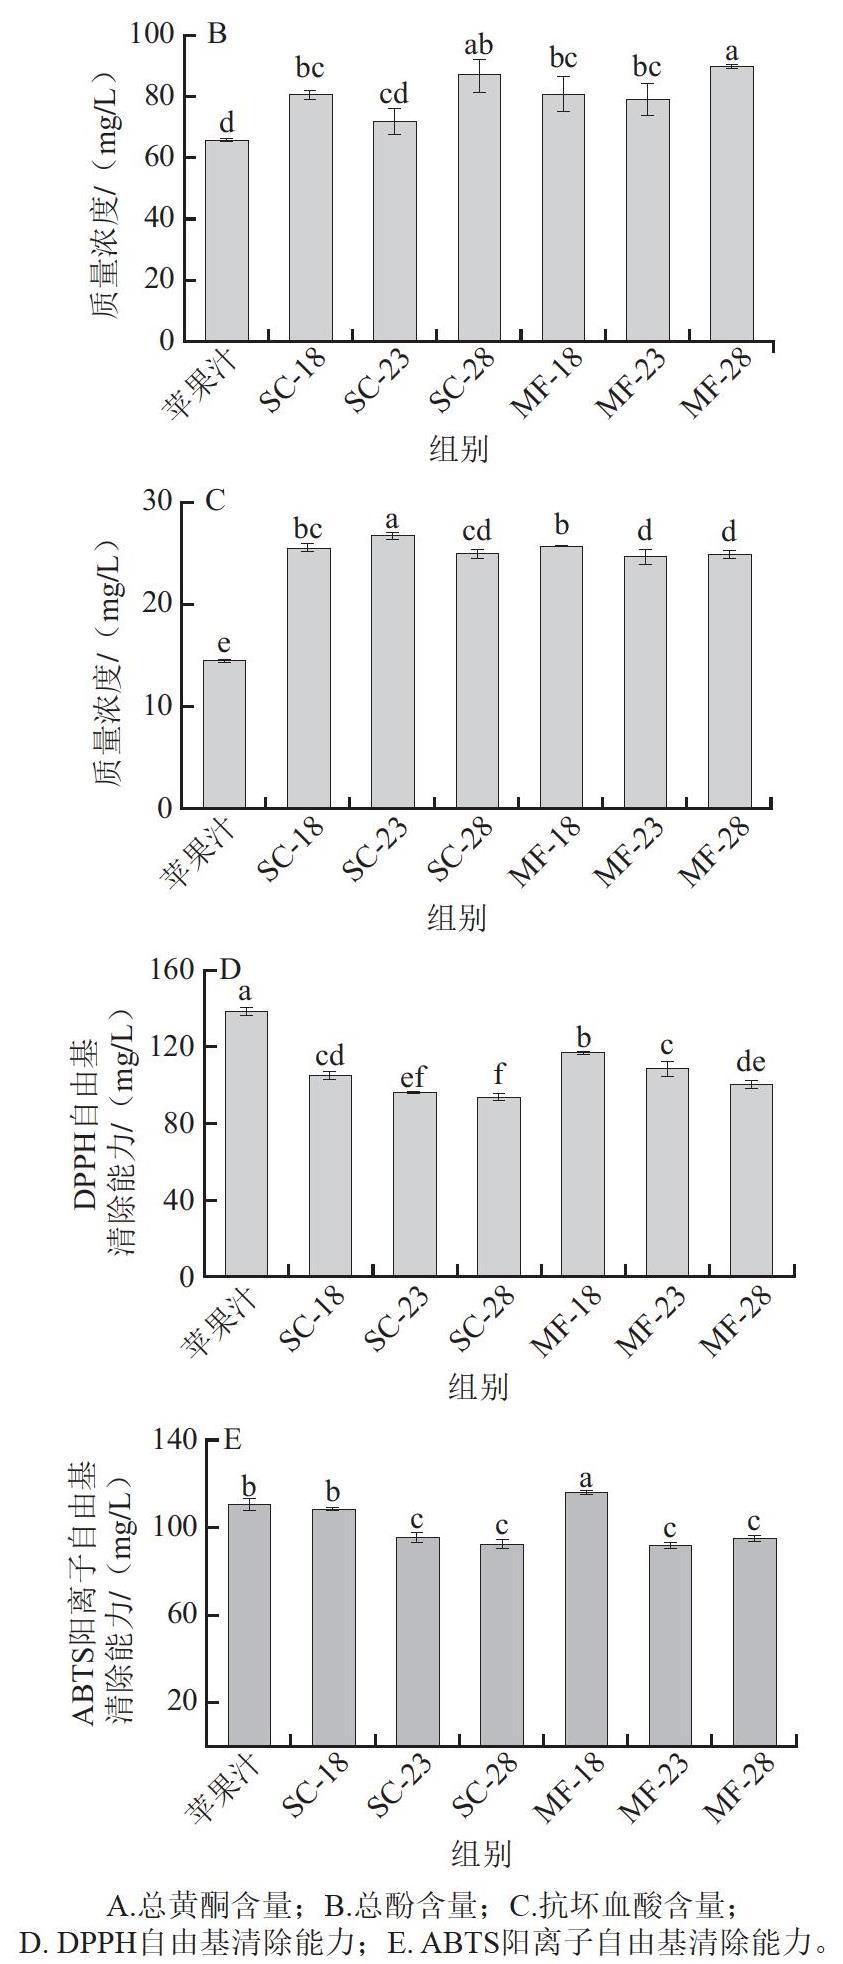
图4 苹果汁和苹果酒总黄酮、总酚、抗坏血酸含量和抗氧化活性
Fig.4 Total flavonoid content, total phenolic content, ascorbic acid content and antioxidant activities of apple juice and cider
酒体抗氧化能力可综合反映体系抗氧化剂和抗氧化酶的总体水平,与果酒中的各类生物活性组分含量密切相关[27]。这些活性物质既可阻断自由基生成的起始过程、中断自由基链式传递以清除已有自由基,也能通过螯合金属离子、还原过氧化氢、猝灭超氧阴离子自由基与单线态氧等途径,从源头抑制自由基产生[28]。如图4D所示,苹果汁DPPH自由基清除能力最强,达(138.45±2.45)mg/L,发酵后苹果酒DPPH自由基清除能力显著下降(P<0.05),且在单菌及混菌体系中均随发酵温度升高而逐步降低。同一温度下,混菌发酵苹果酒DPPH自由基清除能力显著高于单菌发酵酒样(P<0.05),提示胶红酵母的参与可能有助于保留部分抗氧化成分。如图4E所示,MF-18组苹果酒ABTS阳离子自由基清除能力最佳,达(116.06± 0.81)mg/L,其次为苹果汁与SC-18组苹果酒,分别为(110.67±2.76)mg/L和(108.61±0.48)mg/L, 说明低温发酵有利于维持或增强发酵体系的抗氧化能力。
综上,发酵过程可显著影响苹果酒活性组分含量与抗氧化活性,其中低温发酵(尤其是18 ℃)在保留与提升苹果酒抗氧化活性方面表现出明显优势,这可能与其减缓酚类与维生素等活性成分降解、调控酵母代谢流方向有关。
2.5 苹果汁和苹果酒挥发性香气成分
2.5.1 GC-IMS分析结果
GC-IMS技术兼具GC的高分离能力与IMS的快速响应特性,适用于C3~C10挥发性化合物检测。如图5所示,从苹果汁和苹果酒中共鉴定出47种VOCs,涵盖醇类(7种)、酯类(13种)、醛类(5种)、酮类(9种)、酸类(1种)及其他物质(12种)。
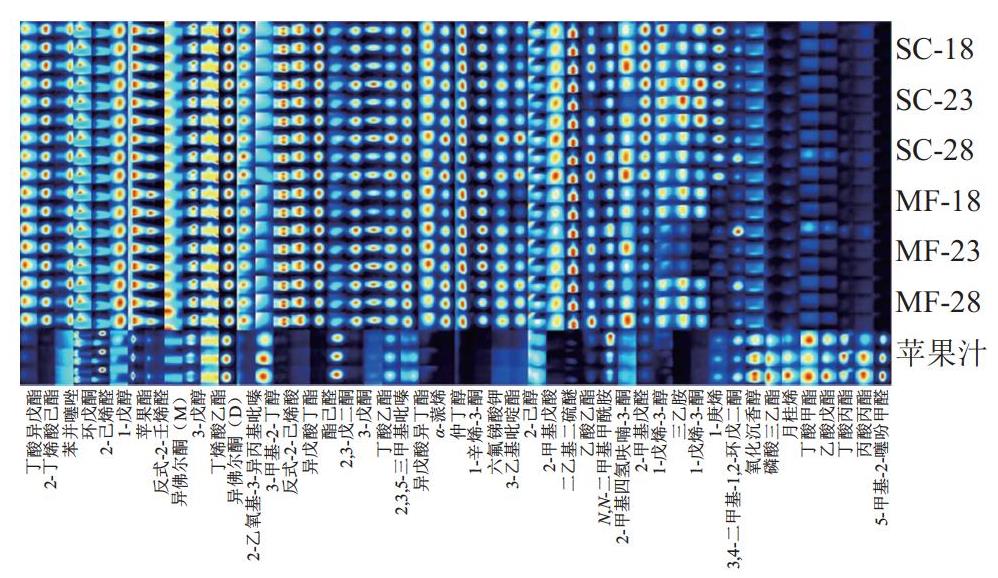
图5 苹果汁和苹果酒VOCs GC-IMS指纹图谱
Fig.5 gas chromatography-ion mobility spectrometry fingerprint profiles of volatile organic compounds in apple juice and cider
苹果汁中特征性VOCs主要包括丙酸丙酯(果香)、丁酸丙酯(果香与甜香)、乙酸戊酯(熟梨香气)、月桂烯(清淡香脂气息)及2,3-戊二酮(奶油与焦糖风味)等,与文献[29-31]研究结果相同,这些物质共同构成苹果汁典型的新鲜果香与甜香基调。发酵后,苹果酒中VOCs组成发生显著改变,普遍检出高含量1-戊醇(源于苹果酸代谢,增强醇香感[32])、乙酸乙酯(水果香气)、异戊酸丁酯(香蕉香气)、苹果酯(苹果香气)及1-辛烯-3-酮(蘑菇气息[29,33-34]),表明酵母代谢可有效重塑苹果酒整体香气轮廓。值得注意的是,随着发酵温度升高,仲丁醇含量相应增加,可能为酒体带来更为突出的酒香特征[35]。此外,在混菌发酵苹果酒中,丁酸异戊酯(强烈的香蕉与洋梨香气)含量普遍高于单菌发酵组,提示胶红酵母的参与可能促进了该类酯类的合成或积累[29]。综上,发酵过程显著改变了苹果酒挥发性组分的构成与比例,发酵温度与菌种类型均为影响苹果酒香气特征的关键因素,其中混菌发酵在提升部分果香酯类含量方面表现出一定优势。
2.5.2 GC-MS分析结果
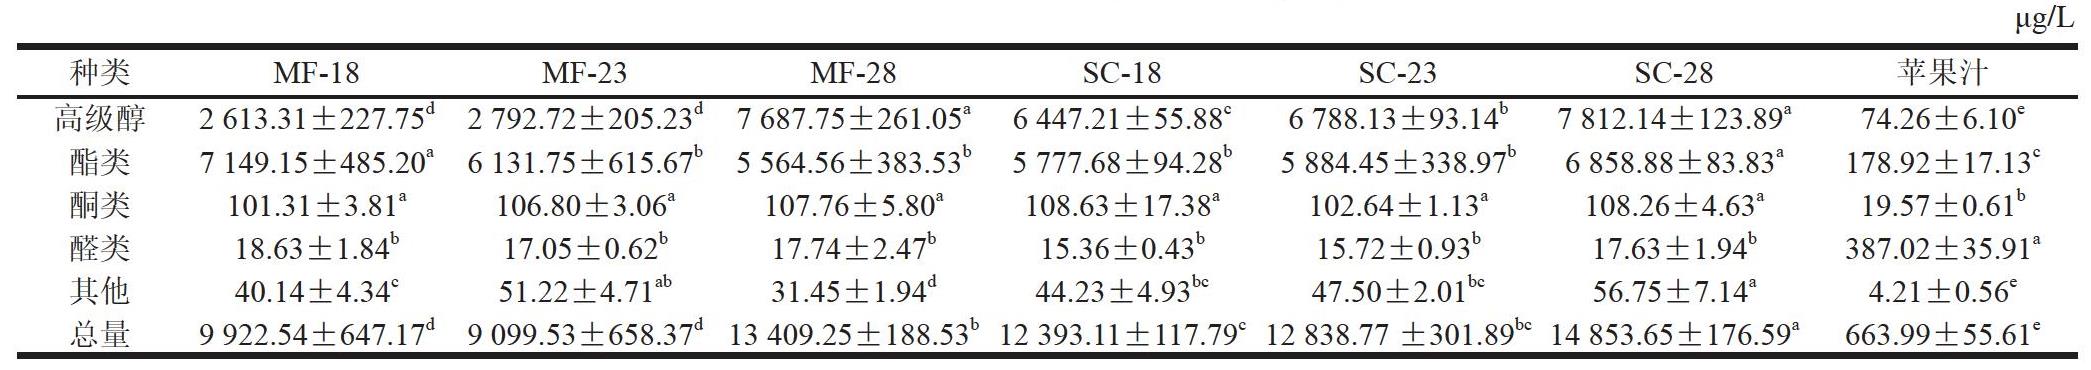
鉴于GC-IMS法仅能有效检测C3~C10挥发性香气物质,进一步采用GC-MS法对发酵苹果酒中C8~C26挥发性组分进行相对定量分析,以实现对酒体香气成分的广谱全覆盖检测。GC-MS从苹果汁和苹果酒中共鉴定出40种VOCs,包括酯类(16种)、醇类(8种)、酮类(4种)、醛类(5种)及其他类别(7种)。如表2所示,相较于苹果汁(663.99 μg/L),所有苹果酒样品的VOCs总量均显著增至12倍以上(P<0.05),其中SC-28组苹果酒最高(14 853.65 μg/L),MF-28组次之(13 409.25 μg/L),表明发酵对香气物质积累具有显著的促进作用。各类VOCs中,醇类和酯类是构成苹果酒香气轮廓的主要组分。高级醇总量以SC-28组(7 812.14 μg/L)和MF-28组(7 687.75 μg/L)最高,MF18组最低,说明降低发酵温度会抑制该类物质的生成。高级醇不仅提供丰富的香气层次,也有助于提升酒体的饱满度和口感顺滑性[36]。酯类物质中,MF-18组苹果酒总量最高(7 149.15 μg/L),SC-28组次之(6 858.88 μg/L),且均以乙酯占比最高,其质量浓度分别为6 476.47、6 061.93 μg/L)。SC-28组苹果酒中较高的高级醇与乙酯含量可能与28 ℃条件下酿酒酵母代谢活性较强有关。另外,辛酸仅在MF-18、SC-18、SC-23组苹果酒中检出,其形成可能与酵母的脂质氧化代谢途径相关[37]。已有研究表明,较低发酵温度可促进酿酒酵母合成更多的中链脂肪酸[32],这为通过调控发酵温度定向改变酒体香气组分提供代谢理论支撑。
如图6所示,MF-28组与SC-28组苹果酒挥发性组成较为相似,MF-18组和MF-23组亦聚为一类。MF-28组苯乙醇、2,3-丁二醇、壬醛、癸酸乙酯等物质含量较高,共同赋予其蜂蜜、果香与醇类香气[34,38];SC-18组则因富含辛酸、月桂酸乙酯、仲辛酮及(+)-柠檬烯等,表现出橙脂、梨、木质及柑橘类香气特征[34,39]。综上,发酵温度与菌种类型共同调控苹果酒挥发性物质的合成与组成:较高的发酵温度(28 ℃)有利于提升VOCs总量,尤其是高级醇和乙酯的积累;而低温混菌发酵则可能促进特定酯类及中链脂肪酸的形成,进而差异化地影响最终产品的香气风格。
表2 苹果汁和苹果酒中各组分含量
Table2 Concentrations of various components in apple juice and cider
μg/L种类MF-18MF-23MF-28SC-18SC-23SC-28苹果汁高级醇2 613.31±227.75d2 792.72±205.23d7 687.75±261.05a6 447.21±55.88c6 788.13±93.14b7 812.14±123.89a74.26±6.10e酯类7 149.15±485.20a6 131.75±615.67b5 564.56±383.53b5 777.68±94.28b5 884.45±338.97b6 858.88±83.83a178.92±17.13c酮类101.31±3.81a106.80±3.06a107.76±5.80a108.63±17.38a102.64±1.13a108.26±4.63a19.57±0.61b醛类18.63±1.84b17.05±0.62b17.74±2.47b15.36±0.43b15.72±0.93b17.63±1.94b387.02±35.91a其他40.14±4.34c51.22±4.71ab31.45±1.94d44.23±4.93bc47.50±2.01bc56.75±7.14a4.21±0.56e总量9 922.54±647.17d9 099.53±658.37d13 409.25±188.53b12 393.11±117.79c12 838.77 ±301.89bc14 853.65±176.59a663.99±55.61e
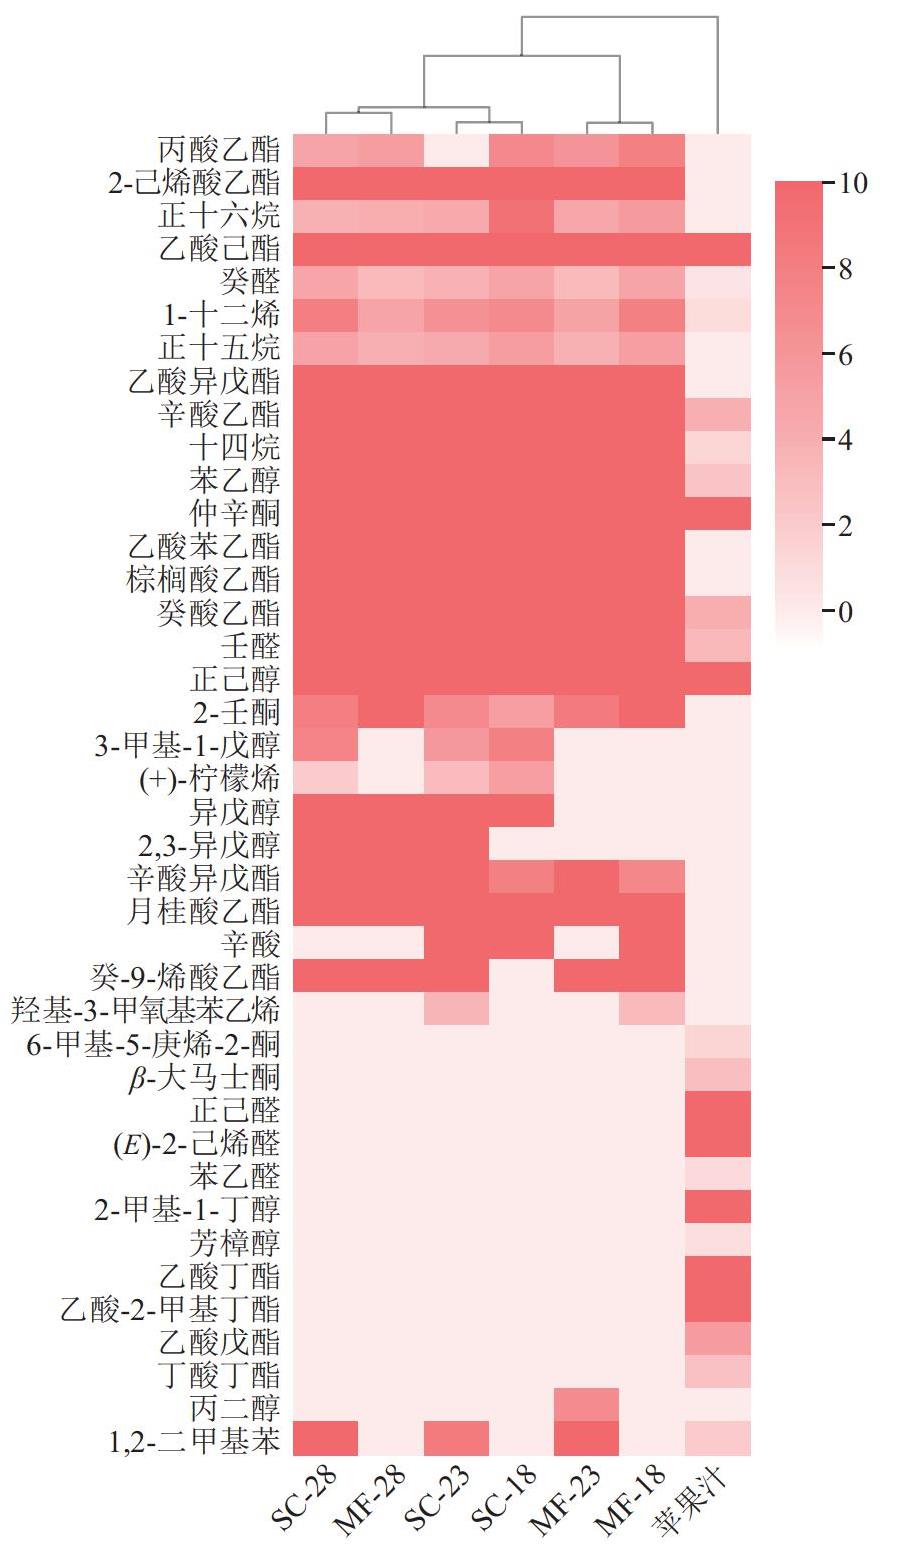
图6 GC-MS测定苹果汁和苹果酒VOCs的层次聚类热图
Fig.6 Hierarchical clustering heatmap of volatile organic compounds in apple juice and cider determined by gas chromatography-mass spectrometry
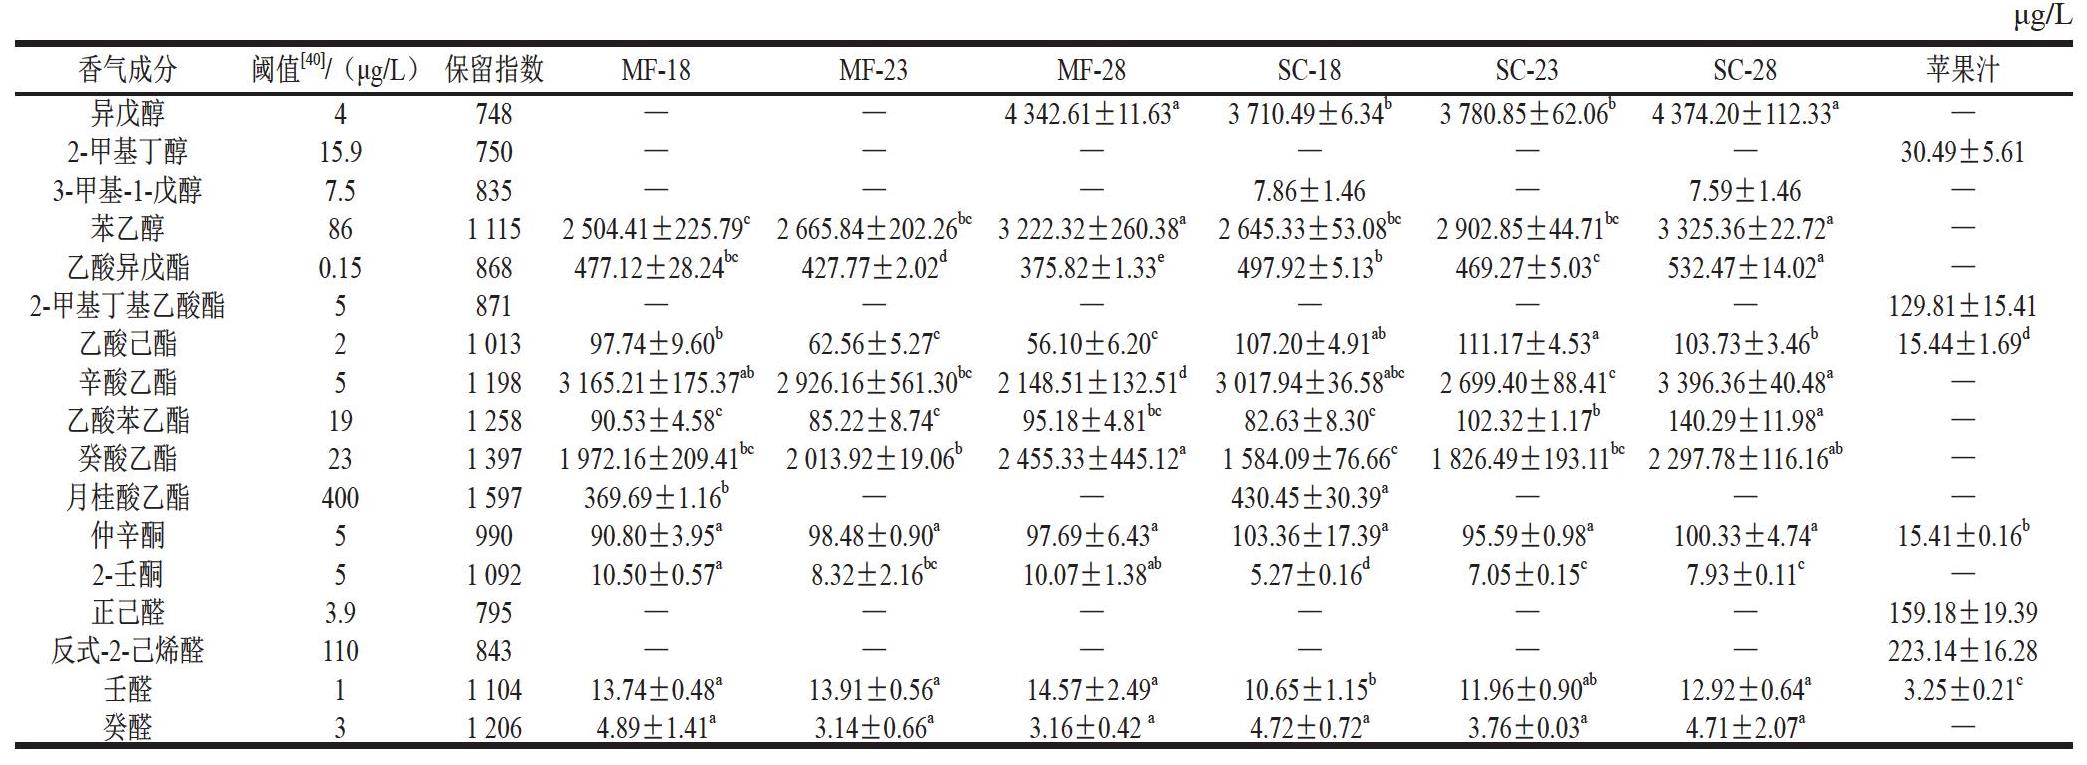
如表3所示,将相对香气活度值(relative aroma activity value,ROAV)>1的17种挥发性化合物认定为关键香气物质。苹果汁中鉴定出7种关键香气物质,而苹果酒中的种类更为丰富,其中SC-28组检出12种,SC-18组检出13种,SC-23组、MF-28组、MF-18组检出11种,MF-23组检出10种。值得关注的是,2-甲基丁醇、2-甲基丁基乙酸酯、正己醛和反式-2-己烯醛为苹果汁所独有,这些物质可能与其新鲜、青草般的香气特征相关;而异戊醇、乙酸异戊酯、乙酸苯乙酯、月桂酸乙酯等化合物仅在发酵后的苹果酒中检测到,它们构成苹果酒与苹果汁之间香气轮廓的本质差异。发酵温度显著影响关键香气物质的积累。SC-28组和MF-28组苹果酒中异戊醇与苯乙醇含量显著高于其他组(P<0.05),这两种物质对增强酒体香气复杂性与品质具有重要作用。癸酸乙酯在MF-28组含量最高,并随发酵温度降低而递减;与之相反,月桂酸乙酯仅在SC-18组检出,发酵温度升高后,该物质均未检出。这表明温度可能通过调控酵母代谢途径的选择性,差异化地影响酯类合成,进而塑造不同的香气特征。值得注意的是,异戊醇属于典型发酵产物,由酿酒酵母经Ehrlich途径代谢亮氨酸生成。单菌发酵体系中,其含量随温度升高而递增。混菌发酵体系中仅28 ℃发酵苹果酒检出异戊醇,18 ℃和23 ℃时未检出,可能因低温下胶红酵母与酿酒酵母竞争亮氨酸底物,同时Ehrlich途径代谢活性受抑;28 ℃能够平衡菌株竞争并激活酿酒酵母代谢优势,促成异戊醇积累。3-甲基-1-戊醇仅在酿酒酵母发酵苹果酒中检出,混菌体系中未检出,可能与胶红酵母的竞争性生长干扰酿酒酵母相关代谢通路有关,进一步印证菌群互作对风味代谢流的调控作用。
基于ROAV>1的关键香气物质进行PCA,进一步揭示香气组成模式差异。由图7可知,PC1方差贡献率为71.5%,PC2方差贡献率为13.8%,累计方差贡献率达到85.3%,能够较好地代表原始关键香气物质的大部分信息,可用于区分各组样品香气特征。苹果汁样品集中分布在PC1负半轴,其香气特征以新鲜青草味为主导。单菌发酵酒样聚集于第1象限,其香气属性主要来源于月桂酸乙酯、异戊醇和乙酸异戊酯等物质贡献的果香与酒香,以及由3-甲基-1-戊醇和癸醛带来的青草气息[41-42]。相比之下,混菌发酵酒样则分布于第4象限,其特征香气物质如乙酸苯乙酯、苯乙醇、仲辛酮、壬醛和癸酸乙酯等,共同赋予酒体玫瑰、木质及成熟水果的复合香气轮廓。综上所述,发酵过程不仅能够丰富关键香气物质的组成与数量,同时菌种类型与发酵温度可协同调控其特征化合物的积累:单菌发酵体系更易形成以醇类及短链酯类为主导,兼具青草调的酒体香气;而混菌发酵则进一步促进苯乙醇酯类及中长链酯的合成,赋予酒体更突出的花香与复杂果香。综上,通过针对性地调控发酵温度与菌株,能够有效引导苹果酒香气风格的形成方向
表3 苹果汁和苹果酒中ROAV>1的VOCs含量
Table3 Contents of volatile organic compounds with relative odor activity value > 1 in apple juice and cider
μg/L香气成分阈值[40]/(μg/L)保留指数MF-18MF-23MF-28SC-18SC-23SC-28苹果汁异戊醇4748——4 342.61±11.63a3 710.49±6.34b3 780.85±62.06b4 374.20±112.33a—2-甲基丁醇15.9750——————30.49±5.613-甲基-1-戊醇7.5835———7.86±1.46—7.59±1.46—苯乙醇861 1152 504.41±225.79c2 665.84±202.26bc3 222.32±260.38a2 645.33±53.08bc2 902.85±44.71bc3 325.36±22.72a—乙酸异戊酯0.15868477.12±28.24bc427.77±2.02d375.82±1.33e497.92±5.13b469.27±5.03c532.47±14.02a—2-甲基丁基乙酸酯5871——————129.81±15.41乙酸己酯21 01397.74±9.60b62.56±5.27c56.10±6.20c107.20±4.91ab111.17±4.53a103.73±3.46b15.44±1.69d辛酸乙酯51 1983 165.21±175.37ab2 926.16±561.30bc2 148.51±132.51d3 017.94±36.58abc2 699.40±88.41c3 396.36±40.48a—乙酸苯乙酯191 25890.53±4.58c85.22±8.74c95.18±4.81bc82.63±8.30c102.32±1.17b140.29±11.98a—癸酸乙酯231 3971 972.16±209.41bc2 013.92±19.06b2 455.33±445.12a1 584.09±76.66c1 826.49±193.11bc2 297.78±116.16ab—月桂酸乙酯4001 597369.69±1.16b——430.45±30.39a———仲辛酮599090.80±3.95a98.48±0.90a97.69±6.43a103.36±17.39a95.59±0.98a100.33±4.74a15.41±0.16b2-壬酮51 09210.50±0.57a8.32±2.16bc10.07±1.38ab5.27±0.16d7.05±0.15c7.93±0.11c—正己醛3.9795——————159.18±19.39反式-2-己烯醛110843——————223.14±16.28壬醛11 10413.74±0.48a13.91±0.56a14.57±2.49a10.65±1.15b11.96±0.90ab12.92±0.64a3.25±0.21c癸醛31 2064.89±1.41a3.14±0.66a3.16±0.42 a4.72±0.72a3.76±0.03a4.71±2.07a—
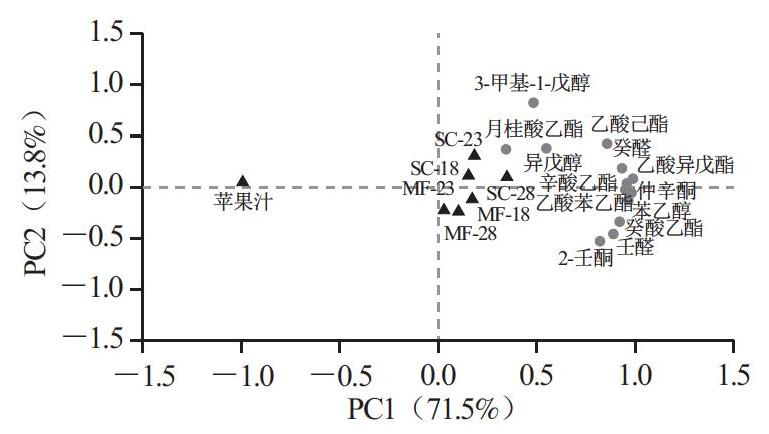
图7 苹果汁和苹果酒中ROAV>1的VOCs的PCA双标图
Fig.7 Principal component analysis biplot for volatile organic compounds with relative odor activity value > 1 in apple juice and cider
2.6 苹果汁和苹果酒感官评价
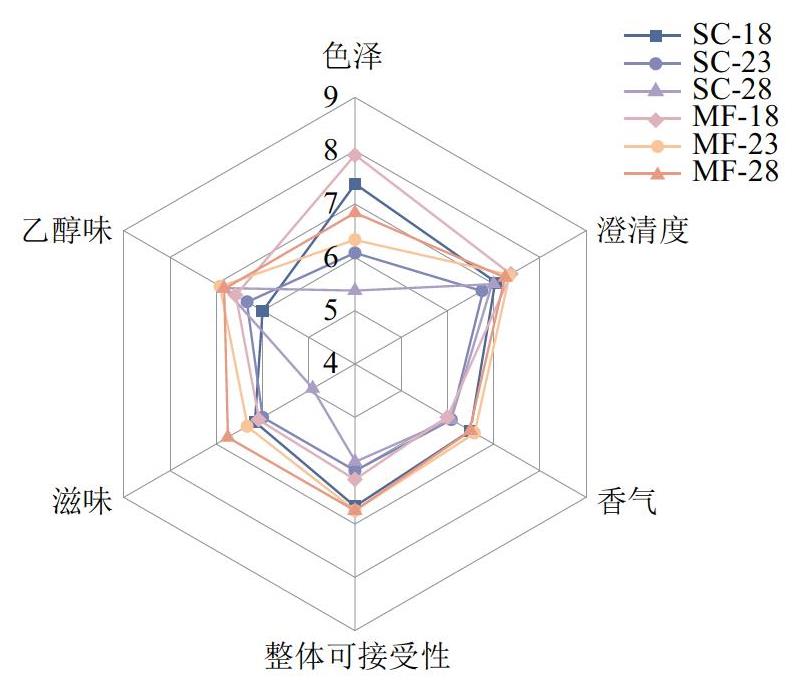
图8 不同发酵温度下苹果酒感官评分雷达图
Fig.8 Radar plot for sensory scores of ciders fermented at different temperatures
如图8所示,在澄清度方面,MF-18组与MF-23组苹果酒得分最高,其次为MF-28组,三者均高于酿酒酵母单菌发酵组。色泽评分以MF-18组最高,SC-18组次之,SC-28组最低,说明较低发酵温度有助于更好地保持苹果酒的色泽稳定性。在香气与整体可接受性上,MF-23组与MF-28组苹果酒得分最高。此外,MF-28组在滋味方面也表现最佳,这可能与其较高的乳酸含量有关。已有研究表明,乳酸对果酒口感的圆润度具有积极影响。因此,MF-28组苹果酒在多项感官指标中均表现最优,表明28 ℃是胶红酵母与酿酒酵母混合发酵的适宜温度,该条件有利于保持良好澄清度与色泽,并能够提升酒体的香气复杂性与口感接受度。
3 结 论
本研究系统评估了不同温度下胶红酵母与酿酒酵母混菌发酵对苹果酒品质的影响。结果表明,降低发酵温度会明显延长发酵周期。相同温度下,混菌发酵酒样的DPPH自由基清除能力均显著高于单菌发酵组。28 ℃混菌发酵不仅能够显著提升苹果酒总酚含量,还能够优化有机酸组成(尤其是乳酸积累),同时促进高级醇等挥发性风味物质的生成,使苹果酒呈现出更为丰富的花香果香与平衡口感。感官评价结果进一步证实,28 ℃混菌发酵苹果酒在整体可接受性上表现最佳。综上,28 ℃混菌发酵工艺可作为一种有效策略,用于提升苹果酒的理化品质与风味复杂度,具备潜在的工业化应用价值。
[1] 宋廷洋. 瓦房店市苹果产业发展对策研究[D]. 大连: 大连海洋大学,2024. DOI:10.27821/d.cnki.gdlhy.2024.000572.
[2] 国家统计局. 国家数据[EB/OL]. (2026-01-10)[2026-01-14]. https://data.stats.gov.cn/dg/website/page.html#/pc/national/yearData.
[3] 杨子慧, 林琼. 吃苹果的学问[J]. 中国食品安全, 2025(增刊1):102-104.
[4] Chen Xiaodie, Lin Man, Hu Lujun, et al. Research on the effect of simultaneous and sequential fermentation with Saccharomyces cerevisiae and Lactobacillus plantarum on antioxidant activity and flavor of apple cider[J]. Fermentation, 2023, 9(2): 102. DOI:10.3390/fermentation9020102.
[5] Liu Peitong, Lu Lin, Duan Changqing, et al. The contribution of indigenous non-Saccharomyces wine yeast to improved aromatic quality of Cabernet Sauvignon wines by spontaneous fermentation[J].LWT-Food Science and Technology, 2016, 71: 356-363. DOI:10.1016/j.lwt.2016.04.031.
[6] Medina K, Boido E, Dellacassa E, et al. Growth of non-Saccharomyces yeasts affects nutrient availability for Saccharomyces cerevisiae during wine fermentation[J]. International Journal of Food Microbiology,2012, 157(2): 245-250. DOI:10.1016/j.ijfoodmicro.2012.05.012.
[7] 马娜, 王星晨, 孔彩琳, 等. 胶红酵母与酿酒酵母共发酵对干红葡萄酒香气与色泽的影响[J]. 食品科学, 2021, 42(2): 97-104.DOI:10.7506/spkx1002-6630-20191112-158.
[8] Wang Xingchen, Li Aihua, Dizy M, et al. Evaluation of aroma enhancement for E“colly” dry white wines by mixed inoculation of selected Rhodotorula mucilaginosa and Saccharomyces cerevisiae[J]. Food Chemistry, 2017, 228: 550-559. DOI:10.1016/j.foodchem.2017.01.113.
[9] 钟冬利, 杨慧, 王征, 等. 苹果酸-乳酸发酵温度对赤霞珠葡萄酒品质的影响[J]. 浙江农业科学, 2025, 66(7): 1724-1732.DOI:10.16178/j.issn.0528-9017.20240353.
[10] 原苗苗. 非酿酒酵母及其发酵温度对葡萄酒香气的影响[D]. 济南:齐鲁工业大学, 2018. DOI:10.27278/d.cnki.gsdqc.2018.000002.
[11] Yang Bo, Liu Shijiao, Zang Hongwen, et al. Flavor profile and quality of strawberry wine are improved through sequential fermentation with indigenous non-Saccharomyces yeasts and Saccharomyces cerevisiae[J]. Food Bioscience, 2024, 59: 104021. DOI:10.1016/j.fbio.2024.104021.
[12] Navajas-Porras B, Pérez-Burillo S, Morales-Pérez J, et al. Relationship of quality parameters, antioxidant capacity and total phenolic content of EVOO with ripening state and olive variety[J]. Food Chemistry, 2020, 325: 126926. DOI:10.1016/j.foodchem.2020.126926.
[13] Wu Yingmei, Xu Longquan, Liu Xiaoyi, et al. Effect of thermosonication treatment on blueberry juice quality: total phenolics, flavonoids, anthocyanin, and antioxidant activity[J]. LWT-Food Science and Technology, 2021, 150: 112021. DOI:10.1016/j.lwt.2021.112021.
[14] Zhao Huan, Wang Qinqin, Yang Lanlan, et al. Phytochemical analysis, antioxidant, anti-inflammatory and enzyme inhibitory activities of bean pear (Pyrus calleryana fruit)[J]. Frontiers in Plant Science, 2025, 16: 1521990. DOI:10.3389/fpls.2025.1521990.
[15] Wu Yuzheng, Li Zhigao, Zou Sibo, et al. Chemical composition and flavor characteristics of cider fermented with Saccharomyces cerevisiae and non-Saccharomyces cerevisiae[J]. Foods, 2023, 12(19): 3565. DOI:10.3390/foods12193565.
[16] Liu Shijiao, Wang Ruipeng, Zhang Yunong, et al. Effect of co-fermentation of Rhodotorula mucilaginosa with Saccharomyces cerevisiae on the quality and flavor profile of cider[J]. Food Bioscience, 2025, 64: 105973. DOI:10.1016/j.fbio.2025.105973.
[17] Gamero A, Tronchoni J, Querol A, et al. Production of aroma compounds by cryotolerant Saccharomycess pecies and hybrids at low and moderate fermentation temperatures[J]. Journal of Applied Microbiology, 2013, 114(5): 1405-1414. DOI:10.1111/jam.12126.
[18] 宋歌. 酿酒酵母与非酿酒酵母复合发酵对苹果酒风味品质的影响研究[D]. 大连: 大连工业大学, 2022. DOI:10.26992/d.cnki.gdlqc.2022.000718.
[19] Pérez-Nevado F, Albergaria H, Hogg T, et al. Cellular death of two non-Saccharomyces wine-related yeasts during mixed fermentations with Saccharomyces cerevisiae[J]. International Journal of Food Microbiology, 2006, 108(3): 336-345. DOI:10.1016/j.ijfoodmicro.2005.12.012.
[20] Tofalo R, Suzzi G, Perpetuini G. Discovering the influence of microorganisms on wine color[J]. Frontiers in Microbiology, 2021, 12: 790935. DOI:10.3389/fmicb.2021.790935.
[21] 朱胜男. 水蜜桃果酒的工艺研究[D]. 淮安: 淮阴工学院, 2020.DOI:10.27944/d.cnki.ghygy.2020.000053.
[22] 刘洁莹. 葡萄酒混菌苹果酸: 乳酸发酵的研究[D]. 杨凌: 西北农林科技大学, 2018.
[23] Han Yingying, Du Jinhua. A comparative study of the effect of bacteria and yeasts communities on inoculated and spontaneously fermented apple cider[J]. Food Microbiology, 2023, 111: 104195. DOI:10.1016/j.fm.2022.104195.
[24] Mendes Ferreira A, Mendes-Faia A. The role of yeasts and lactic acid bacteria on the metabolism of organic acids during winemaking[J].Foods, 2020, 9(9): 1231. DOI:10.3390/foods9091231.
[25] 郝爱玲. 降酸酵母菌株筛选及其在果酒发酵中的应用初探[D].杨凌: 西北农林科技大学, 2017. DOI:10.27409/d.cnki.gxbnu.2017.000208.
[26] Liang Zijian, Zhang Pangzhen, Ma Wen, et al. Physicochemical properties, antioxidant activities and comprehensive phenolic profiles of tea-macerated Chardonnay wine and model wine[J]. Food Chemistry, 2024, 436: 137748. DOI:10.1016/j.foodchem.2023.137748.
[27] Qian Jing, Zhao Ying, Yan Wenjing, et al. Improvement of antioxidant capacity and gray mold resistance of strawberries by combined plasma technology[J]. Postharvest Biology and Technology, 2025, 223:113426. DOI:10.1016/j.postharvbio.2025.113426.
[28] Sun Wangsheng, Chen Xiaowen, Feng Sinuo, et al. Effect of sequential fermentation with indigenous non-Saccharomyces cerevisiae combinations and Saccharomyces cerevisiae on the chemical composition and aroma compounds evolution of kiwifruit wine[J]. Food Chemistry, 2024, 460: 140758. DOI:10.1016/j.foodchem.2024.140758.
[29] 杨莉, 杨卫星, 李茜, 等. 基于GC-IMS对不同品种咖啡豆挥发性有机物指纹图谱分析[J]. 中国酿造, 2024, 43(1): 255-260.DOI:10.11882/j.issn.0254-5071.2024.01.040.
[30] 谭艳, 王国庆, 吴锦铸, 等. 基于GC-MS与GC-IMS技术对四种柚皮精油挥发性风味物质的检测[J]. 食品工业科技, 2021, 42(15): 256-268. DOI:10.13386/j.issn1002-0306.2020090041.
[31] 向秀连, 雷炎, 郝光飞, 等. 基于气相色谱-离子迁移谱不同轮次酱香型白酒挥发性风味物质分析[J]. 食品研究与开发, 2024,45(22): 181-188. DOI:10.12161/j.issn.1005-6521.2024.22.023.
[32] Ye Mengqi, Yue Tianli, Yuan Yahong. Evolution of polyphenols and organic acids during the fermentation of apple cider[J]. Journal of the Science of Food and Agriculture, 2014, 94(14): 2951-2957.DOI:10.1002/jsfa.6639.
[33] 兰韬, 陈李品, 王涛, 等. 基于E-nose、GC-MS和GC-IMS分析不同制油工艺对海南山茶油品质及风味特征的影响[J]. 食品工业科技,2025, 46(17): 63-77. DOI:10.13386/j.issn1002-0306.2024120180.
[34] 程荣, 刘瑞玲, 吴伟杰, 等. 电子鼻结合气相色谱-离子迁移谱法鉴别不同干燥方式的膳食虾肉复合果蔬棒风味变化[J]. 食品安全质量检测学报, 2024, 15(9): 187-196. DOI:10.19812/j.cnki.jfsq11-5956/ts.20240323003.
[35] 吴兰, 朱晓春, 孙优兰, 等. 基于感官和化学分析技术解析酱香型典型体基酒风味特征[J]. 食品与发酵工业, 2025, 51(16): 342-350.DOI:10.13995/j.cnki.11-1802/ts.041067.
[36] Carpena M, Fraga-Corral M, Otero P, et al. Secondary aroma: influence of wine microorganisms in their aroma profile[J]. Foods, 2021, 10(1):51. DOI:10.3390/foods10010051.
[37] 曾朝珍, 慕钰文, 袁晶, 等. 不同发酵温度对苹果酒理化性质及香气成分的影响[J]. 中国酿造, 2023, 42(12): 192-197. DOI:10.11882/j.issn.0254-5071.2023.12.030.
[38] 孟令帅, 郑婷婷, 王诗琦, 等. 基于气相色谱-离子迁移谱联用及气相色谱-质谱联用对贵州红托竹荪鲜品特征性香气物质表征及分析[J]. 食品与发酵工业, 2025, 51(16): 314-323. DOI:10.13995/j.cnki.11-1802/ts.041636.
[39] Zhu Jiancai, Chen Feng, Wang Lingying, et al. Comparison of aromaactive volatiles in oolong tea infusions using GC-olfactometry, GC-FPD, and GC-MS[J]. Journal of Agricultural and Food Chemistry,2015, 63(34): 7499-7510. DOI:10.1021/acs.jafc.5b02358.
[40] VAN GEMERT L J. Odour thresholds: compilations of odour threshold values in air, water and other media[M]. The Netherlands: Oliemans Punter & Partners BV, 2011.
[41] 王龙霞, 李全成, 贾岐乾, 等. 甘肃武威’霞多丽’干白葡萄酒酒精发酵过程中真菌多样性与风味特征研究[J]. 食品工业科技, 2025,46(21): 11-24. DOI:10.13386/j.issn1002-0306.2024120158.
[42] 张潇方, 翦祎, 龙海涛, 等. 基于抑菌效果和风味品质评价的冰红葡萄酒超高压工艺优化[J]. 核农学报, 2025, 39(6): 1210-1222.DOI:10.11869/j.issn.1000-8551.2025.06.1210.