浓酱兼香型白酒以其独特的风味在我国白酒市场占据重要地位,在其酿造过程中,中高温大曲作为关键的糖化发酵剂,其品质直接影响着基酒的风味底蕴与质量稳定性[1]。大曲的品质核心在于其功能微生物群落及相关酶系。在制作过程中,大曲内部形成高温、高湿、富集多种微生物的独特微生态系统,这些微生物通过分泌丰富的酶系(如淀粉酶、蛋白酶、酯化酶等)共同驱动着原料的分解与风味物质(如酯类、高级醇、有机酸等)的合成[2-5]。因此,对大曲功能微生物资源的挖掘与利用是理解和提升白酒品质的科学基础。
在实际生产中,大曲的品质通常根据感官评价和理化指标被划分为不同等级[6]。研究表明,不同等级大曲在酿造性能上的差异可能源于其内部微生物群落构成及其代谢潜能的分化[1,6-7]。然而,目前关于大曲分级的相关研究多集中于理化性质的对比或基于扩增子测序的物种组成描述[6-9],且对于不同等级大曲的解析还不够全面,目前仍多集中在优级至二级[5,9-12],对产酶功能菌资源以及宏基因组水平上的酶系构成差异仍缺乏系统性解析。而且,目前对大曲功能菌的研究多集中于浓香、酱香、芝麻香等单一香型[1,6-14],针对浓酱兼香型这一特定品类中高温大曲功能微生物组成的研究基础较为薄弱,其核心可培养功能微生物资源,酶活性及应用潜力尚属未知。更重要的是,当前鲜有研究能同时、系统地揭示“可培养功能菌株的实际产酶能力”与“大曲整体微生物群落的代谢功能酶”特征及其关联,而这正是理解大曲等级分化功能微生物学本质的关键。
以往的研究多集中于采用单一技术手段(如纯培养或非培养群落分析)对大曲微生物进行探讨,难以全面揭示其“物种-功能”关联。传统可培养方法能获得可直接利用的功能菌株,但无法反映群落的整体面貌;而宏基因组学虽能全景式解析群落的遗传潜能,却难以与具体菌株的活性功能直接对应。因此,整合两种技术,系统挖掘大曲中可培养的功能微生物资源,并同步阐明其整体群落的功能特征,对于解读大曲等级分化的微生物学机制具有重要的科学意义。
基于此,本研究以完成贮存的浓酱兼香型中高温大曲(特级与优级)作为研究对象,整合培养组学与宏基因组学技术,系统分离鉴定大曲中的可培养微生物,并评估其在关键酿造酶系(蛋白酶、淀粉酶和酯化酶)方面的产酶特性,挖掘具有应用潜力的菌株;解析特级与优级大曲在微生物群落的物种组成、功能酶及代谢功能上的差异,从“菌株资源”与“群落功能”双重维度揭示其质量等级分化的内在功能生态学基础,为浓酱兼香型白酒酿造提供宝贵的微生物资源,也为微生物定向调控实现大曲及白酒品质的提升提供理论依据。
1 材料与方法
1.1 材料与试剂
特级(T)、优级(Y)浓酱兼香型白酒中高温大曲 四川郎酒股份有限公司。
酸性蛋白酶活性检测试剂盒 北京索莱宝科技有限公司;淀粉酶检测试剂盒 上海源叶生物科技有限公司。
淀粉酶筛选培养基:可溶性淀粉10 g/L、蛋白胨2 g/L、酵母膏5 g/L、NaCl 5 g/L、K2HPO4 3 g/L、琼脂20 g/L,pH 7。
蛋白酶筛选培养基:脱脂奶粉20 g/L、酵母膏1 g/L、葡萄糖1 g/L、蛋白胨10 g/L、MgSO4·7H2O 0.1 g/L、KH2PO4 0.5 g/L、K2HPO4 1 g/L、琼脂20 g/L,pH 7。
酯化酶筛选培养基:(NH4)2SO4 5.00 g/L、K2HPO4 5.00 g/L、MgSO4·7H2O 1.00 g/L、FeSO4·7H2O0.01 g/L、NaCl 0.50 g/L、琼脂15.00 g/L、溴甲酚紫0.04 g/L、酵母粉1.00 g/L、蛋白胨2.50 g/L、三丁酸甘油酯30.00 mL,pH 7.2。
1.2 仪器与设备
CH-SQ50B恒温培养箱 上海川一实验仪器有限公司;1384生物安全柜 美国Thermo Fisher Scientific公司;5424高速离心机 德国Eppendorf公司;Easycycle Gradient聚合酶链式反应(polymerase chain reaction,PCR)仪 德国Analytik Jena公司;GI54DWS高压蒸汽灭菌锅 致微(厦门)仪器有限公司;NovaSeq X Plus测序仪 美国Illumina公司;HBS-ScanX酶标仪南京德铁生物科技有限公司;Mag-Bind® Soil DNA试剂盒 美国Omega Bio-Tek公司。
1.3 方法
1.3.1 样品采集
在同一条件下,随机选择3个曲房,采用五点取样法在每个曲层四角和中心位置采集大曲样品,不同等级大曲各设置至少3个平行样品,样品经研磨粉碎、充分混匀后用于后续检测分析。
1.3.2 功能菌分离
将特级、优级大曲样品稀释至10-6,取100 μL稀释液分别涂布于淀粉酶、蛋白酶和酯化酶筛选培养基表面,于37 ℃或28 ℃恒温培养24 h,挑取出现透明圈的菌落进行纯化。
1.3.3 功能菌鉴定
根据菌落形态特征(颜色、形状、表面光滑度、隆起度、透明度等)进行形态学鉴定;采用结晶紫对微生物细胞进行染色,显微镜观察形态。采用CHELEX法进行DNA提取[14],选用引物27F、1492R进行PCR扩增。PCR扩增体系(25 μL):12.5 μL Mix、11 μL ddH2O、2种引物各0.5 μL、0.5 μL DNA样品。PCR条件:95 ℃、5 min;94 ℃、1 min,56 ℃、1 min,72 ℃、1.5 min,30个循环;72 ℃、9 min。将PCR扩增产物送至北京擎科生物科技有限公司测序。将测序所得16S rRNA基因序列提交至GenBank数据库,利用BLAST进行同源比对检索,构建系统发育树,以进一步确定分离菌的分类地位。
1.3.4 菌株产酶能力初步评价
将菌株接种于酯化酶、蛋白酶和淀粉酶筛选培养基上,37 ℃培养2 d,测量透明水解圈直径(D)与菌落直径(d),根据D/d值初步判断菌株产酶能力。
1.3.5 功能菌复筛
挑取D/d值>2的菌株于液体培养基中,37 ℃培养24 h,4 ℃、8 000 r/min离心5 min,上清液为粗酶液。采用对硝基苯酚法[15]测定酯化酶活性,淀粉酶及蛋白酶活性测定参照试剂盒说明书进行。
1.3.6 宏基因组测序
采用Mag-Bind® Soil DNA试剂盒进行样品DNA抽提,并构建双端测序文库,使用NovaSeq X Plus测序平台进行宏基因组测序。使用fastp对序列进行质量过滤,保留高质量序列。使用MEGAHIT软件收集宏基因组学数据,选择长度≥300 bp的Contigs作为最终组装结果,并进一步进行基因预测和功能注释。使用Diamond软件将非冗余基因集的氨基酸序列分别与非冗余蛋白数据库(Non-redundant Protein Sequence Database,NR)、京都基因与基因组百科全书(Kyoto Encyclopedia of Genes and Genomes,KEGG)与碳水化合物活性酶(Carbohydrate-Active Enzymes,CAZy)等数据库进行比对,获得物种和功能的注释分类。
1.4 数据处理
每个实验重复3次,使用GraphPad Prism 10进行单因素方差分析与绘图,组间差异采用Tukey’s HSD检验进行多重比较。宏基因组数据通过上海美吉生物医药科技有限公司云分析平台(https://cloud.majorbio.com/)进行分析。
2 结果与分析
2.1 中高温大曲中菌株的分离与初步鉴定
从中高温大曲样品中共分离得到25株菌落形态存在差异的菌株,部分菌株的菌落及细胞形态见图1。大多数菌株呈乳白色、不透明、边缘不规则、表面光滑且扁平,部分菌株较湿润、呈黏稠状。经染色后在显微镜下观察发现,菌株细胞多呈椭圆状、杆状,部分呈链状排列。
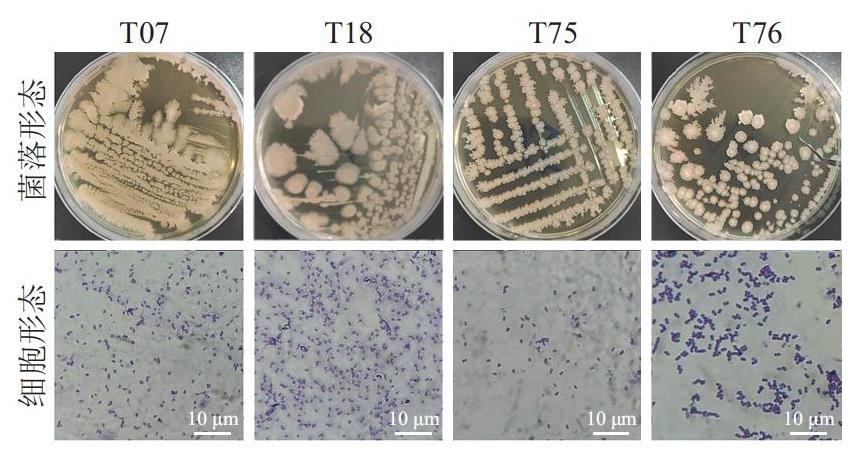
图1 菌株T07、T18、Y75、Y76的菌落及细胞形态
Fig.1 Colony and cell morphology of strains T07, T18, Y75, and Y76
2.2 中高温大曲中功能菌的分子生物学鉴定
由图2可知,所分离的25株菌归属于芽孢杆菌属(Bacillus,23株)、阪崎肠杆菌属(Cronobacter,2株),其中Bacillus为绝对优势类群,枯草芽孢杆菌(B. subtilis)和贝莱斯芽孢杆菌(B. velezensis)分别在特级与优级大曲中占比最高(36.4%、35.7%),均超过35%。特级大曲中其他主要菌种依次为蜡样芽孢杆菌(B. cereus)、B. velezensis及解淀粉芽孢杆菌(B. amyloliquefaciens)。优级大曲中菌种多样性更为丰富,除上述芽孢杆菌外,还包括地衣芽孢杆菌(B. licheniformis)、阪崎克洛诺斯杆菌(C. sakazakii)及威兹曼芽孢杆菌(B. wiedmannii)。这些类群大多已被报道为产酶功能菌[16-17],这种可培养微生物的分布差异为两类大曲产酶功能分化奠定了基础。
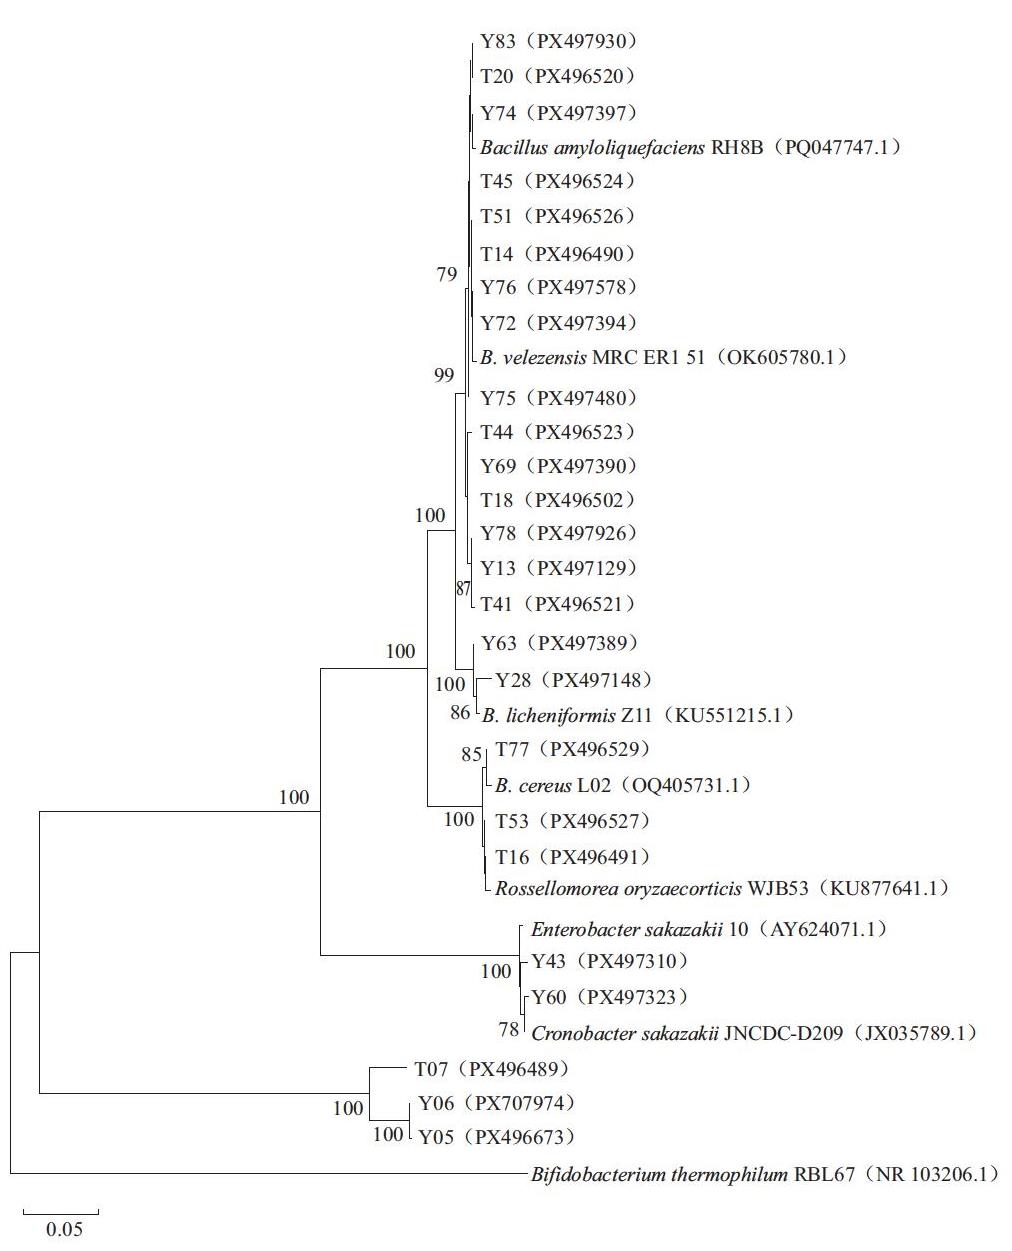
图2 基于16S rRNA基因序列的初筛菌株的系统发育树
Fig.2 Phylogenetic tree of initially screened strains based on 16S rRNA gene sequences
2.3 中高温大曲中功能菌筛选
2.3.1 功能菌初筛
由图3A可知,共获得16株产蛋白酶阳性菌株,其中8株来源于优级大曲,占该等级总分离菌株数的57.14%;8株来源于特级大曲,占该等级总分离菌株数的72.73%。菌株T14、Y13、Y75和Y76的D/d值均大于2,表现出较强的蛋白酶产生能力。其中,T14菌株的D/d值达到2.66,显著高于其他所有菌株(P<0.05),表明其蛋白酶分泌能力与活性最强,是本次筛选获得的最优产蛋白酶菌株。除T14菌株外,Y75与Y13菌株的D/d值也显著高于其他菌株(P<0.05),为备选高活性蛋白酶生产菌株,具有良好的应用潜力。
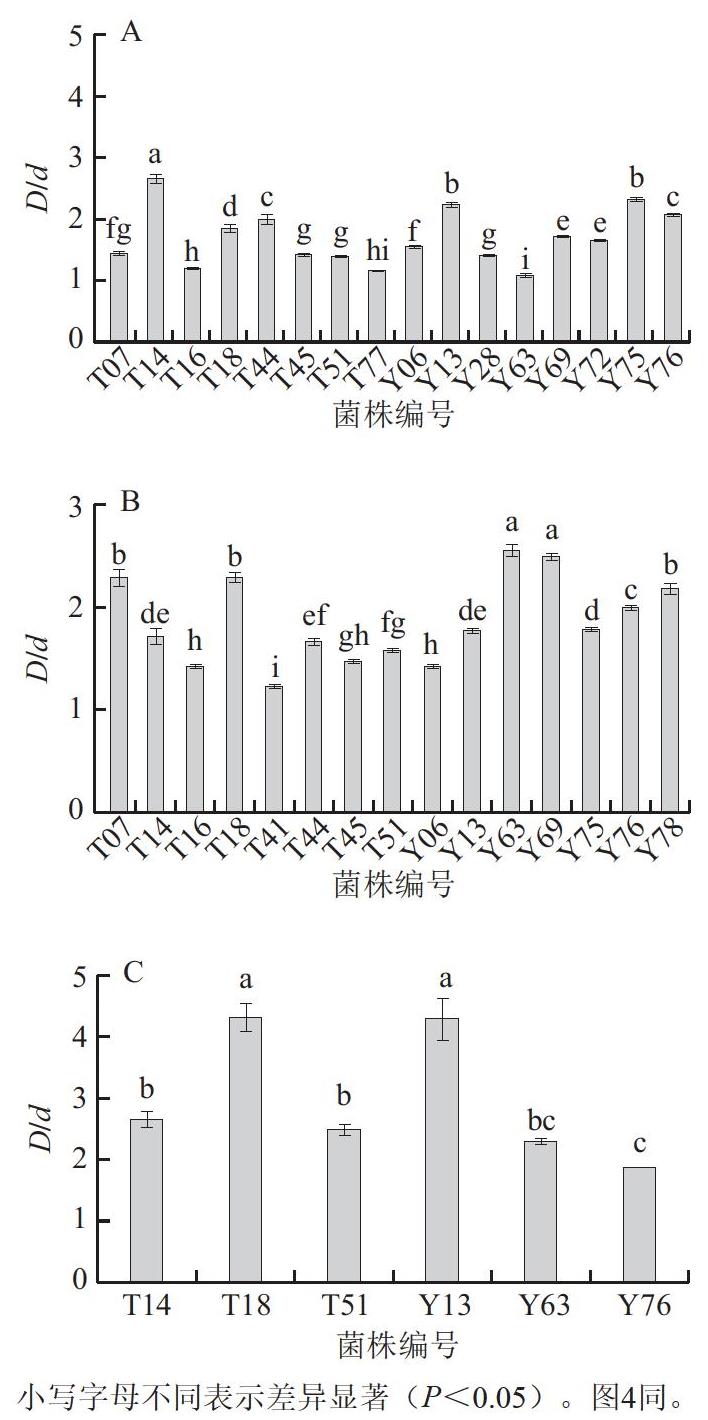
图3 产蛋白酶(A)、淀粉酶(B)及酯化酶(C)菌株初筛
Fig.3 Primary screening of protease- (A), amylase- (B), and esterase-producing (C) strains
由图3B可知,共获得15株产淀粉酶阳性菌株,其中7株来源于优级大曲,占该等级总分离菌株数的50.00%;8株来源于特级大曲,占该等级总分离菌株数的72.73%。菌株T07、T18、Y63、Y69、Y76和Y78的D/d值均大于2,显示出优良的淀粉酶产生潜力。其中,Y63与Y69菌株的D/d值显著高于其他菌株(P<0.05),菌株Y63的D/d值达到2.56,表明其淀粉酶分泌能力较强,是本次筛选获得的最优淀粉酶产生菌株。
由图3C可知,共获得6株产酯化酶阳性菌株,其中来源于优级与特级大曲各3株,分别占对应大曲分离菌株总数的21.43%和27.27%。菌株T14、Y13、Y63、T51和T18展现出较强的酯化酶产生能力(D/d值>2.3)。其中,T18与Y13菌株的D/d值显著高于其他所有菌株(P<0.05),菌株T18的D/d值达到4.33,表明其酯化酶分泌能力最强,是本次筛选获得的最优酯化酶产生菌株。
综合初筛结果,在18株功能菌中,菌株T14、Y63、T18分别具有最强的产蛋白酶、淀粉酶与酯化酶能力。此外,有6株菌(T14、T18、T51、Y13、Y63、Y76)具备同时产3种酶的能力,显示出在复合酶制剂开发或酿造工艺优化方面的良好应用前景。
2.3.2 功能菌复筛
由图4A可知,6株菌(T07、T18、Y63、Y69、Y76、Y78)产淀粉酶活性较高,其中菌株Y76产淀粉酶活性最高(64.11 U/100 mL),显著高于其他菌株(P< 0.05),表现出比初筛更强的优势,说明其在液体培养环境中产酶能力更强,为本次定量测定中产淀粉酶活性最优的菌株。由图4B可知,3株菌(Y13、Y75、Y76)产蛋白酶活性较高,说明优级大曲中蛋白酶高产菌株更为集中。其中菌株Y13产蛋白酶活性最高(4.25 U/g),显著高于菌株Y75(P<0.05)。由图4C可知,3株菌(T18、Y13、Y63)产酯化酶活性较高,其中菌株T18产酯化酶活性最高(8.49 U/mL),显著高于菌株Y13与Y63(P<0.05)。综合来看,不同菌株的酶活性谱呈现出显著的功能特异性,优级大曲中的高酶活性菌株数量占比超70%,是高酶活性菌株的主要来源,平均酶活性(39.11 U/100 mL)高于特级大曲(34.33 U/100 mL),且以产高活性蛋白酶和淀粉酶菌株为主。两类大曲中产酶功能菌分布及产酶特性差异为理解大曲品质分化提供了菌株层面的初步证据。
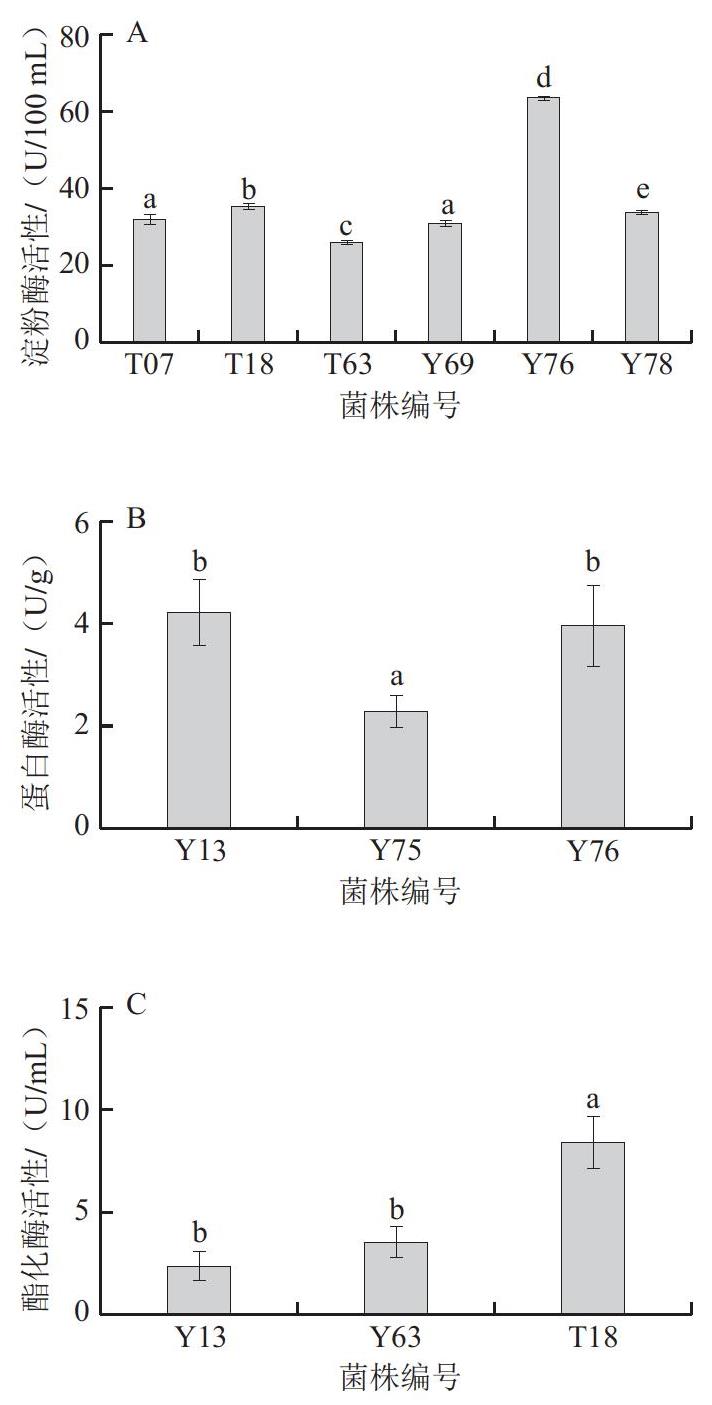
图4 产淀粉酶(A)、蛋白酶(B)、酯化酶(C)菌株复筛
Fig.4 Secondary screening of amylase- (A), protease- (B), and esterase-producing (C) strains
2.4 中高温大曲微生物群落宏基因组分析
为进一步明确大曲整体酶系特征、群落组成与功能,采用宏基因组技术对特级与优级大曲中的微生物群落及酶系功能进行解析。
2.4.1 微生物群落多样性分析
由图5A可知,特级与优级大曲的微生物物种丰富度及均匀度无显著差异,但贮藏完成后的特级大曲特微生物类群(195个属、696个种)多于优级大曲(169个属、656个种),提示其群落组成可能更具独特性与复杂性,为酶系功能分化提供了群落基础。采用主坐标分析(principal coordinates analysis,PCoA)结合ANOSIM非参数检验,评估特级和优级大曲微生物群落结构差异。由图5B可知,前2个主坐标共同解释94.86%的变异(PCo1:85.03%、PCo2:9.83%)。2种等级大曲样本呈现出清晰的组间分离与组内聚集,表明不同等级的样本在微生物群落结构上虽有一定差异,但未发生显著分化,群落核心微生物较稳定,为大曲酶系功能的稳定提供了保障。
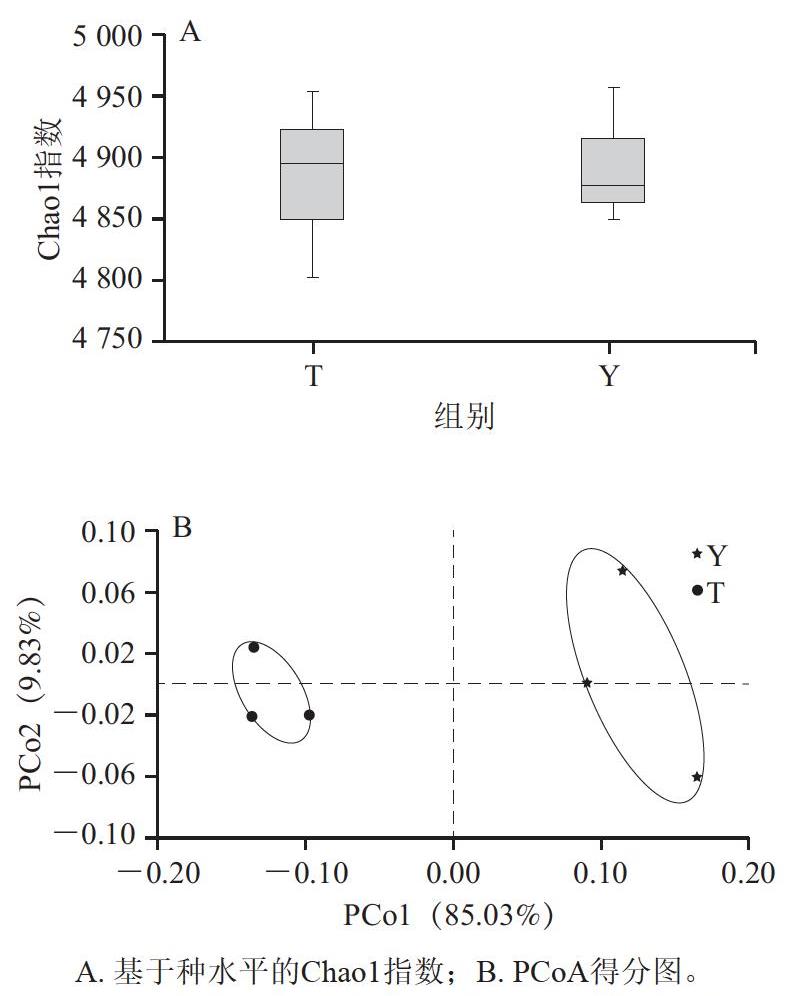
图5 基于宏基因组学的大曲微生物群落多样性
Fig.5 Microbial community diversity of Daqu based on metagenomics
2.4.2 微生物群落组成
基于NR数据库的物种注释结果显示,大曲样品中微生物呈现真核生物主导(62.36%)、细菌为辅(37.39%),古菌(0.11%)与病毒(0.15%)较为稀有的群落结构特征。由图6A可知,特级与优级大曲均以Ascomycota和Mucoromycota为优势菌门,合计占比均超70%。其中,Ascomycota占比最高,且特级大曲(40.20%)高于优级大曲(18.82%);而Mucoromycota、Pseudomonadota和Bacillota在优级大曲中占比更高,为其酶系功能分化奠定了微生物基础。由 图6B可知,Pantoea为两种大曲的绝对优势属,在优级大曲中相对丰度(26.45%)高于特级大曲(18.40%)。此外Erwinia、Aspergillus、Rasamsonia在特级大曲中相对丰度均高于优级大曲,其中Rasamsonia是一种能在高温下生长并分泌多种水解酶的耐热子囊菌,与糖化力呈正相关[18],Aspergillus能够产生广泛的胞外酶[19],用于淀粉糖化、蛋白质水解等[7],其与纯培养中芽孢杆菌属菌株协同发挥产酶作用。优级大曲中Lichtheimia和Bacillus属相对丰度略高于特级,与纯培养中优级大曲芽孢杆菌属菌株更多的结果相互印证。
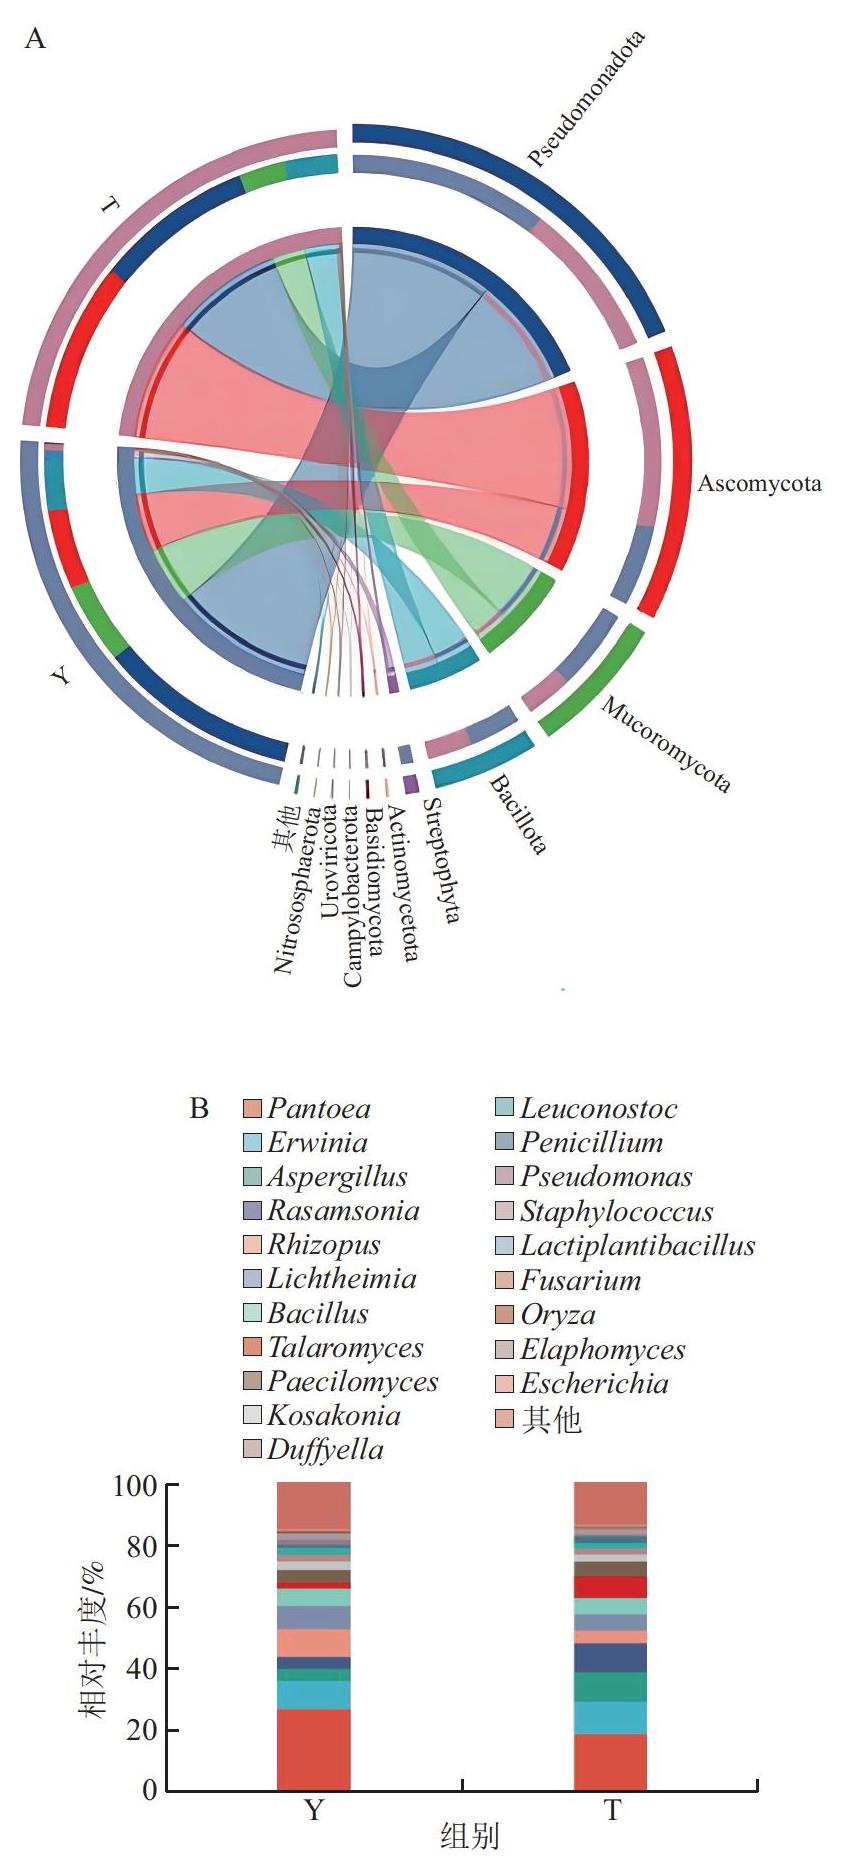
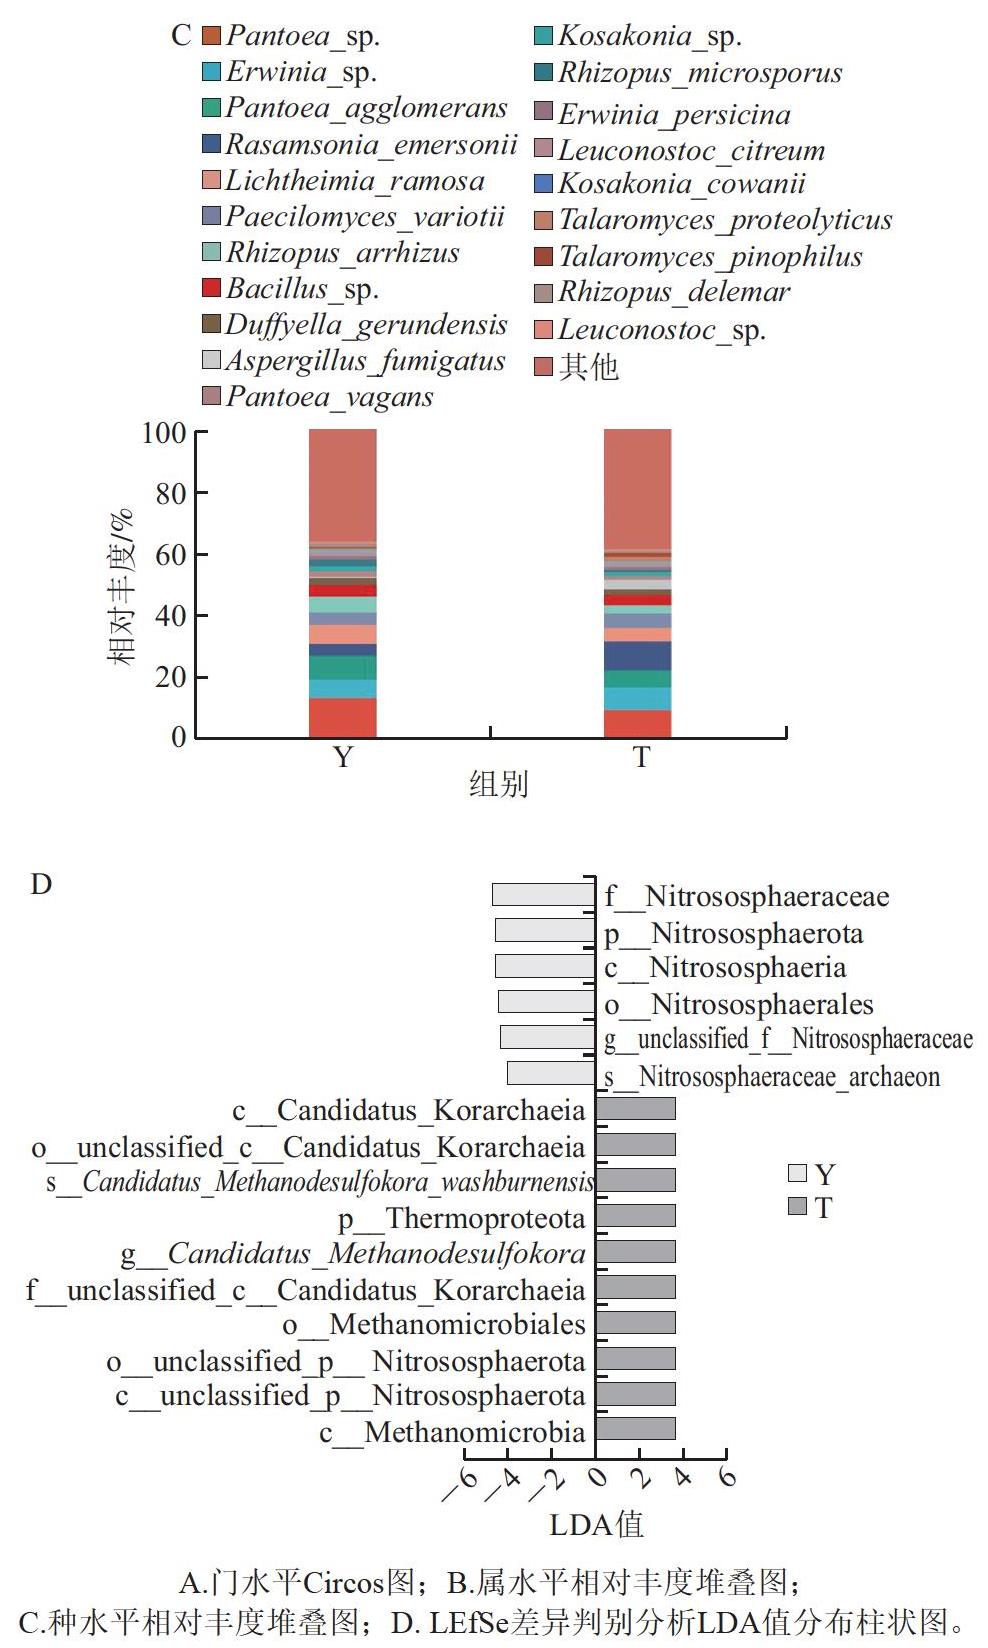
图6 基于宏基因组的大曲微生物群落组成分析
Fig.6 Analysis of microbial community composition in Daqu based on metagenomics
由图6C可知,R. emersonii为特级大曲的绝对优势种,相对丰度为9.34%,Pantoea sp.为优级大曲的绝对优势种,相对丰度为12.9%,此外Erwinia sp.、L. ramosa、P. agglomerans为2种大曲的主要优势种。这些种可产多种水解酶,R. emersonii具有丰富的糖苷水解酶(glycoside hydrolases,GH)编码潜力[20],L. ramosa能够产纤维素酶[21],有助于糖化、液化,可有效提升原料利用率,共同影响曲质与酒质。进一步通过线性判别分析效应量(linear discriminant analysis effect size,LEfSe)分析,基于线性判别分析(linear discriminant analysis,LDA)值筛选特级与优级大曲的差异微生物标志物,由图6D可知,优级大曲和特级大曲微生物分布的差异主要体现在古菌类群上,以Nitrososphaerota、Thermoproteota、unclassified_f_Nitrososphaeraceae、Candidatus_Methanodesulfokora、Nitrososphaeraceae_archaeon和Candidatus_Methanodesulfokora_washburnensis为代表。不同等级大曲的主要类群真菌和细菌的群落结构相对稳定,古菌分布差异可能反映了特级与优级大曲微环境(如温度、氧化还原电位)差异。
2.4.3 CAZy功能酶注释
在CAZy类别水平上,2种大曲微生物均以GH(32.4%~32.6%)和糖基转移酶(glycosyl transferases,GT;41.2%~42.7%)为主要功能类群(图7A),这与大曲作为糖化发酵剂的核心功能相符[22],说明高效的原料分解和旺盛的生物合成是中高温大曲作为酿酒发酵剂的基础功能保障。在CAZy家族水平上,糖酯酶(carbohydrate esterases,CE)家族的CE1为最主要的功能类群(5.95%~6.88%),其次为GT家族的GT41和GT2_Glycos_transf_2(图7B)。LEfSe分析显示,不同等级大曲在功能上存在显著分化:优级大曲中CE和碳水化合物结合结构域(carbohydrate-binding modules,CBM)显著上调。特级大曲辅助氧化还原酶(auxiliary activities,AA)、GH功能显著上调。在家族水平层面,优级大曲显著上调的酶家族(如CE1和CE4、GH23和GH24、AA3)功能(图7D、E)主要集中在细胞壁解构和基础糖分释放等过程,表明其微生物群落更侧重于基础结构性物质的分解与合成。相比之下,特级大曲淀粉精细降解(如GH13_40)、纤维素和半纤维素分解(如AA7、AA9)及糖苷类风味物质合成(如GT41、GT20)相关的AA、GH、GT酶家族显著上调。这种功能倾向表明特级大曲的微生物群落侧重于复杂底物转化与精细修饰,更致力于合成与风味形成密切相关的糖苷类化合物。特级和优级大曲在功能类群上的差异揭示了其在原料利用和代谢精细度上策略差异。
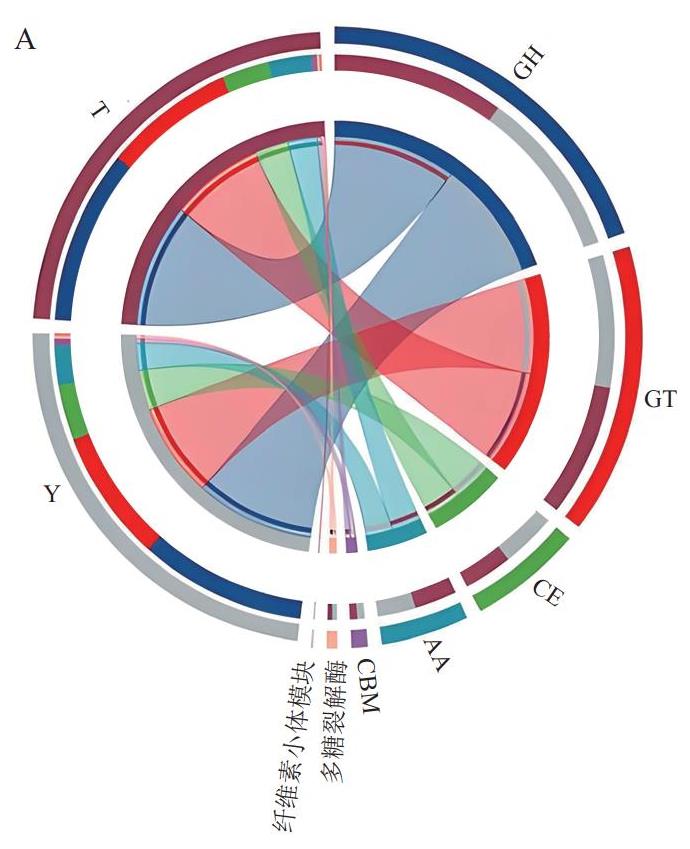
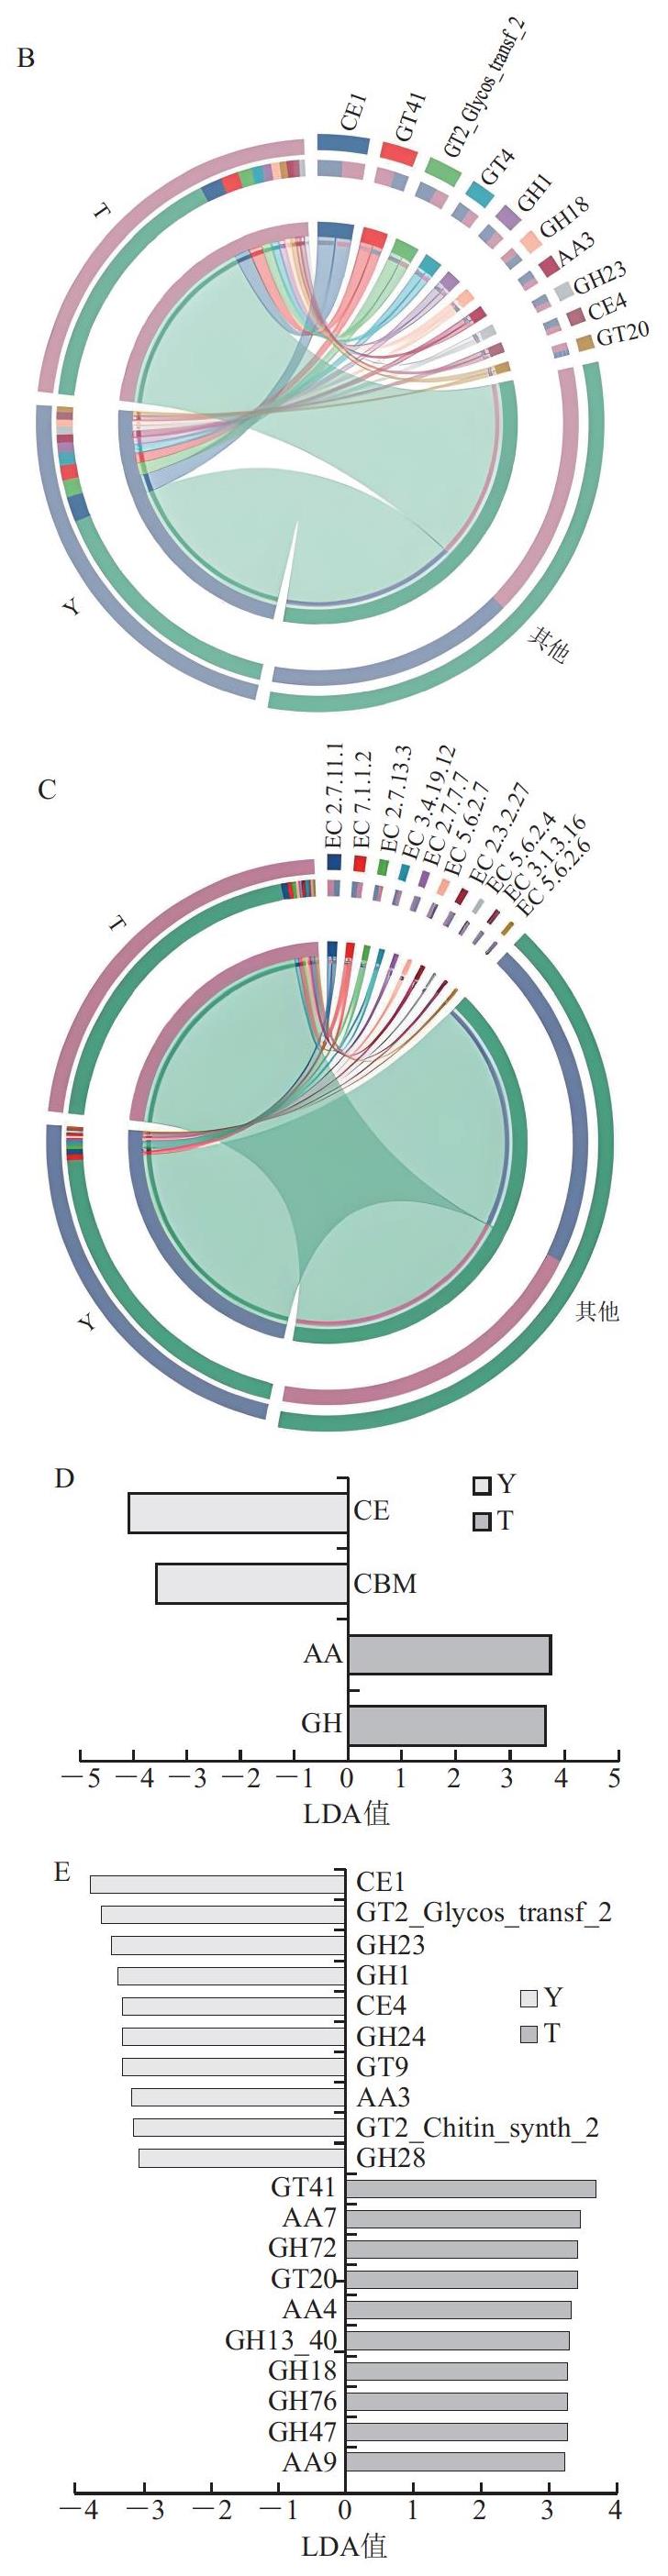
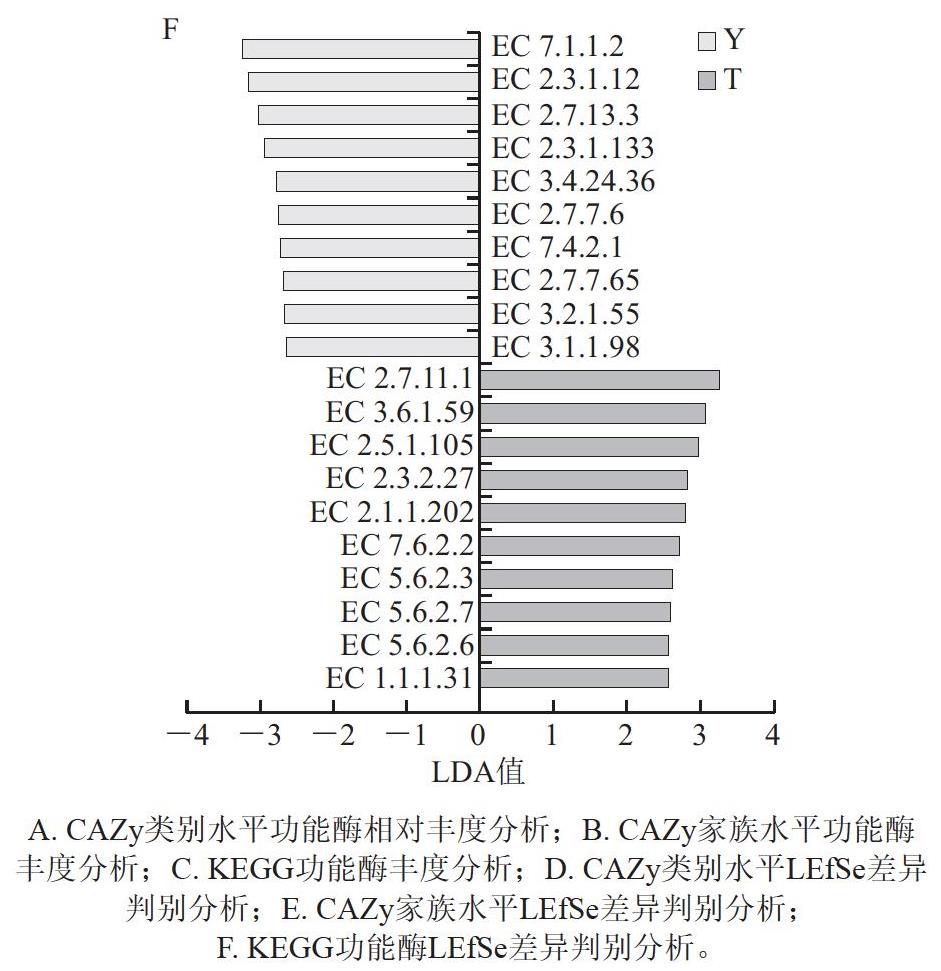
图7 基于宏基因组的大曲微生物功能酶注释
Fig.7 Functional enzyme annotation of Daqu microorganisms based on metagenomics
2.4.4 KEGG功能酶注释
基于KEGG数据库的功能酶注释结果表明, EC 2.7.11.1、EC 7.1.1.2、EC 2.7.13.3是丰度占比较高的3种功能酶(图7C),功能主要集中在细胞信号转导和能量代谢,体现了中高温大曲的独特适应策略。LEfSe分析显示,优级大曲显著富集的功能酶以蛋白酶(如EC 3.4.24.36)和多糖分解酶(如EC 3.2.1.55)为核心 (图7F),有助于原料最大化降解,同时通过富集的通用前体酶(EC 2.3.1.12)为酿酒提供充足的糖分、氨基酸和乙酰辅酶A等基础风味物质前体。特级大曲的微生物群落中以萜类合成酶(如EC 2.5.1.105)和特殊酯化酶(如EC 2.3.2.27)为代表的功能酶显著上调,这些酶协同作用调控高级风味化合物的合成。同时,富集的酮体代谢核心酶(如EC 1.1.1.31)所催化反应生成的还原型烟酰胺腺嘌呤二核苷酸可为自身生长代谢和风味前体的转化提供能量和底物来源[23-24],赋予特级大曲微生物群落更高的代谢灵活性[25]。
3 讨 论
为揭示特级与优级中高温大曲品质分化的微生物基础,本研究围绕“功能菌筛选-微生物群落结构-酶系功能解析”3大核心系统展开,从浓酱兼香型中高温大曲中成功分离到以Bacillus为绝对优势的可培养微生物,与以往研究中芽孢杆菌类群是成熟大曲的标志性细菌的发现[26-29]一致。Bacillus之所以能在大曲微生物群落中占据优势,核心在于其独特的生理特性与功能优势:一方面,其具备较强的耐热、耐乙醇能力,能良好适应中高温大曲发酵期高温、微氧的特殊环境,且可形成耐热、耐干燥的芽孢,确保其在大曲长达数月的贮存期内稳定存活;另一方面,该属微生物拥有强大的分泌系统和丰富的胞外酶系,具备优异的产酶潜力,这也是其发挥核心功能的关键[26-29]。芽孢杆菌属耐热、耐乙醇、产酶能力强的功能优势在本研究中得到进一步印证:所有经复筛获得的高产酶菌株经鉴定均属于Bacillus,与该属微生物的产酶特性高度契合。大量研究表明,Bacillus在胞外酶产生方面优势显著,尤其是B. subtilis、B. licheniformis、B. amyloliquefaciens在蛋白酶、淀粉酶、脂肪酶产生能力上表现突出[29-33]。由此可见,突出的产酶能力是Bacillus在大曲微生物群落中占据优势地位的重要功能基础之一。此外,本研究分离获得的微生物类群仍较为有限,未来可通过优化分离条件及培养基配方,进一步提高其他类群微生物的可培养率,为大曲功能微生物资源的全面挖掘提供支撑。
本研究系统比较了不同等级浓酱兼香型中高温大曲样品中可培养功能菌的产酶特性。优级大曲不仅是全部高产蛋白酶菌株(Y13、Y75、Y76)的来源,还贡献了绝大多数高产淀粉酶菌株,提示其在原料高效降解(糖化与蛋白水解)功能方面具有突出潜力,可能与优级大曲在制作过程中形成的适宜微环境有关,为其富集高产水解酶菌株提供了条件。与之形成对比,特级大曲则贡献了酯化酶活力最高的菌株T18,凸显出在风味物质(酯类)合成方面的独特优势。该结果揭示了等级间功能微生物产酶特性的分化情况,为理解大曲质量分级背后的微生物学基础提供了新的视角。
值得注意的是,菌株Y76和T18的初筛D/d值较低,但在液体发酵复筛中分别表现出最高的淀粉酶和酯化酶活性,这一现象表明,菌株在固体平板筛选与液体发酵条件下的代谢和酶表达模式可能存在差异,该发现具有重要的方法学意义。菌株Y76和T18在复筛中的卓越表现暗示其更适应液态发酵的代谢模式,具备更强的胞外酶分泌效率或在液体环境中的生长优势。这一发现提示,在功能菌筛选实践中,采用“固体初筛结合液体复筛”的结合策略,能更全面、准确地评估菌株的实际应用潜力,避免因单一筛选方法导致的漏筛或误判。
此外,与已有研究相比,本研究所获得的菌株在产酶能力方面表现出显著优势。例如,菌株Y63的淀粉酶D/d值(2.56)远高于蒋泽元等[34]报道的菌株KC-6(D/d=1.42);菌株T14产蛋白酶D/d值(2.66)略低于菌株KC-6(D/d=2.95),整体处于中等偏上水平。与张璋等[35-36]针对酱香型白酒大曲的研究相比,菌株Y63所产淀粉酶活性(D/d=2.56)虽低于其最优菌株AmyZ5(D/d=3.33),但仍高于该研究中多数菌株,处于较高水平;而菌株T14的蛋白酶活性 (D/d=2.66)则明显优于其最优菌株Cy3(D/d=2.13),并略高于张颖[37]研究中菌株114#(D/d=2.40)的蛋白酶活性,充分展现了本研究所筛菌株在蛋白酶分泌方面的优异潜力。上述高产酶菌株未来可作为强化菌剂用于白酒酿造过程,通过提升特定酶活性,实现对白酒风味的定向调控,为白酒工艺优化提供优质菌株资源。
组学分析进一步从生态功能层面揭示了不同等级大曲的深层生态策略。真菌为大曲微生物群落的绝对优势类群,以Ascomycota、Mucoromycota、Aspergillus、Rasamsonia为大曲核心产酶功能的主要承担者,参与大曲发酵过程中糖化、发酵、酯类合成等关键代谢过程,直接决定大曲的主体代谢方向与风味基础。Aspergillus和Rasamsonia在特级大曲中相对丰度更高,前者是糖化酶和酯化酶的核心生产者,后者是耐热纤维素酶的重要来源,共同支撑特级大曲的酯化力优势和贮藏稳定性。特级大曲的微生物群落表现为明显的高温适应性,以R. emersonii为代表的嗜热真菌为其在高温下持续进行高效分解代谢提供保障。细菌为第2大类群,主要包括Bacillota、Pseudomonadota等功能类群,其核心作用是产酯化酶、降解蛋白质及转化风味前体物质[38],与真菌形成协同发酵体系,进一步完善大曲的代谢功能,提升风味复杂度和贮藏稳定性。宏基因组分析证实了可培养方法的结果,Bacillus在优级大曲中丰度高于特级大曲,与纯培养结果中优级大曲芽孢杆菌多样性更高的特征相一致。
功能酶谱分析进一步揭示了特级与优级大曲的代谢策略,CAZy功能酶注释显示,优级大曲的微生物群落功能高度集中于基础原料的降解与转化,其富集的CE、CBM家族以及蛋白酶和多糖分解酶(如CE1、CE4、GH23、GH24、AA3)可将复杂的植物细胞壁结构高效解构,并最大化地释放出可供发酵的糖分、氨基酸等基础前体物质。这与其在可培养筛选中高产蛋白酶、淀粉酶的特性完全吻合,表明其核心策略是“高效产酒”。相比之下,特级大曲的微生物群落功能更侧重于复杂底物的精细转化与高级风味合成,其富集的AA、GH、GT家族以及萜类合成酶、特殊酯化酶、酮体代谢核心酶等均指向对淀粉、纤维素等底物的深度加工和向香气化合物的定向转化,与特级大曲中分离菌株产酯化酶能力更强的结果相符,赋予其微生物群落更高的代谢灵活性,体现出特级大曲在酯化力、增加风味复杂度方面的优势。功能酶谱的差异揭示了两类大曲在原料利用与风味形成上的不同代谢策略,这是品质分化的直接原因,构成了其风味代谢分异的微生物生态学基础。
综上,该研究揭示了特级与优级中高温大曲的品质分化主要源于其微生物功能及代谢酶系差异,这种差异进一步影响两类大曲在产酶能力及风味合成潜力上的分化。基于上述发现,后续可重点围绕B. velezensis T18等核心菌株开发强化菌剂,同时深入探究其产酶分子机制,采用单因素试验与响应面法优化其产酶条件,提升酶活性;通过共培养体系探究功能菌与大曲土著微生物的协同作用机制,解析微生物间的协同产酶效应;将功能菌应用于大曲制备及酿酒实验,验证其对大曲酶活性、出酒率及酒体风味的调控作用,实现功能菌的产业化应用,最终为中高温大曲品质的定向提升提供技术支持。
4 结 论
本研究通过整合可培养技术与宏基因组学,系统解析了浓酱兼香型中高温特级与优级大曲中产淀粉酶、蛋白酶和酯化酶的功能菌资源及其代谢酶系特征。结果表明,Bacillus为优势产酶细菌,优级大曲是高产蛋白酶和淀粉酶菌株的主要来源,展现出高效的原料分解潜力;而特级大曲则贡献了高产酯化酶菌株B. velezensis T18。宏基因组分析深化了功能菌群的群落特征,优级大曲Bacillus相对丰度更高,CE及蛋白酶显著富集,与可培养筛选结果一致。特级大曲中Ascomycota、Mucoromycota、Pseudomonadota及Aspergillus和Rasamsonia相对丰度更高,AA及萜类合成酶显著富集。功能酶谱分析显示两类大曲呈现出差异化代谢策略,优级大曲显著富集CE和CBM,功能集中在细胞壁解构和基础糖分释放,更侧重原料的高效降解利用;而特级大曲则富集AA和特定GH,以及萜类合成酶和特殊酯化酶,侧重于复杂底物的精细转化与高级风味物质的合成,同时富集的酮体代谢核心酶赋予其更高的代谢灵活性。综上所述,两类大曲的品质差异本质上源于其微生物群落结构与功能代谢策略的差异,微生物功能差异驱动酶系差异,进而影响大曲品质。本研究为中高温大曲的品质提升及白酒酿造过程的微生物定向调控提供了关键菌种资源与理论依据。
[1] Hou Xiaoge, Hui Ming, Gu Xiaoman, et al. Differential characteristics of the metabolic profiles and microbial community between superior and normal grades of Nongxiangxing-Daqu[J]. Foods, 2024, 13(6):914. DOI:10.3390/foods13060914.
[2] 李建勋, 李清亮, 陈鹏, 等. 白酒大曲质量鉴别的研究进展[J]. 中国酿造, 2024, 43(10): 13-17. DOI:10.11882/j.issn.0254-5071.2024.10.003.
[3] 潘强林, 岳松, 张庆, 等. 大曲功能菌的分离及应用进展[J]. 食品与发酵工业, 2024, 50(16): 408-420. DOI:10.13995/j.cnki.11-1802/ts.039594.
[4] 严骋, 张立强, 冉茂芳, 等. 白酒大曲的酶系研究手段及功能酶研究 进展[J]. 食品与发酵工业, 2025, 51(3): 368-375. DOI:10.13995/j.cnki.11-1802/ts.039448.
[5] Tang Ping, Wang Lianqing, Zhao Qing, et al. Characterization of key aroma compounds and relationship between aroma compounds and sensory attributes in different quality of high temperature Daqu[J]. LWT-Food Science and Technology, 2024, 194: 115801. DOI:10.1016/j.lwt.2024.115801.
[6] Xing Shuang, Shi Gailing, Lu Jun, et al. The discrepancy in amino acids within high-temperature Daqu: a novel metabolic marker for the quality evaluation of Daqu[J]. Food Chemistry, 2025, 470: 142645. DOI:10.1016/j.foodchem.2024.142645.
[7] 丁芳, 张原頔, 蒋英丽, 等. 不同等级高温大曲微生物群落和代谢物的特征分析[J]. 中国酿造, 2022, 41(11): 24-30. DOI:10.11882/j.issn.0254-5071.2022.11.005.
[8] Fan Guangsen, Fu Zhilei, Teng Chao, et al. Comprehensive analysis of different grades of roasted-sesame-like flavored Daqu[J]. International Journal of Food Properties, 2019, 22(1): 1205-1222. DOI:10.1080/10942912.2019.1635154.
[9] 向港兴, 陈莹琪, 沈毅, 等. 不同等级浓香型大曲微生物群落结构与理化性质的比较分析[J]. 食品科学, 2022, 43(18): 184-191.DOI:10.7506/spkx1002-6630-20211018-193.
[10] 任海伟, 李云帆, 阿丽米热·克热穆, 等. 不同等级金徽酒大曲贮藏过程中的细菌群落演替规律和组装机制[J]. 食品科学, 2025, 46(10):108-119. DOI:10.7506/spkx1002-6630-20240612-075.
[11] 蒋力力, 田露琴, 尚煜豪, 等. 不同种类高温大曲功能特性与成分差异比较[J]. 食品工业科技, 2025, 46(14): 362-370. DOI:10.13386/j.issn1002-0306.2024080244.
[12] 王高伟, 曹润洁, 陈双, 等. 采用顶空固相微萃取结合全二维气相色谱飞行时间质谱解析不同等级中高温大曲的挥发性组分差异特征[J]. 食品与发酵工业, 2025, 51(2): 285-292. DOI:10.13995/j.cnki.11-1802/ts.039024.
[13] He Muwen, Jin Yao, Zhou Rongqing, et al. Dynamic succession of microbial community in Nongxiangxing Daqu and microbial roles involved in flavor formation[J]. Food Research International, 2022, 159: 111559. DOI:10.1016/j.foodres.2022.111559.
[14] 田蕾, 李恩源, 关统伟, 等. 艾丁湖可培养嗜盐菌多样性及功能酶、抗菌活性筛选[J]. 微生物学通报, 2017, 44(11): 2575-2587. DOI:10.13344/j.microbiol.china.170046.
[15] 邹玉婷, 贺紫涵, 许碧涛, 等. 酒曲中产酶微生物的筛选及其对发酵米酒品质的影响[J]. 食品科学, 2024, 45(10): 108-117. DOI:10.7506/spkx1002-6630-20230922-208.
[16] 张明一, 孙庆杰, 杨洁. 芽孢杆菌蛋白酶在食品工业中的应用研究进展[J]. 食品工业科技, 2024, 45(13): 352-359. DOI:10.13386/j.issn1002-0306.2023070279.
[17] 张传丽, 李同祥, 杨凡, 等. 产淀粉酶和蛋白酶芽孢杆菌的筛选鉴定及其酶学性质分析[J]. 中国酿造, 2023, 42(12): 110-116.DOI:10.11882/j.issn.0254-5071.2023.12.018.
[18] 杨阳, 牛曼思, 戴秋涟, 等. 同一地区中温和高温大曲理化性质及真菌群落组成的比较研究[J]. 食品工业科技, 2023, 44(13): 150-159.DOI:10.13386/j.issn1002-0306.2022090313.
[19] 薄涛, 吕娜, 杨凯环, 等. 白酒大曲发酵过程中微生物群落及功能研究进展[J]. 食品科学, 2023, 44(19): 385-393. DOI:10.7506/spkx1002-6630-20221020-196.
[20] 赵慧君, 王玉荣, 侯强川, 等. 滨州地区高温和中温大曲真菌类群解析及其感官品质关联性分析[J]. 食品工业科技, 2025, 46(11): 163-173. DOI:10.13386/j.issn1002-0306.2024070282.
[21] 黄翠欣, 张桂容, 刘军, 等. 一株产纤维素酶菌株的分离纯化及其产酶性质研究[J]. 食品与发酵工业, 2023, 49(17): 37-43.DOI:10.13995/j.cnki.11-1802/ts.033847.
[22] Yang Liang, Fan Wenlai, Xu Yan. Effects of storage period and season on the microecological characteristics of Jiangxiangxing hightemperature Daqu[J]. Food Research International, 2024, 196: 115034.DOI:10.1016/j.foodres.2024.115034.
[23] Puchalska P, Crawford P A. Metabolic and signaling roles of ketone bodies in health and disease[J]. Annual Review of Nutrition, 2021, 41:49-77. DOI:10.1146/annurev-nutr-111120-111518.
[24] Tsuruta H, Yamahara K, Yasuda-Yamahara M, et al. Emerging pathophysiological roles of ketone bodies[J]. Physiology, 2024, 39(3):167-177. DOI:10.1152/physiol.00031.2023.
[25] Dąbek A, Wojtala M, Pirola L, et al. Modulation of cellular biochemistry, epigenetics and metabolomics by ketone bodies.implications of the ketogenic diet in the physiology of the organism and pathological states[J]. Nutrients, 2020, 12(3): 788. DOI:10.3390/nu12030788.
[26] 刘小改, 李洪媛, 周林艳, 等. 清香型大曲中产香细菌的分离筛选及鉴定[J]. 中国酿造, 2022, 41(5): 96-100. DOI:10.11882/j.issn.0254-5071.2022.05.017.
[27] 赵长青, 徐莎, 杨阳, 等. 浓香型白酒酿造大曲及糟醅中功能芽孢杆菌的筛选[J]. 食品工业科技, 2017, 38(7): 151-155. DOI:10.13386/j.issn1002-0306.2017.07.021.
[28] 罗莉, 李欣, 常煦, 等. 芽孢杆菌在中国白酒酿造中的应用机理研究进展[J]. 酿酒科技, 2019(1): 99-104. DOI:10.13746/j.njkj.2018267.
[29] 陶荣霞. 17株芽孢杆菌产酶特性及益生特性的研究[D]. 武汉: 华中农业大学, 2012. DOI:10.7666/d.Y2162741.
[30] Liu Yanbo, Fu Junying, Wang Linlin, et al. Isolation, identification,and whole-genome sequencing of high-yield protease bacteria from Daqu of Zhanggong Laojiu[J]. PLoS ONE, 2022, 17(4): e0264677.DOI:10.1371/journal.pone.0264677.
[31] 冯利芳, 李素琴, 刘鹏烩, 等. 清香大曲中性蛋白酶产生菌的分离鉴定及应用研究[J]. 食品科技, 2018, 43(11): 1-6.
[32] 颜建虹. 功能细菌应用于酱香白酒的酿造研究[D]. 贵阳: 贵州大学,2024. DOI:10.27047/d.cnki.ggudu.2024.004056.
[33] 王志山, 李苗, 陈文浩, 等. 一株芝麻香型白酒高温大曲细菌Q2B1的鉴定及其产酶活性研究[J]. 中国酿造, 2020, 39(2): 51-55.DOI:10.11882/j.issn.0254-5071.2020.02.009.
[34] 蒋泽元, 万义芳, 蒲驰中, 等. 高温大曲中高产淀粉酶和蛋白酶细菌的分离、鉴定及生物学特性研究[J]. 中国酿造, 2024, 43(2): 60-63.DOI:10.11882/j.issn.0254-5071.2024.02.010.
[35] 张璋, 赵腾飞, 李红霞, 等. 产淀粉酶芽孢杆菌的分离鉴定、高温驯化及酶学性质研究[J]. 中国酿造, 2023, 42(9): 79-84. DOI:10.11882/j.issn.0254-5071.2023.09.014.
[36] 张璋, 赵腾飞, 李红霞, 等. 产蛋白酶芽孢杆菌的筛选、耐酸性驯化及蛋白酶酶学性质分析[J]. 中国酿造, 2024, 43(1): 84-90.DOI:10.11882/j.issn.0254-5071.2024.01.013.
[37] 张颖. 酱香型白酒高产四甲基吡嗪芽孢杆菌的筛选及应用[D].天津: 天津科技大学, 2021. DOI:10.27359/d.cnki.gtqgu.2021.000148.
[38] 李兵, 张超, 王玉霞, 等. 白酒大曲功能微生物与酶系研究进展[J].中国酿造, 2019, 38(6): 7-12. DOI:10.11882/j.issn.0254-5071.2019.06.002.