凤香型白酒作为中国传统固态发酵蒸馏酒的重要代表,凭借“醇香典雅、甘润挺爽”的独特风格在12大香型中占据重要地位。西凤酒是以高粱为原料,以大麦、小麦、豌豆制成的中高温大曲为糖化发酵剂,经泥窖发酵、酒海贮存等工艺酿制而成,其品质形成依赖于大曲、酒醅与窖泥中微生物群落的协同代谢过程。微生物通过生长代谢活动合成丰富的酶系与代谢产物,这些物质是构成白酒风味体系的物质单元或直接前体,共同奠定白酒独特的香气风格[1],因此,微生物在白酒酿造中至关重要。
芽孢杆菌属(Bacillus)广泛存在于白酒生产环境和酿造过程中,包括空气、大曲、酒醅等。西凤酒酿造空气中的优势细菌种群为芽孢杆菌属,占空气细菌总数的63.2%[2];宏基因组技术进一步揭示其在凤香型大曲中的占比为7.69%~9.28%,是凤香型怀瓤大曲中的第4优势菌属[3];同时,芽孢杆菌也广泛存在于西凤酒酒醅中,乳杆菌属(Lactobacillus,相对丰度20.27%~98.44%)、糖多孢菌属(Saccharopolyspora,相对丰度0.23%~35.92%)、芽孢杆菌属(相对丰度0.45%~13.17%)及醋杆菌属(Acetobacter,相对丰度0.019%~1.24%)等构成其细菌核心菌群[4]。其中乳杆菌属、醋杆菌属等是影响酯类、酸类等风味形成的关键产酸微生物,但芽孢杆菌属作为酒醅中的优势属(相对丰度>1%),在酒醅复杂物质转化与风味贡献中的作用也不可忽视。研究发现,芽孢杆菌属参与淀粉水解、酸度调控等基础代谢过程,还能分泌多种酶,在微生物调控和风味形成中起着重要作用[5]。芽孢杆菌也是吡嗪类物质的主要产生菌,这类化合物具有类似坚果和烘焙的香气,在白酒的风味形成中不可或缺,并且是酱香型白酒酱香风味的主要贡献者[5-7]。然而,近年来针对凤香型白酒酒醅中芽孢杆菌的开发及其产酶与产香特性的研究仍显不足,限制了其在凤香型白酒品质提升中的定向应用。
基于此,本研究从凤香型白酒酒醅中分离可培养芽孢杆菌,对其进行形态观察、酶活性测定、分子生物学鉴定及理化特性表征(包括水分、酸度、糖化力、液化力和酯化力),并采用顶空固相微萃取-气相色谱-质谱(headspace solid-phase microextraction-gaschromatography-mass spectrometry,HS-SPME-GC-MS)技术对其模拟发酵产物中的挥发性风味物质进行测定,实现对凤香型白酒酒醅源芽孢杆菌资源的初步挖掘与功能初探,为充分利用细菌功能特性提升凤香型白酒品质提供理论依据和菌种资源。
1 材料与方法
1.1 材料与试剂
酒醅源自陕西西凤酒股份有限公司制酒车间圆窖期酒醅。
羧甲基纤维素钠(化学纯) 国药集团化学试剂有限公司;三丁酸甘油酯 山东星科化学有限公司;脱脂乳粉 上海源叶生物科技有限公司;乙酸香叶酯(纯度≥97.0%) 上海阿拉丁生化科技股份有限公司。
酪素培养基:蛋白胨10 g/L、牛肉膏3 g/L、琼脂20 g/L、NaCl 5 g/L,pH 7.0~7.2,115 ℃灭菌20 min,加入无菌脱脂奶粉4 g/L。
淀粉培养基:牛肉膏5 g/L、蛋白胨10 g/L、NaCl 5 g/L、可溶性淀粉2 g/L、琼脂20 g/L,pH 7.0,121 ℃灭菌20 min。
羧甲基纤维素钠培养基[8]:羧甲基纤维素钠10 g/L、KH2PO4 1 g/L、酵母浸粉10 g/L、蛋白胨10 g/L、NaCl 5 g/L、琼脂 20 g/L,pH 7.0~7.2,121 ℃灭菌20 min。
酯化酶培养基[9]:将营养琼脂培养基A(蛋白胨10 g/L、NaCl 5 g/L、牛肉粉 5 g/L、琼脂20 g/L)与乳化液B(3 g聚乙烯醇、100 mL水,加热至完全溶解,与三丁酸甘油酯按9∶1(V/V)混合)按9∶1(V/V)混合,pH 7.0~7.2,121 ℃灭菌20 min。
曲料培养基:大麦、小麦、豌豆按比例粉碎后加水调节水分质量分数为40%。
高粱汁培养基:取粉碎的高粱一份,加自来水5份,蒸锅上汽后蒸煮1~2 h,冷却至60 ℃以下,按使用说明加入淀粉酶液化,液化后补加60 ℃温水一份,加入原料质量5%的糖化酶(50 000 U),搅拌均匀,在60 ℃糖化3~4 h,用稀碘液测试至不显蓝色,再加热至90 ℃,用细纱布过滤,用手持式折射仪(糖度计)测量溶液的糖度并调整为12 °Brix。
1.2 仪器与设备
GCMS-QP2020 NX GC-MS仪 日本岛津公司;50/30 μm DVB/C-WR/PDMS萃取头 瑞思泰康科技(北京)有限公司;DB-WAX毛细管柱(60 mm×0.25 mm,0.25 μm) 安捷伦科技(中国)有限公司。
1.3 方法
1.3.1 芽孢杆菌的分离纯化
在无菌条件下取10 g酒醅置于90 mL无菌水,180 r/min 摇床振荡30 min,制备菌悬液。将菌悬液在80 ℃条件下水浴20 min,冷却后采用稀释平板涂布法,分别吸取10-3、 10-4、10-5稀释浓度菌悬液100 μL直接涂布于LB固体培养基上,每个稀释浓度3个重复,于37 ℃倒置培养24 h。从平板上挑取不同菌落形态的菌株进行逐次划线培养,直至纯化得到单菌落,编号后置于-80 ℃保存备用。
1.3.2 芽孢杆菌的鉴定
1.3.2.1 菌落形态观察
将已纯化的菌株涂布于LB固体培养基上,37 ℃倒置培养24 h,观察并记录菌落形态。
1.3.2.2 菌体显微形态观察
将分离纯化的菌株作涂片、干燥、固定,滴加3~5滴 孔雀绿染液,用木夹夹住载玻片在火焰上加热,使染液冒蒸汽但不沸腾,可及时添加少许染液避免蒸干,从染液冒蒸汽时开始计时,约加热4~5 min。倾去染液,待载玻片冷却后水洗至孔雀绿染液不再褪色为止;再用番红水溶液复染1 min,水洗至水为无色。待干燥后,置于油镜下观察,芽孢呈绿色、菌体呈红色。
1.3.3 芽孢杆菌产酶性能测定
通过透明圈直径(H)与菌落直径(C)的比值(HC值)评估芽孢杆菌产酶能力[10]。挑取活化后的单菌落点接至测定培养基,置于培养箱中37 ℃倒置培养24 h。其中,酪素培养基和酯化酶培养基直接测定透明圈直径与菌落直径;淀粉培养基需经碘液(1 g/100 mL)喷洒,羧甲基纤维素钠培养基需经刚果红溶液(1 g/100mL)喷洒,显色后测量。
1.3.4 芽孢杆菌模拟大曲发酵理化性能测定
将芽孢杆菌单菌落接种到YPD液体培养基后,摇瓶培养18~24 h制备种子液,将1.5 mL种子液接入150 g无菌曲料中培养7 d,以不接菌曲料作对照(CK)。理化指标及酶活性(包括水分、酸度、糖化力、液化力、酯化力)均参照QB/T 4257—2011《酿酒大曲通用分析方法》测定。
1.3.5 芽孢杆菌模拟发酵液挥发性风味物质测定
将芽孢杆菌以1%接种量接入高粱汁液态培养基培养7 d,取发酵液8 mL置于20 mL顶空瓶,并加入10 μL 50 μg/mL 乙酸香叶酯(内标)及3 g NaCl,每个样本3个重复。
HS-SPME条件:50 ℃预热5 min,萃取吸附45 min,250 ℃解吸5 min。
GC条件:进样口温度250 ℃,载气He(纯度>99.999%),流速2 mL/min。升温程序:50 ℃保持2 min,再以3 ℃/min升温至230 ℃,保持15 min。
MS条件:采用电子电离源,电离能量70 eV,离子源温度230 ℃,质量扫描范围m/z 30~350。
定性定量分析:通过NIST 2014质谱库比对检索(匹配度>80%)进行定性分析;采用内标法进行定量分析。
1.4 数据处理
使用Excel 2019进行数据处理,Origin 2023b绘制柱状图,在SPSS中采用单因素方差分析比较组间差异,进一步使用Tukey事后检验进行两两比较。在迈维代谢平台进行挥发性风味物质的主坐标分析(principal coordinates analysis,PCoA)。利用SIMCA-P 14.1软件进行正交偏最小二乘判别分析(orthogonal partial least squaresdiscriminant analysis,OPLS-DA),并计算变量投影重要性(variable importance in projection,VIP)值。
2 结果与分析
2.1 芽孢杆菌的分离及形态学特征
通过分离纯化从酒醅样品中共得到30株芽孢杆菌,其菌落形态特征见图1。将其进行芽孢染色镜检,结果见图2。由图1可知,30株分离菌形态各异,菌落多呈白色、乳白色、灰白色,半透明或不透明,圆形或不规则,边缘整齐或不整齐,多具皱褶或粗糙感等。由图2可知,菌体呈典型杆状,红色,两端钝圆或略直,单个、成对或短链状排列,芽孢呈绿色。
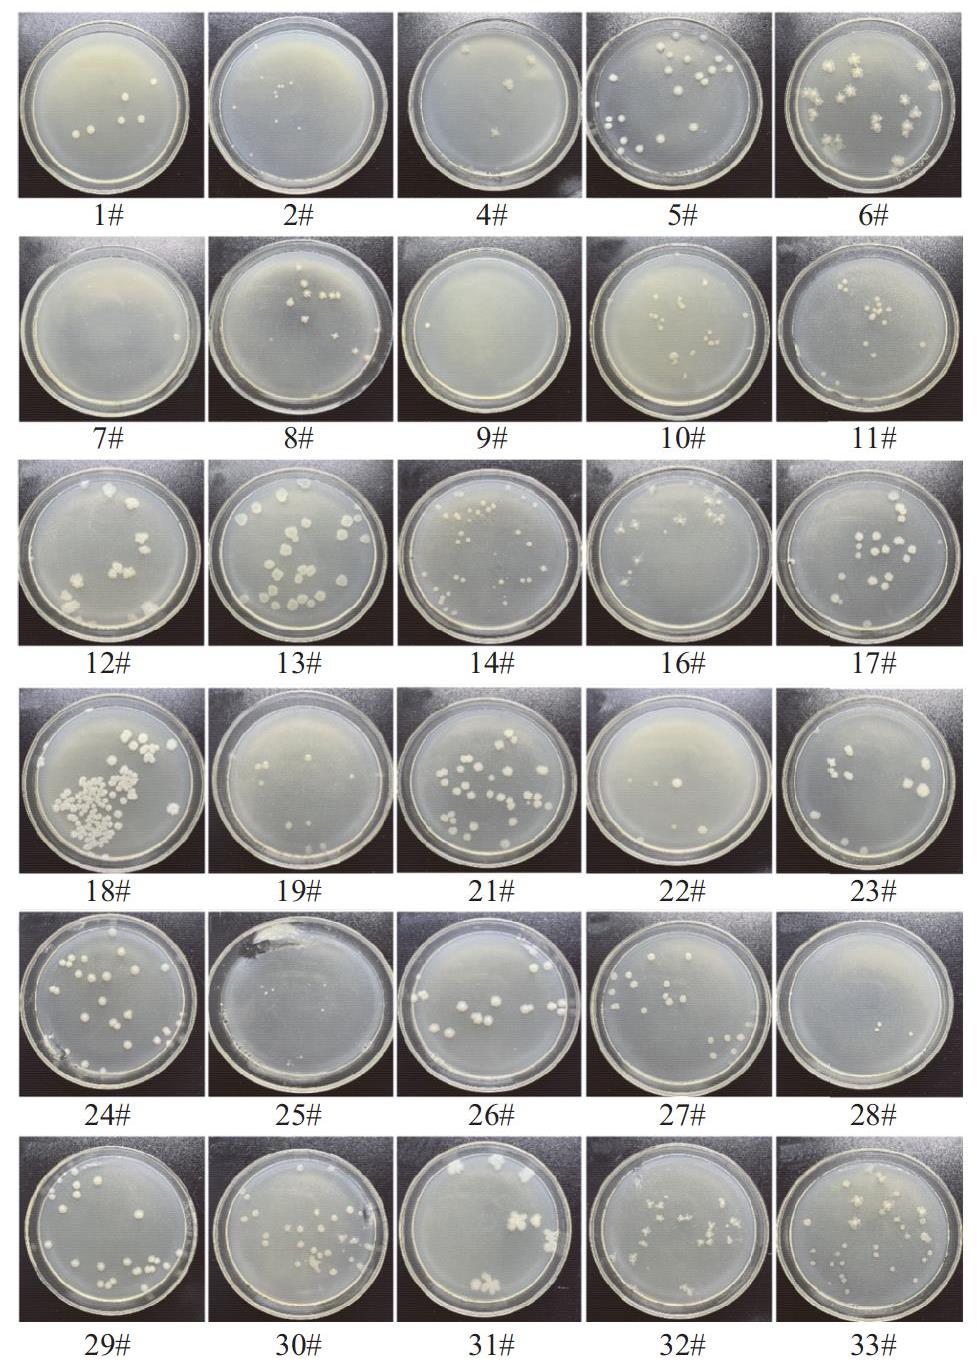
图1 30株芽孢杆菌菌落形态
Fig.1 Colony morphology of 30 Bacillus strains
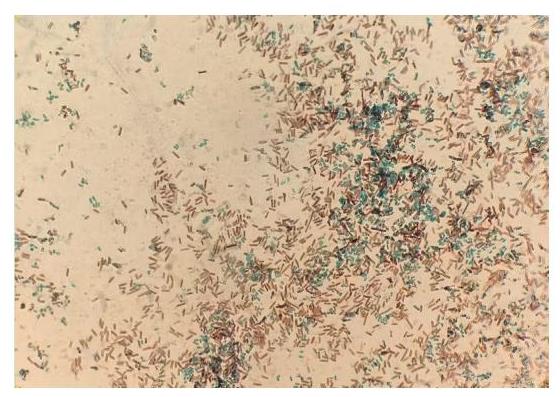
图2 酒醅来源芽孢杆菌染色镜检示意图(×100)
Fig.2 Schematic diagram (×100) of staining microscopic examination of Bacillus strains isolated from fermented grains
2.2 芽孢杆菌产酶性能
采用平板透明圈法对30株芽孢杆菌的产酶能力进行初筛,并分别根据淀粉酶、酯化酶、纤维素酶、蛋白酶活性进行排序。由表1可知,25株芽孢杆菌具有产淀粉酶能力,其中菌株16#、24#、9#的HC值较高,是降解淀粉的优势菌株。28株芽孢杆菌在三丁酸甘油酯平板上形成透明圈,说明这些菌株产生的酯化酶能够分解三丁酸甘油酯,其中菌株8#、25#、33#的HC值较高。29株芽孢杆菌可代谢产生纤维素酶,能够降解培养基中的羧甲基纤维素钠,其中菌株24#、18#、21#的HC值较高。25株芽孢杆菌产蛋白酶,能够分解蛋白质,其中菌株5#、18#、25#的HC值较高。因此,在30株芽孢杆菌中选取产淀粉酶、酯化酶、纤维素酶、蛋白酶能力较强的9株菌(分别为5#、8#、9#、16#、18#、21#、24#、25#、33#)为研究对象,进一步探究其在模拟培养体系中的产酶和产香特性,旨在筛选出具有良好应用潜能的芽孢杆菌菌株。
表1 芽孢杆菌产酶性能测定结果
Table1 Results of enzyme production performance for Bacillus strains
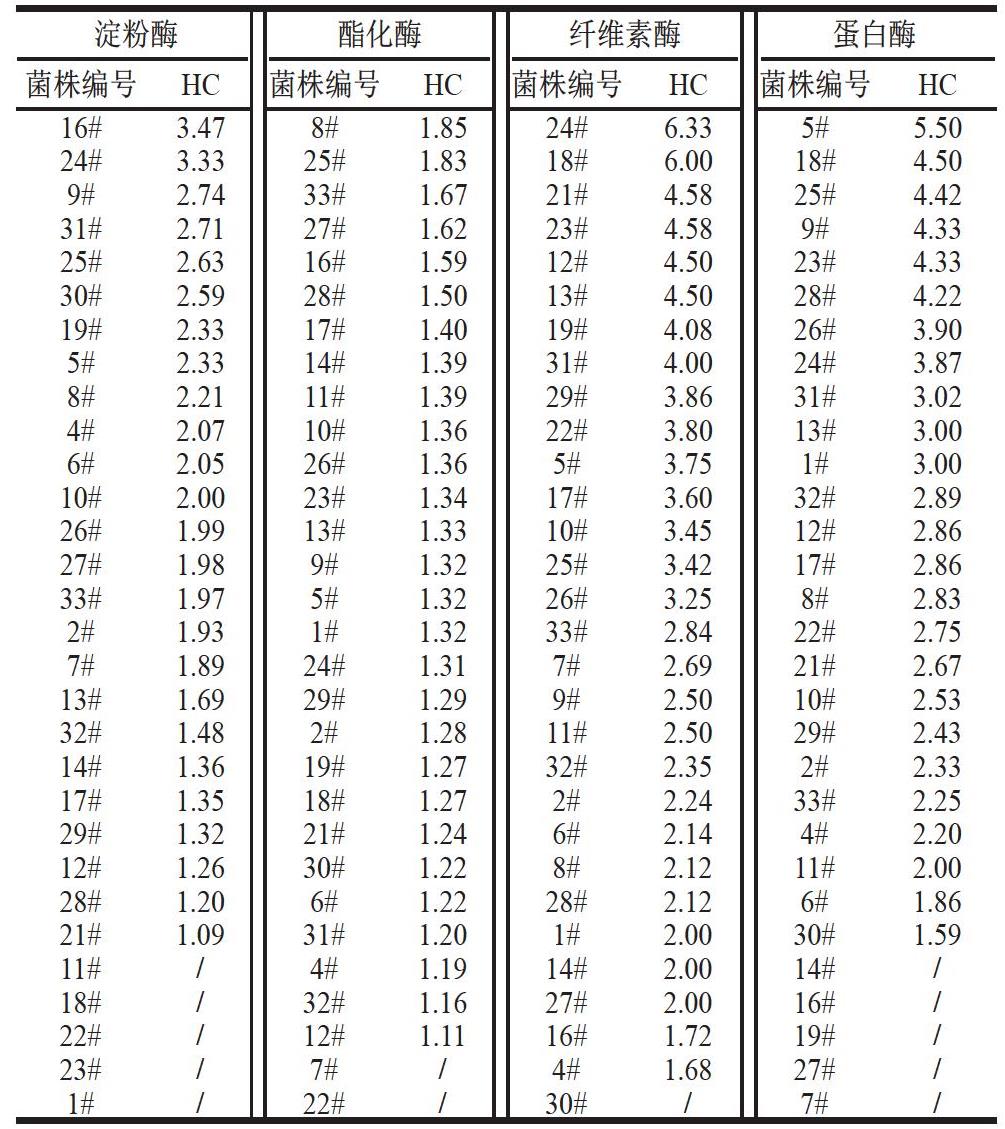
淀粉酶酯化酶纤维素酶蛋白酶菌株编号HC菌株编号HC菌株编号HC菌株编号HC16#3.47 8#1.85 24#6.33 5#5.50 24#3.33 25#1.83 18#6.00 18#4.50 9#2.74 33#1.67 21#4.58 25#4.42 31#2.71 27#1.62 23#4.58 9#4.33 25#2.63 16#1.59 12#4.50 23#4.33 30#2.59 28#1.50 13#4.50 28#4.22 19#2.33 17#1.40 19#4.08 26#3.90 5#2.33 14#1.39 31#4.00 24#3.87 8#2.21 11#1.39 29#3.86 31#3.02 4#2.07 10#1.36 22#3.80 13#3.00 6#2.05 26#1.36 5#3.75 1#3.00 10#2.00 23#1.34 17#3.60 32#2.89 26#1.99 13#1.33 10#3.45 12#2.86 27#1.98 9#1.32 25#3.42 17#2.86 33#1.97 5#1.32 26#3.25 8#2.83 2#1.93 1#1.32 33#2.84 22#2.75 7#1.89 24#1.31 7#2.69 21#2.67 13#1.69 29#1.29 9#2.50 10#2.53 32#1.48 2#1.28 11#2.50 29#2.43 14#1.36 19#1.27 32#2.35 2#2.33 17#1.35 18#1.27 2#2.24 33#2.25 29#1.32 21#1.24 6#2.14 4#2.20 12#1.26 30#1.22 8#2.12 11#2.00 28#1.20 6#1.22 28#2.12 6#1.86 21#1.09 31#1.20 1#2.00 30#1.59 11#/4#1.19 14#2.00 14#/18#/32#1.16 27#2.00 16#/22#/12#1.11 16#1.72 19#/23#/7#/4#1.68 27#/1#/22#/30#/7#/
注:/.不产酶。
2.3 芽孢杆菌的分子生物学鉴定
为进一步明确上述9株分离株的分类学地位,对其进行分子生物学鉴定。由表2可知,9株菌均为芽孢杆菌,分为3个种,包括地衣芽孢杆菌(B. licheniformis)、解淀粉芽孢杆菌(B. amyloliquefaciens)、贝莱斯芽孢杆菌(B. velezensis)。
表2 9株分离株的分子生物学鉴定结果
Table2 Molecular identification results of the nine isolated strains
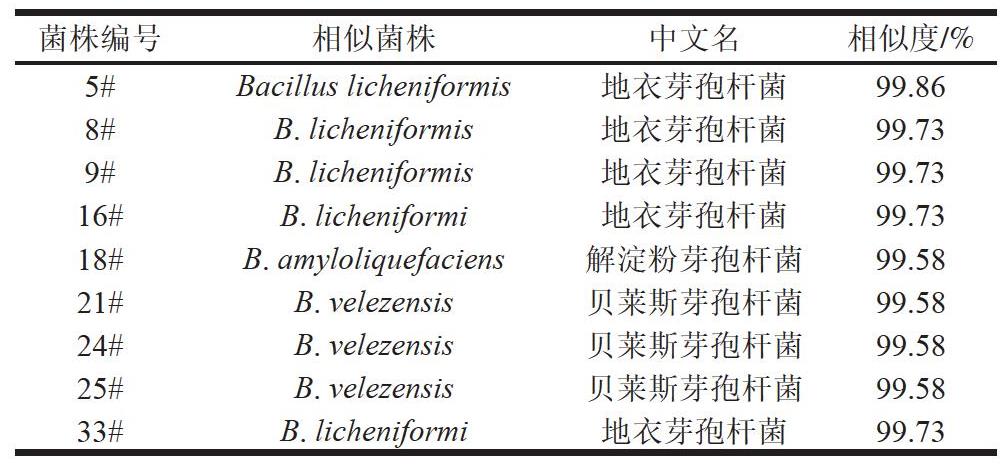
菌株编号相似菌株中文名相似度/%5#Bacillus licheniformis地衣芽孢杆菌99.868#B. licheniformis地衣芽孢杆菌99.739#B. licheniformis地衣芽孢杆菌99.7316#B. licheniformi地衣芽孢杆菌99.7318#B. amyloliquefaciens解淀粉芽孢杆菌99.5821#B. velezensis贝莱斯芽孢杆菌99.5824#B. velezensis贝莱斯芽孢杆菌99.5825#B. velezensis贝莱斯芽孢杆菌99.5833#B. licheniformi地衣芽孢杆菌99.73
2.4 芽孢杆菌模拟固态发酵理化性质
2.4.1 水分
在制曲工艺中,监测水分动态变化是判断发酵进程和微生物群落演替的重要依据。由图3可知,不同芽孢杆菌模拟固态发酵样品的水分质量分数为35.6%~46.0%,除25#外(35.6%),其余芽孢杆菌模拟固态发酵样品的水分质量分数均显著高于CK组(36.0%)(P<0.05)。其中16#样本的水分质量分数最高(46.0%),24#样本次之(45.5%)。水分是微生物生命活动不可或缺的基本要素,不同处理组的水分含量差异体现不同微生物群落通过其独特的代谢活动(如产生生物热和生成水分)以及与曲料之间的相互作用(如酶通过降解大分子释放自由水等)重新分配和改变曲料中水分形态和含量[11-12]。
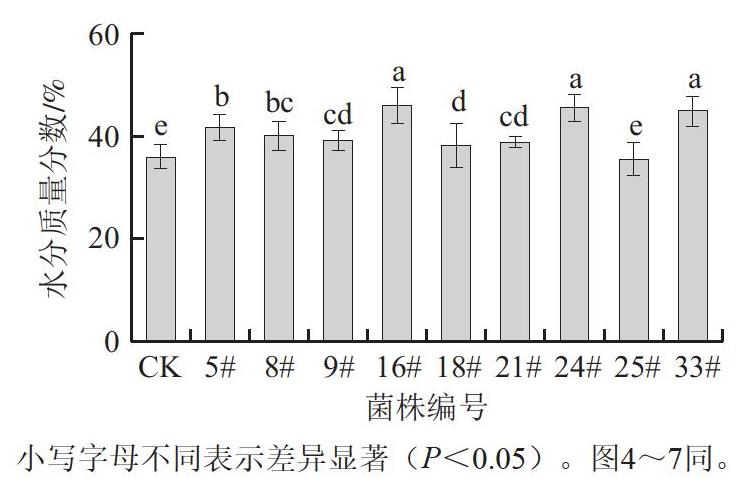
图3 不同芽孢杆菌模拟固态发酵水分含量
Fig.3 Moisture content of substrate inoculated with different Bacillus strains in simulated solid-state fermentation
2.4.2 酸度
酸度是衡量大曲中酸性物质总含量的一个关键指标,反映微生物代谢活动的产酸能力。由图4可知,菌株24#具有较强的产酸能力(0.75 mmol/10 g),接种后曲料酸度显著增加(P<0.05),是CK组(0.26 mmol/10 g)的2.89倍。菌株5#、8#、9#、16#、18#、21#、25#、33#接种曲料酸度与CK组无显著差异(P>0.05),未导致曲料酸度显著升高。芽孢杆菌具有耐高温特性,在大曲培养的高温阶段大量繁殖,分泌的蛋白酶等通过分解肽类物质产酸。酸类化合物既是白酒风味的重要组成成分,也是酯类物质的合成前体[13]。因此,一些产酸微生物的挖掘和应用研究对于白酒酿造至关重要。24#贝莱斯芽孢杆菌可作为潜在的产酸微生物用于丰富白酒的风味轮廓。
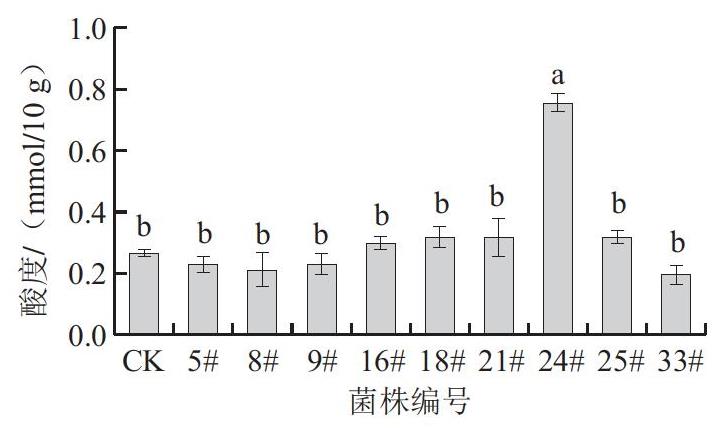
图4 不同芽孢杆菌的产酸能力
Fig.4 Acidproducing capacity of different Bacillus strains
2.4.3 液化力
在酿酒过程中,液化酶(α-淀粉酶)可将淀粉质原料水解为糊精、麦芽三糖、直链麦芽低聚糖及葡萄糖等微生物可直接利用的营养物质,有利于发酵的进行,对白酒风味的形成起到一定的促进作用。液化力是衡量微生物产液化酶能力的指标之一[14]。由图5可知,CK组与菌株8#和18#液化力为0 U,其他7株菌的液化力依次为9#> 24#>5#>25#>33#>16#>21#,其中菌株9#液化力最高,为0.6 U,其次为菌株24#,液化力为0.48 U。由此可见,不同菌种/株间产酶能力差异显著(P<0.05)。芽孢杆菌在不同香型大曲和酒醅中广泛存在,是白酒酿造中液化型淀粉酶的主要产生菌[15]。大曲中参与淀粉酶代谢的芽孢杆菌主要有枯草芽孢杆菌(B. subtilis)、 B. licheniformis、B. amyloliquefaciens、B. velezensis、蜡样芽孢杆菌(B. cereus)等[15]。根据其产酶性能,研究者从大曲中分离出芽孢杆菌进行强化生产,对提升大曲的液化力效果显著[16]。
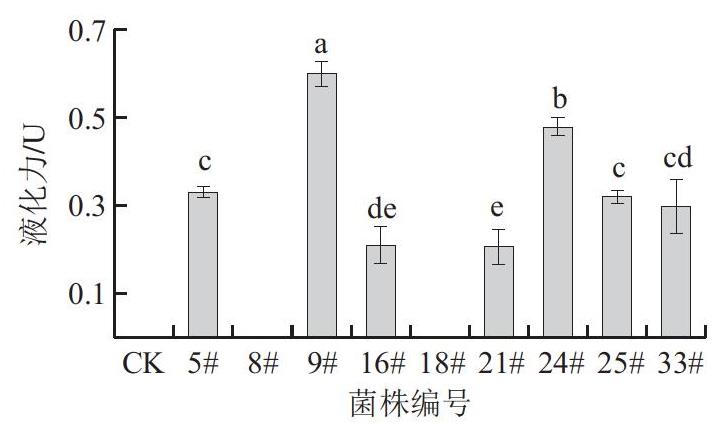
图5 不同芽孢杆菌的液化能力
Fig.5 Liquefying capacity of different Bacillus strains
2.4.4 糖化力
糖化酶能进一步将淀粉液化产物转化为葡萄糖,可有效解决部分微生物对非葡萄糖碳源利用率低或不能利用的问题,从而提高淀粉利用率。糖化力直接反映微生物产糖化酶的能力[17]。由图6可知,CK组糖化力为0 U,9株芽孢杆菌的糖化力依次为24#>9#>25#>5#>33#>16#>8#>21#>18#。其中,菌株24#的糖化力最高(252 U),说明其分泌的酶系具有高效分解淀粉生成可发酵糖(葡萄糖、麦芽糖)的强大潜力。其次是菌株9#(166 U),菌株18#糖化力最低(14 U)。结合液化酶分析结果可知,9#和24#表现出较强的液化酶和糖化酶分泌能力,可作为提升凤香型大曲液化力和糖化力的潜在功能菌株,纳入微生物菌种资源库。
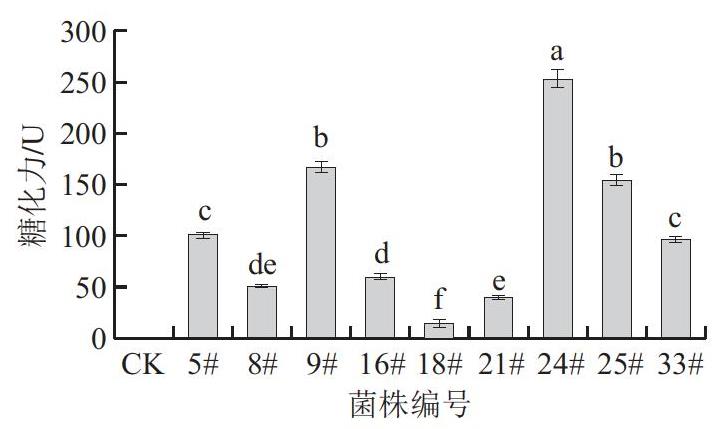
图6 不同芽孢杆菌的糖化能力
Fig.6 Saccharifying capacity of different Bacillus strains
2.4.5 酯化力
酯化力是微生物通过代谢活动分泌酯酶,催化酸类和醇类合成酯类物质的能力。由图7可知,芽孢杆菌具有一定的产酯酶能力,共有7株菌表现出酯化力(均低于20 U),其中16#酯化力最强(19.9 U),其他菌株的酯化力依次为5#(18.42 U)>21#(17.45 U)>24#(16.65 U)>8#(10.18 U)>25#(9.69 U)>9#(8.72 U)。霉菌、酵母菌是大曲中酯酶的主要生产菌,部分细菌也参与酯酶代谢,如芽孢杆菌、乳酸菌等。这类微生物可通过分泌酯酶和脂肪酶,催化酸与醇的酯化反应,形成酯类风味物质。特别地,芽孢杆菌在促进长链酯的合成方面具有优势[18-20]。此外,芽孢杆菌作为大曲中的优势物种,具有较高的丰度,在提升大曲酯化力方面发挥着重要作用。例如,在大曲中强化接种B. velezensis和B. subtilis后,大曲酯化力显著提升,同时大曲中酯类挥发性化合物的含量显著增加[16]。
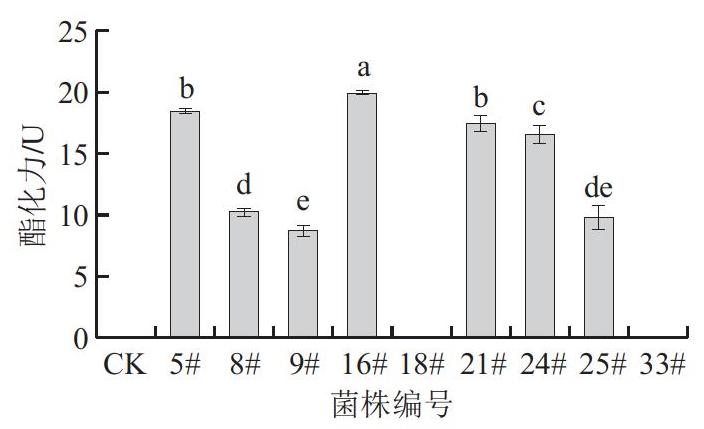
图7 不同芽孢杆菌的酯化能力
Fig.7 Esterifying capacity of different Bacillus strains
2.5 芽孢杆菌液态发酵产香特性
2.5.1 不同芽孢杆菌挥发性代谢产物PCoA
高粱是白酒酿造的主要原料,用其制备的高粱汁培养基能够为分离菌株提供与真实酿造环境相似的营养底物,在该体系中进行液态发酵可用于评估微生物在固态发酵中潜在的产香特性。基于Bray-Curtis距离对不同菌株代谢产物进行PCoA。如图8所示,2个主坐标轴累计解释92.69%的总体变异,表明不同菌株的代谢产物组成存在显著差异。9株菌根据其代谢特征可划分为3个类群,类群I(5#和8#)、类群Ⅱ(9#、16#、18#)、类群Ⅲ(21#、24#、25#、33#)。
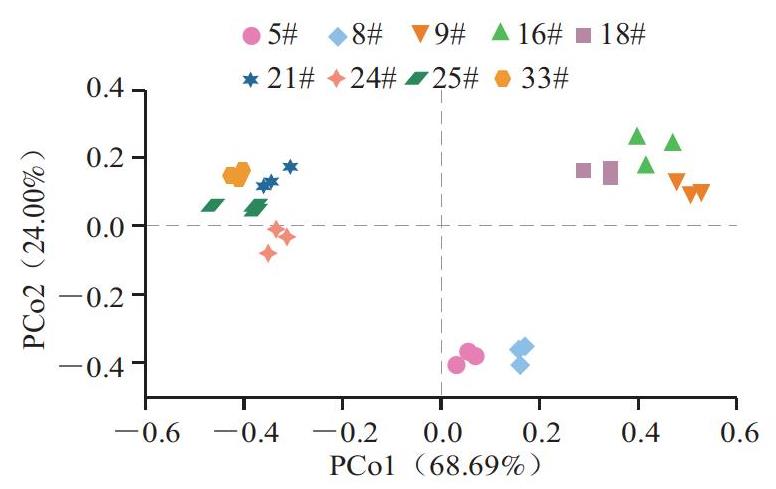
图8 基于挥发性代谢谱的不同芽孢杆菌发酵产香特性PCoA得分图
Fig.8 Principal coordinates analysis score plot of aroma-generating characteristics for different Bacillus strains based on volatile metabolic profiles
2.5.2 不同芽孢杆菌挥发性代谢产物组成差异
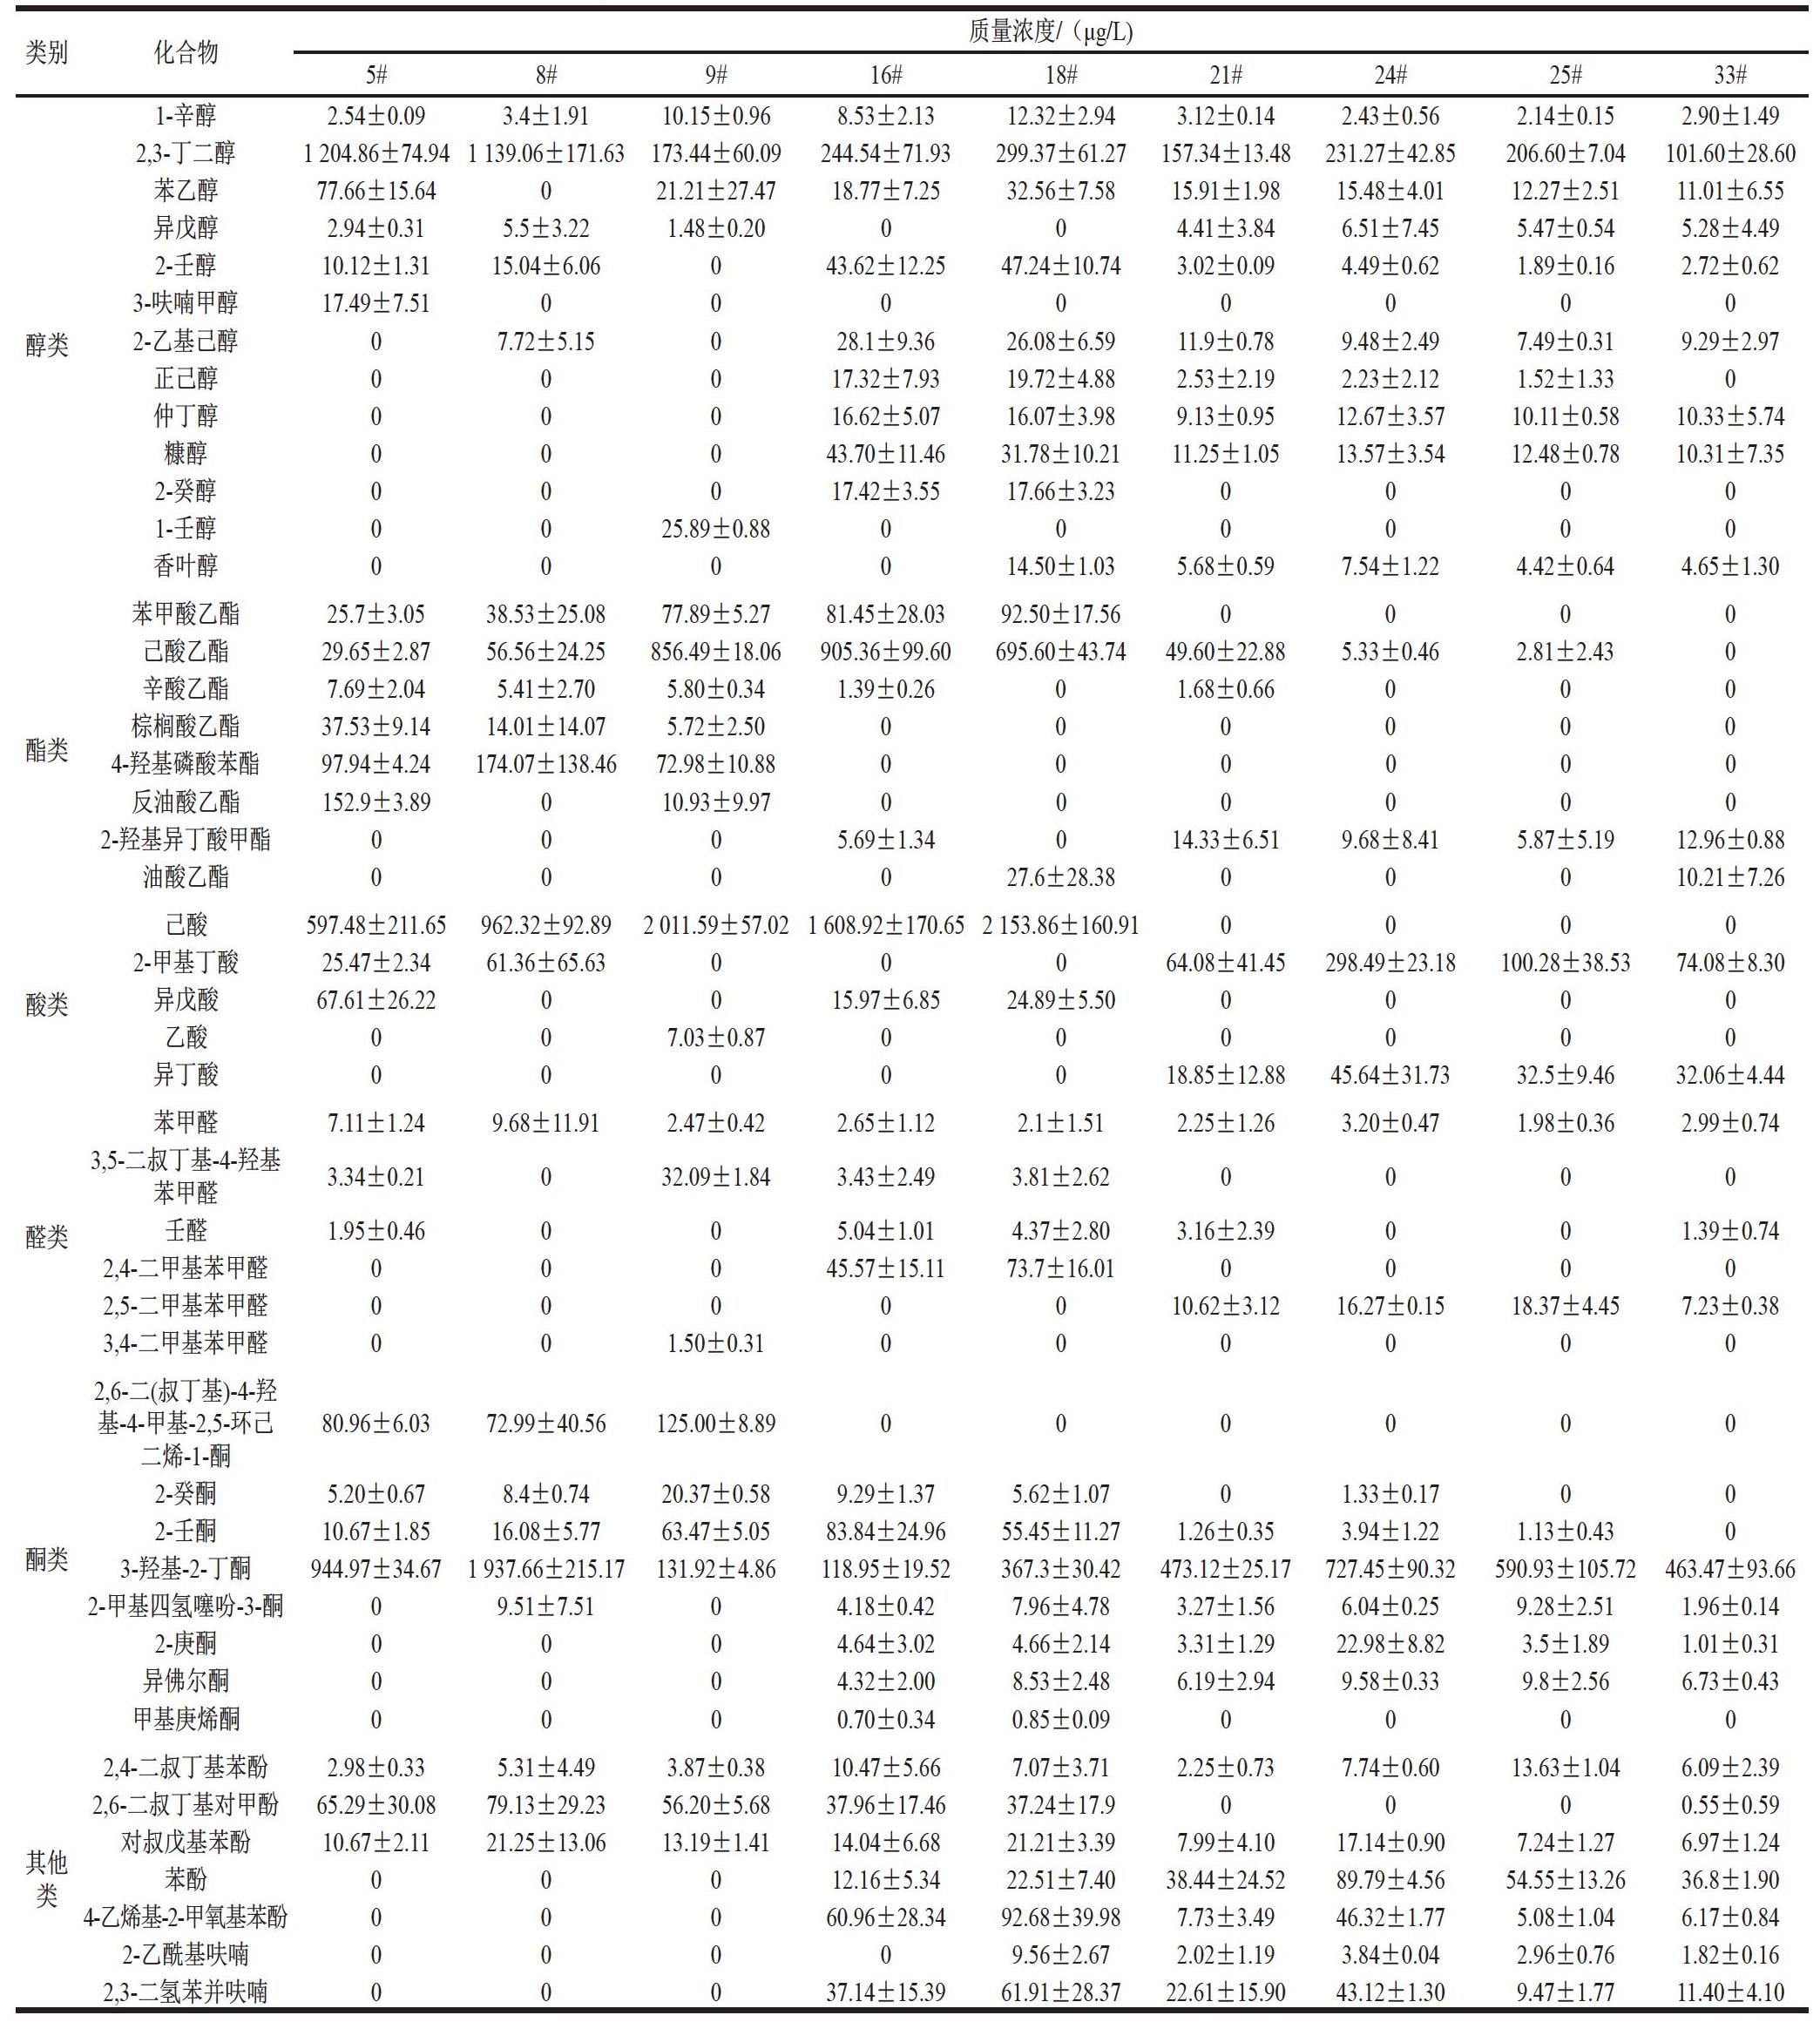
由表3可知,9株菌检测出共47种挥发性代谢物,包括13种醇类、8种酯类、5种酸类、2种呋喃、6种醛类、8种酮类和5种酚类。从菌株5#、8#、9#、16#、18#、21#、24#、25#、33#液体发酵产物中分别检测出25、21、23、32、33、29、28、27、27种挥发性风味物质。18#、21#、24#、25#芽孢杆菌发酵产物中醇类化合物最为丰富,总数为10种,其中21#、24#与25#合成的醇类种类完全一致。酯类物质的多样性则以5#、9#芽孢杆菌发酵产物最为丰富(均为6种),且种类组成相同。菌株5#发酵产物的酸类物质种类最多(3种)。此外,16#与18#芽孢杆菌发酵产物具有最多种类的醛酮类物质。
从总含量来看,菌株5#和8#产生的醇类化合物质量浓度最高,分别为(1 315.61±53.38)μg/L和(1 170.72±57.60)μg/L。其中2,3-丁二醇是造成差异的主要化合物,质量浓度分别为(1 204.86±74.94)μg/L和(1 139.06±171.63)μg/L。该物质在其他样本中的质量浓度在(101.6±28.6)~(299.37±61.27)μg/L之间。2,3-丁二醇呈现玫瑰与蜂蜜香气,且带有微甜风味。该化合物是白酒风味增强剂3-羟基-2-丁酮(乙偶姻)和2,3-丁二酮(双乙酰)的中间体,是白酒中的主要甜味物质,与白酒的甜润感、醇厚感及黏稠感的形成有关[21-22]。此外,该化合物是酱香型白酒特征化合物四甲基吡嗪合成的前体物质,对其特征风味的形成具有重要贡献。在凤香型白酒中,刘丽丽等[23]采用GC-MS和气相色谱-离子迁移谱技术均未检出该化合物,一方面可能是含量过低不易被检测到,另一方面可能是生物代谢途径流向吡嗪类化合物,徐岩[21]、Ren Jinmei[24]等的研究也佐证了这一代谢逻辑,上述研究均在凤香型白酒中检出多种吡嗪类化合物。在菌株5#发酵产物中,苯乙醇质量浓度高达(77.66±15.64)μg/L,该化合物和凤香型白酒的“蜜香”密切相关[23]。研究发现,酵母菌是白酒中苯乙醇的主要贡献者,其次还包括根霉属、曲霉属、乳杆菌属等[25]。本研究中分离的芽孢杆菌同样具有苯乙醇代谢能力,张傲杰[26]发现B. velezensis主要通过莽草酸途径合成苯乙醇,与本研究结果一致。异戊醇、正己醇、仲丁醇是白酒中典型的高级醇,其含量过高易造成人体饮后不适感。5#、8#、9#菌株所产高级醇总量处于较低水平,表明其在高级醇代谢方面的安全风险较低,是用于发酵控制的潜在优良菌株。
在酯类代谢产物中,己酸乙酯含量较高,菌株9#、16#、18#发酵产物中最为突出,质量浓度分别为(856.49±18.06)、(905.36±99.60)、(695.6±43.74)μg/L,三者贡献发酵产物中绝大部分酯类化合物。其他菌株发酵产物中己酸乙酯质量浓度为0~(56.56±24.25)μg/L。己酸乙酯可赋予酒体果香特征,是凤香型白酒“酒香”的最大贡献者[27]。菌株5#、9#发酵产物中酯类化合物种类最多,包括苯甲酸乙酯、辛酸乙酯、棕榈酸乙酯、反油酸乙酯等。这些乙酯类化合物通常具有果香、花香、脂肪香气,是白酒风味的重要构成元素。油酸乙酯作为对基酒具有重要修饰作用的化合物,只在菌株18#和33#发酵产物中检出。
酸类代谢产物中,己酸质量浓度最高,菌株9#((2 011.59±57.02)μg/L)、16#((1 608.92±170.65)μg/L)、18#((2 153.86±160.91)μg/L)的产己酸能力最突出。研究表明,白酒中己酸乙酯的来源有2种途径,一是微生物体内直接合成,二是其分泌的酯酶催化己酸和乙醇发生酯化反应[28]。不同样本中己酸和己酸乙酯的含量变化相似,说明这些微生物不仅具有己酸合成能力,同时具有酯化功能,在这两种化合物的合成中具有潜在优势。
分离菌株在酮类化合物的代谢中贡献明显,菌株5#和8#表现最为突出,这主要由3-羟基-2-丁酮贡献,质量浓度分别为(944.97±34.67)μg/L和(1 937.66±215.17)μg/L。3-羟基-2-丁酮具有甜香、奶油香气,在贮存5年以上的浓香型白酒中含量明显增加(4.35 mg/L)[29],在凤香型白酒中其质量浓度仅为0.03 mg/L,并且在新产基酒中未检测到[23]。这可能和两种香型白酒大曲中芽孢杆菌的丰度差异有关。
表3 9株芽孢杆菌挥发性代谢产物组成与含量
Table3 Composition and content of volatile metabolites from nine Bacillus strains
类别化合物质量浓度/(μg/L)5#8#9#16#18#21#24#25#33#1-辛醇2.54±0.093.4±1.9110.15±0.968.53±2.1312.32±2.943.12±0.142.43±0.562.14±0.152.90±1.492,3-丁二醇1 204.86±74.941 139.06±171.63173.44±60.09244.54±71.93299.37±61.27157.34±13.48231.27±42.85206.60±7.04101.60±28.60苯乙醇77.66±15.64021.21±27.4718.77±7.2532.56±7.5815.91±1.9815.48±4.0112.27±2.5111.01±6.55异戊醇2.94±0.315.5±3.221.48±0.20004.41±3.846.51±7.455.47±0.545.28±4.492-壬醇10.12±1.3115.04±6.06043.62±12.2547.24±10.743.02±0.094.49±0.621.89±0.162.72±0.623-呋喃甲醇17.49±7.5100000000醇类2-乙基己醇07.72±5.15028.1±9.3626.08±6.5911.9±0.789.48±2.497.49±0.319.29±2.97正己醇00017.32±7.9319.72±4.882.53±2.192.23±2.121.52±1.330仲丁醇00016.62±5.0716.07±3.989.13±0.9512.67±3.5710.11±0.5810.33±5.74糠醇00043.70±11.4631.78±10.2111.25±1.0513.57±3.5412.48±0.7810.31±7.352-癸醇00017.42±3.5517.66±3.2300001-壬醇0025.89±0.88000000香叶醇000014.50±1.035.68±0.597.54±1.224.42±0.644.65±1.30苯甲酸乙酯25.7±3.0538.53±25.0877.89±5.2781.45±28.0392.50±17.560000己酸乙酯29.65±2.8756.56±24.25856.49±18.06905.36±99.60695.60±43.7449.60±22.885.33±0.462.81±2.430辛酸乙酯7.69±2.045.41±2.705.80±0.341.39±0.2601.68±0.66000酯类4-羟棕基榈磷酸酸乙苯酯酯9377..9543±±49..214417144..0071±±11438.0.476725..7928±±210.5.088000000000000反油酸乙酯152.9±3.89010.93±9.970000002-羟基异丁酸甲酯0005.69±1.34014.33±6.519.68±8.415.87±5.1912.96±0.88油酸乙酯000027.6±28.3800010.21±7.26己酸597.48±211.65962.32±92.892 011.59±57.021 608.92±170.652 153.86±160.9100002-甲基丁酸25.47±2.3461.36±65.6300064.08±41.45298.49±23.18100.28±38.5374.08±8.30酸类异戊酸67.61±26.220015.97±6.8524.89±5.500000乙酸007.03±0.87000000异丁酸0000018.85±12.8845.64±31.7332.5±9.4632.06±4.44苯甲醛7.11±1.249.68±11.912.47±0.422.65±1.122.1±1.512.25±1.263.20±0.471.98±0.362.99±0.743,5-二叔苯丁甲基醛-4-羟基3.34±0.21032.09±1.843.43±2.493.81±2.620000醛类壬醛1.95±0.46005.04±1.014.37±2.803.16±2.39001.39±0.742,4-二甲基苯甲醛00045.57±15.1173.7±16.0100002,5-二甲基苯甲醛0000010.62±3.1216.27±0.1518.37±4.457.23±0.383,4-二甲基苯甲醛001.50±0.310000002,6-二(叔丁基)-4-羟基-4-甲基-2,5-环己80.96±6.0372.99±40.56125.00±8.89000000二烯-1-酮2-癸酮5.20±0.678.4±0.7420.37±0.589.29±1.375.62±1.0701.33±0.17002-壬酮10.67±1.8516.08±5.7763.47±5.0583.84±24.9655.45±11.271.26±0.353.94±1.221.13±0.430酮类3-羟基-2-丁酮944.97±34.671 937.66±215.17131.92±4.86118.95±19.52367.3±30.42473.12±25.17727.45±90.32590.93±105.72463.47±93.662-甲基四氢噻吩-3-酮09.51±7.5104.18±0.427.96±4.783.27±1.566.04±0.259.28±2.511.96±0.142-庚酮0004.64±3.024.66±2.143.31±1.2922.98±8.823.5±1.891.01±0.31异佛尔酮0004.32±2.008.53±2.486.19±2.949.58±0.339.8±2.566.73±0.43甲基庚烯酮0000.70±0.340.85±0.0900002,4-二叔丁基苯酚2.98±0.335.31±4.493.87±0.3810.47±5.667.07±3.712.25±0.737.74±0.6013.63±1.046.09±2.392,6-二叔丁基对甲酚65.29±30.0879.13±29.2356.20±5.6837.96±17.4637.24±17.90000.55±0.59其类他4-乙烯对基叔-戊苯2-酚基甲氧苯基酚苯酚10.6700±2.1121.25±0013.0613.1900±1.41611042.9..01646±±±2658..36.3484922221.6..25811±±±3739..43.90983778...479439±±±4234..41.0952481796...731429±±±401...7957065475...205458±±±1113..20.42763666..91.778±±±011...2984402-乙酰基呋喃00009.56±2.672.02±1.193.84±0.042.96±0.761.82±0.162,3-二氢苯并呋喃00037.14±15.3961.91±28.3722.61±15.9043.12±1.309.47±1.7711.40±4.10
2.5.3 不同芽孢杆菌的差异代谢物筛选
在OPLS-DA模型中,通常将VIP>1的化合物认为是具有显著贡献的潜在生物标志物。如图9所示,己酸、3-羟基-2-丁酮、2,3-丁二醇、己酸乙酯、2-甲基丁酸、2,4-二叔丁基苯酚、反油酸乙酯、油酸乙酯、2,6-二(叔丁基)-4-羟基-4-甲基-2,5-环己二烯-1-酮、2,3-二氢苯并呋喃(VIP>1)是不同组间的关键差异化合物。其中己酸、3-羟基-2-丁酮、2,3-丁二醇、己酸乙酯、反油酸乙酯、油酸乙酯与2.5.2节中揭示的挥发性风味物质代谢特征一致。2-甲基丁酸是浓香型白酒中的重要风味成分[30],但在凤香型白酒中未见检出。2,4-二叔丁基苯酚、2,6-二(叔丁基)-4-羟基-4-甲基-2,5-环己二烯-1-酮、2,3-二氢苯并呋喃在白酒风味物质报道中均较为少见,其风味贡献和形成机制尚不明确。
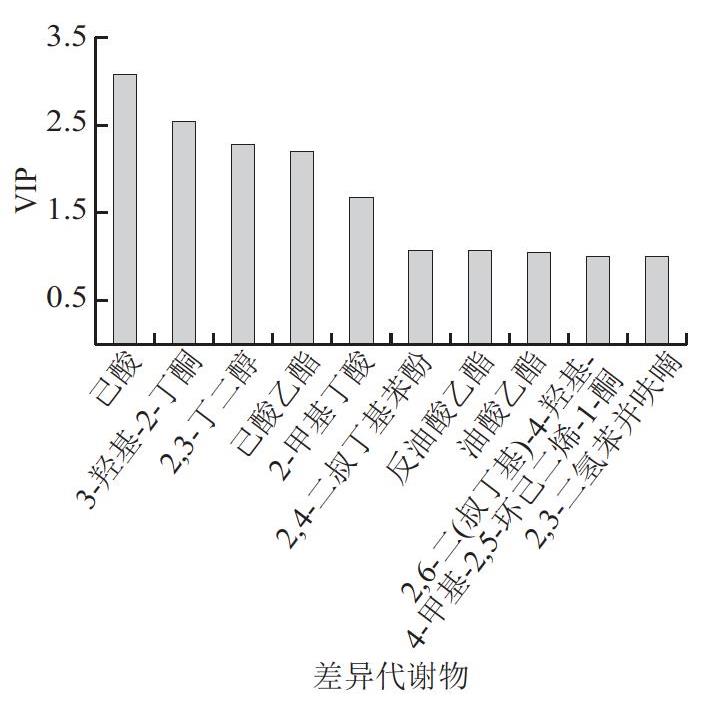
图9 基于OPLS-DA模型的不同芽孢杆菌差异代谢物VIP值
Fig.9 Variable importance in projection values of differential metabolites from different Bacillus strains based on the orthogonal partial least squares‑discriminant analysis model
3 结 论
从凤香型白酒酒醅中分离芽孢杆菌,对其进行形态学观察、产酶和产香性能分析,并对关键菌株进行分子生物学鉴定。结果表明,9株分离芽孢杆菌(5#、8#、9#、16#、18#、21#、24#、25#、33#)具有较强的产淀粉酶、蛋白酶、纤维素酶、酯化酶能力。在大曲模拟发酵体系中,24#贝莱斯芽孢杆菌在糖化力(252 U)、液化力(0.48 U)及酯化力(16.65 U)方面综合表现优异,显示出良好的酿造适用性。在风味代谢方面,这些分离株在2,3-丁二醇和3-羟基-2-丁酮合成中具有显著优势,可赋予酒体典型的奶油甜香特征。其中5#地衣芽孢杆菌的2,3-丁二醇产量最高,达(1 204.86±74.94)μg/L, 8#地衣芽孢杆菌的3-羟基-2-丁酮产量最高,为(1 937.66± 215.17)μg/L。此外,部分菌株在己酸乙酯(16#地衣芽孢杆菌,(905.36±99.6)μg/L)和己酸(18#解淀粉芽孢杆菌,(2 153.86±160.91)μg/L)合成方面亦表现突出。本研究基于产酶与产香能力对芽孢杆菌资源进行功能初探,明确了其在凤香型白酒酿造过程中的潜在功能贡献。研究成果可为进一步开展功能菌株的定向强化与应用提供理论依据,为通过微生物策略提升白酒风味品质提供支撑。
[1] 李景辉, 郭莹, 张颖, 等. 高产酯菌株的筛选及其在酱香型白酒堆积发酵中的应用[J]. 中国酿造, 2021, 40(10): 168-173. DOI:10.11882/j.issn.0254-5071.2021.10.028.
[2] 徐晨, 白莉圆, 张艳, 等. 西凤酒制酒车间环境微生物分布特征研究[J]. 酿酒科技, 2022(1): 28-35. DOI:10.13746/j.njkj.2021190.
[3] Ying Hang, Yang Jie, Yu Liyue, et al. Metagenomics and GC-IMS analyses reveal microbial community differences and flavor characteristics among three types of Feng flavor Daqu[J].Food Research International, 2025, 221: 117551. DOI:10.1016/j.foodres.2025.117551.
[4] Jin Chengyong, Jin Guangyuan, Jin Juan, et al. The impact of mechanized and traditional processes on microbial diversity and volatile flavor compound formation during Xifeng Baijiu fermentation[J]. Foods, 2024, 13(22): 3710. DOI:10.3390/foods13223710.
[5] 孙亮霞, 林一心, 王生艳, 等. 白酒大曲中产香功能微生物的应用研究进展[J]. 中国酿造, 2024, 43(9): 21-28. DOI:10.11882/j.issn.0254-5071.2024.09.004.
[6] 唐佳代, 王龙, 赵益梅, 等. 多组学解析酱香型大曲空间异质性[J].食品科学, 2025, 46(16): 126-134. DOI:10.7506/spkx1002-6630-20250221-094.
[7] 姚霞, 明红梅, 周健, 等. 十个浓香型大曲挥发性风味物质的主成分分析[J]. 食品研究与开发, 2015, 36(14): 15-20. DOI:10.3969/j.issn.1005-6521.2015.14.005.
[8] 尹杨燕, 黎春玲, 俸祥仁, 等. 一株高产纤维素酶乳酸菌的分离与鉴定[J]. 湖北农业科学, 2025, 64(9): 157-161. DOI:10.14088/j.cnki.issn0439-8114.2025.09.025.
[9] 罗浩, 但俊林, 蔡岭肸, 等. 产酯酶和酯类化合物的粟酒裂殖酵母筛选及应用[J]. 食品研究与开发, 2025, 46(6): 152-160. DOI:10.12161/j.issn.1005-6521.2025.06.020.
[10] 李晨瑶. 贝莱斯芽孢杆菌在酱香型白酒生产中的作用[D]. 天津:天津科技大学, 2023. DOI:10.27359/d.cnki.gtqgu.2023.001141.
[11] 谭壹, 晏培, 任婷婷, 等. 酱香大曲母曲与大曲的理化指标和风味特征差异性分析[J]. 中国酿造, 2025, 44(9): 34-39. DOI:10.11882/j.issn.0254-5071.2025.09.006.
[12] 张淼, 黄怡, 蔡文超, 等. 宣城地区中温大曲品质及微生物多样性解析[J]. 食品与发酵工业, 2026, 52(6): 271-278. DOI:10.13995/j.cnki.11-1802/ts.043636.
[13] 王瑞杰, 张钰婧, 焦剑, 等. 添加小麦对山西老陈醋大曲制备过程中微生物菌群、酶活及风味的影响[J]. 中国酿造, 2025, 44(10): 260-267. DOI:10.11882/j.issn.0254-5071.2025.10.037.
[14] 杨阳, 马吾霞, 刘晓彤, 等. 大曲糖化剂在酿酒工业中的应用及其糖化功能研究进展[J]. 微生物学报, 2025, 65(10): 4357-4373.DOI:10.13343/j.cnki.wsxb.20250241.
[15] 鲁倩, 唐平, 王晓丹, 等. 白酒酿造过程中芽孢杆菌的研究进展[J]. 中国酿造, 2025, 44(5): 26-31. DOI:10.11882/j.issn.0254-5071.2025.05.005.
[16] 时伟, 郑红梅, 黄婷, 等. 中国白酒酿造核心微生物相互作用研究进展[J]. 食品与发酵工业, 2025, 51(20): 427-436. DOI:10.13995/j.cnki.11-1802/ts.043278.
[17] 张坤坤, 范文来, 徐岩, 等. 基于理化、酶活力和不挥发化合物解析不同等级高温大曲异质性[J]. 食品与发酵工业, 2026, 52(8): 1-8.DOI:10.13995/j.cnki.11-1802/ts.044122.
[18] 张佳懿, 马丽, 张盼, 等. 酿酒微生物对酒类风味的影响综述[J].农产品加工, 2025(16): 109-113. DOI:10.16693/j.cnki.1671-9646(X).2025.16.020.
[19] 赖谦, 刘世艳, 王镇, 等. 微生物发酵对赶黄草-葛根-枳椇子复方功能特性及风味的影响[J]. 食品工业科技, 2026, 47(18): 453-464.DOI:10.13386/j.issn1002-0306.2025060234.
[20] 曹丹, 吕嘉枥, 刘翠, 等. 白酒酿造用大曲中真菌研究现状及进展[J].食品科学, 2025, 46(19): 299-309. DOI:10.7506/spkx1002-6630-20250325-195.
[21] 徐岩, 吴群, 范文来, 等. 中国白酒中四甲基吡嗪的微生物产生途径的发现与证实[J]. 酿酒科技, 2011(7): 37-40.
[22] 赖昱成, 郭红莉, 张娇娇, 等. 不同年份酱香型白酒挥发性风味化合物分析[J]. 中国酿造, 2025, 44(4): 144-150. DOI:10.11882/j.issn.0254-5071.2025.04.021.
[23] 刘丽丽, 杨辉, 荆雄, 等. 基于GC-MS和GC-IMS技术分析凤香型年份基酒挥发性成分[J]. 食品工业科技, 2022, 43(23): 318-327.DOI:10.13386/j.issn1002-0306.2022040054.
[24] Ren Jinmei, Li Zhijian, Jia Wei. Key aroma differences in volatile compounds of aged Feng-flavored Baijiu determined using sensory descriptive analysis and GC × GC-TOFMS[J]. Foods, 2024, 13(10):1504. DOI:10.3390/foods13101504.
[25] 张才英, 李云成, 郑佳, 等. 白酒中高级醇产生机制及调控策略研究 进展[J]. 食品工业科技, 2026, 47(16): 493-504. DOI:10.13386/j.issn1002-0306.2025060288.
[26] 张傲杰. 玫瑰香特征成分固态发酵合成技术研究与应用[D]. 杨凌:西北农林科技大学, 2025. DOI:10.27409/d.cnki.gxbnu.2025.002002.
[27] 张亚芳, 凤旭凯, 董飘然, 等. 基于GC-O-MS和OAV法鉴定西凤酒中关键香气成分[J]. 酿酒, 2024, 51(5): 69-73. DOI:10.3969/j.issn.1002-8110.2024.05.021.
[28] 张茹. 产己酸乙酯微生物的筛选及在浓香型白酒酿造中的应用[D].石家庄: 河北科技大学, 2024. DOI:10.27107/d.cnki.ghbku.2024.000811.
[29] 胥佳, 何朝玖, 马浩, 等. 不同贮存年份的五粮浓香型白酒挥发性风味物质对比分析[J]. 食品与发酵科技, 2023, 59(3): 23-29.DOI:10.3969/j.issn.1674-506X.2023.03-004.
[30] 葛怀锐, 赵赟, 陈非凡, 等. 功能微生物组对浓香型白酒上层酒醅发酵微生物群落及挥发性风味物质的影响[J]. 微生物学通报, 2026,53(1): 402-419. DOI:10.13344/j.microbiol.china.250444.