纤维素是由D-葡萄糖通过β-1,4-糖苷键结合而成的一种多糖,是自然界中分布最广、含量最丰富的碳水化合物,全球每年生成的干物质中纤维素和半纤维素的总量约850亿 t[1]。目前,纤维素降解的方法主要有物理法、化学法、生物法及联合法[2-4]。其中生物酶解法是实现高效、无污染水解纤维素的有效方法[5-7]。纤维素酶是一类复合酶,主要由内切葡聚糖酶、外切葡聚糖酶、β-葡萄糖苷酶等组成,其广泛应用于纺织、造纸、饲料、食品及生物燃料等行业[8-10]。在酱油酿造过程中添加纤维素酶可以改善酱油风味和品质,提高酱油得率[11-12];采用纤维素酶产生菌发酵饲料可提升其适口性、营养价值及消化性[13-14];饮料生产中使用纤维素酶可改善产品风味、体系稳定性,提高营养价值和产率等[15-16]。纤维素酶可破坏纤维素、半纤维素、木质素分子间的紧密结构,因此,纤维素酶解法在纤维素降解方面已逐步占据主导地位[17]。但现有纤维素酶的酶学性质、酶系组成、生产周期和成本制约了其工业化应用。因此,高产纤维素酶菌株的选育仍是纤维素酶研究的重点方向。
在发酵工业领域,筛选和培育优良菌株通常依赖于自然筛选或人工诱变育种2种主要途径。诱变育种包括物理诱变、化学诱变以及复合诱变。其中,紫外诱变是一种使用最早、沿用最久、效果明显的物理诱变法,因其设备简单、操作方便、诱变频率高等优点被广泛应用[18]。紫外线的主要作用是使同链DNA中相邻胸腺嘧啶间形成共价结合的胸腺嘧啶二聚体,它的出现会减弱双链间氢键的作用,并引起双链结构扭曲变形,阻碍碱基间的正常配对,从而促使菌株发生遗传变异[19-21]。冯伟等[22]以堆放秸秆和果树下的土壤为实验材料,筛选得到12株产纤维素酶的菌株,经紫外诱变育种,突变株的羧甲基纤维素酶(carboxymethyl cellulase,CMCase)活力较出发菌株提高57.4%。霉菌也是产生纤维素酶的主要微生物,采用紫外诱变处理黄曲霉(Aspergillus flavus)和烟曲霉(Aspergillus fumigatus),与原始菌株相比,突变株在稻草秸秆为碳源的培养基中发酵产酶能力有较大幅度提升[17]。黄晓梅等[23]利用紫外线和NaNO2复合诱变技术处理绿色木霉(Trichoderma viride),获得了纤维素酶活力比原始菌株提高32.24%的突变株且产酶稳定。综上,通过紫外诱变选育技术提升纤维素酶活力具有可 行性。
本研究采用碘液染色法从腐烂秸秆和腐殖土中分离获得产纤维素酶菌株,对其进行形态学观察、生理生化实验及分子生物学鉴定,并采用紫外诱变育种技术选育高产纤维素酶的优良菌株,研究其所产纤维素酶的酶学特性,以期为纤维素酶研究及其工业化生产提供菌种资源。
1 材料与方法
1.1 材料与试剂
分离菌株所用土壤样品来自齐齐哈尔市郊区腐烂秸秆和腐殖质土;玉米麸皮粉购自齐齐哈尔龙江阜丰生物科技有限公司。
胰蛋白胨、蛋白胨、酵母粉、琼脂(均为生化试剂),氯化钠、羧甲基纤维素钠、磷酸二氢钾、磷酸氢二钾、硫酸镁、葡萄糖、硫酸铵、氢氧化钠、柠檬酸、碘、碘化钾、酒石酸钾钠、3,5-二硝基水杨酸( 3,5-dinitrosalicylic acid,DNS)(均为分析纯)天津市光复科技发展有限公司;DP302-02 DNA提取试剂盒天根生化科技(北京)有限公司。
初筛培养基:羧甲基纤维素钠1 g、蛋白胨0.5 g、酵母粉0.05 g、KH2PO4 0.15 g、MgSO4 0.02 g、NaCl 0.5 g、琼脂0.8 g、水100 mL,121 ℃灭菌20 min。
种子培养基:蛋白胨1 g、葡萄糖0.1 g、(NH4)2SO4 0.3 g、NaCl 0.5 g、去离子水100 mL,pH 7.0,121 ℃灭菌20 min。
发酵培养基:玉米麸皮粉10 g、K2HPO4 0.2 g、NaCl 0.5 g、(NH4)2SO4 1 g、去离子水100 mL,pH 7.0,121 ℃灭菌20 min。
LB液体培养基:蛋白胨10 g、酵母粉5 g、NaCl 10 g,搅拌至完全溶解后加入去离子水定容至1 000 mL,121 ℃灭菌20 min。
LB斜面培养基:胰蛋白胨10 g、酵母粉5 g、NaCl 10 g,琼脂20 g,去离子水1 000 mL,pH 7.0,121 ℃灭菌20 min。
1.2 仪器与设备
9080B-1恒温培养箱、101-I-Ⅱ-J-BS电热鼓风干燥箱、RH-Q型摇床、DK-98-Ⅱ A恒温水浴锅 上海跃进医疗器械厂;TU-1810紫外-可见分光光度计北京普析通用仪器有限责任公司;9700聚合酶链式反应(polymerase chain reaction,PCR)仪 杭州朗基科学仪器有限公司;DYY-8C电泳仪 北京六一仪器有限公司;ZYT-DDC紫外诱变台 荣华仪器制造有限公司;PB-10 pH计 北京赛多利斯仪器有限公司;LG10-24A离心机 北京京立离心机有限公司;DSX-280B手提式压力蒸汽灭菌锅 济南鑫贝西生物技术有限公司。
1.3 方法
1.3.1 产纤维素酶菌株初筛
称取3 g土壤样品于含玻璃珠的锥形瓶中,加入150 mL生理盐水置于振荡器上,振荡30 min后进行系列稀释,分别取稀释倍数为10-6、10-7的菌悬液0.1 mL,均匀涂布于初筛培养基平板上,每个浓度设置15个重复,37 ℃倒置培养24 h后,向平板上喷洒碘液进行染色,分别测量每个单菌落的直径(d)和透明圈直径(D),计算D/d值,选取D/d值较大的单菌落,编号后接种于LB斜面培养基,4 ℃保存备用。
1.3.2 产纤维素酶菌株复筛
从LB斜面平板上挑取初筛菌株,分别接种至种子培养基中,于37 ℃、180 r/min条件下摇瓶培养24 h。以 3%(V/V)的接种量将种子培养液接种至发酵培养基中,于37 ℃、180 r/min条件下培养72 h得到发酵液。随后将发酵液5 000 r/min离心10 min,收集粗酶液,用于CMCase活力和滤纸酶( filter paper activity,FPA)活力的测定。
1.3.3 筛选菌株产纤维素酶能力测定
CMCase活力的测定:采用DNS法[11],取0.1 mol/L磷酸氢二钠-柠檬酸缓冲液(pH 6.0)配制1 g/100 mL的羧甲基纤维素钠溶液作为底物。粗酶液用0.1 mol/L磷酸氢二钠-柠檬酸缓冲液(pH 6.0)稀释25倍,将0.5 mL稀释后的粗酶液置于25 mL比色管中,加入1.5 mL底物溶液,于50 ℃水浴保温30 min后,加入3 mL DNS试剂,沸水浴加热5 min,迅速冷却至室温后用去离子水定容,混合均匀,测定其OD540 nm值,根据葡萄糖标准曲线计算还原糖质量浓度。
FPA活力的测定:将0.1 g滤纸置于25 mL比色管底部,加入0.5 mL稀释的粗酶液和1.5 mL 0.1 mol/L磷酸氢二钠-柠檬酸缓冲液(pH 6.0),于50 ℃水浴锅中保温30 min后,加入3 mL DNS试剂,沸水浴加热5 min,迅速冷却至室温后用去离子水定容,混合均匀后测定其OD540 nm值,根据葡萄糖标准曲线计算还原糖质量浓度。
酶活力定义:在50 ℃条件下,1 mL酶液每分钟释放1 μg葡萄糖的量定义为1个酶活力单位(U)。CMCase、FPA活力单位均为U/mL。
1.3.4 菌株鉴定
形态学观察:将菌株接种于2 mL LB液体培养基中37 ℃过夜培养24 h,肉眼观察菌株的菌落形态。
生理生化实验:参照《常见细菌系统鉴定手册》进行芽孢形成试验、触酶试验、氧化酶试验、淀粉水解试验、柠檬酸盐试验、糖发酵试验、硝酸盐还原试验、甲基红试验、VP试验及吲哚试验。
分子生物学鉴定[12]:提取筛选菌株的基因组DNA,并利用通用引物对其进行PCR扩增,引物为27F(5′-AGTTTGATCMTGGCTCAG-3′)和1492R(5′-AGAGTTTGATCCTGGCTCAG-3′)。25 μL PCR反应体系为:模板DNA 1 μL、上下游引物各1 μL、Premix Taq 10 μL、双蒸水(ddH2O)12 μL。PCR扩增程序:94 ℃预变性5 min;94 ℃变性30 s,55 ℃退火30 s,72 ℃延伸1.5 min,共30个循环;72 ℃终延伸10 min。PCR产物的纯化与测序委托北京六合华大基因科技有限公司进行。将测序结果提交至NCBI GenBank数据库,利用BLAST进行同源性对比分析,以鉴定菌株分类,并使用MEGA 7.0软件构建系统发育树。
1.3.5 高产纤维素菌株紫外诱变选育
1.3.5.1 紫外诱变时间的确定
从LB斜面培养基挑取菌体,制备浓度为1×10⁸个/mL 的菌悬液,移取15 mL菌悬液于灭菌的培养皿中,磁力搅拌,边搅拌边照射,紫外灯功率15 W,辐射距离25 cm,照射时间分别为10、20、30、40、50 s,诱变后吸取1 mL菌液进行适当稀释,取0.1 mL稀释后菌液涂布平板,37 ℃恒温避光倒置培养24 h。采用平板计数法计算活菌数和致死率,选取致死率为70%~80%所对应的照射时间。
1.3.5.2 诱变菌株的筛选
诱变菌株的初筛方法同1.3.1节,复筛方法同1.3.2节。得到复筛突变株的粗酶液后,分别测定其CMCase与FPA活力。选取酶活力较出发菌株显著提升的诱变菌株,用于后续遗传稳定性试验。
1.3.5.3 遗传稳定性分析
将复筛获得的突变株连续传代培养5代,取第1、3、5代进行发酵实验,测定其CMCase与FPA活力,分析其遗传稳定性。
1.3.6 纤维素酶酶学性质测定
最适反应温度的确定:分别于不同温度(30、40、50、60、70、80 ℃)条件下按照1.3.3节的方法测定CMCase活力和FPA活力,以最高酶活力为100%,计算其他温度对应的相对酶活力。
温度稳定性:将酶液分别置于30、40、50、60、70 ℃和80 ℃条件下保温1 h,测定并计算相对酶活力,考察不同温度对纤维素酶活力的影响。
最适反应pH值的确定:分别于不同pH值(4、5、6、7、8)的0.1 mol/L磷酸缓冲液条件下测定CMCase活力和FPA活力,以最高酶活力为100%,计算其他pH值对应的相对酶活力。
pH值稳定性:将酶液分别置于pH值为4、5、6、7、8 的0.1 mol/L磷酸缓冲液中,30 ℃保温1 h,测定并计算相对酶活力,考察不同pH对纤维素酶稳定性的影响。
金属离子对纤维素酶活力的影响:向粗酶液中添加终浓度为1 mmol/L的不同金属离子(Mg2+、Fe2+、Zn2+、Cu2+、Ca2+、Ba2+、Mn2+、Na+和K+),以未添加金属离子的酶活力为100%,计算不同金属离子存在下的相对酶活力。
1.4 数据处理
使用软件Origin 2025处理实验数据,SPSS 26.0软件进行差异显著性分析(P<0.05认为差异显著),每组实验重复3次,结果以x±s表示。
2 结果与分析
2.1 产纤维素酶菌株的筛选与鉴定
2.1.1 产纤维素酶菌株的筛选
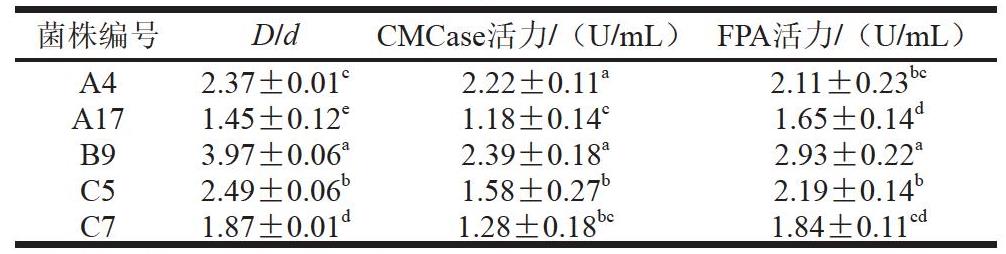
以腐烂秸秆和腐质土壤为菌源样品,制备30份样品进行系列稀释后涂布于初筛培养基平板上,共获得327株单菌落。经分离、筛选得到D/d值较大的5株菌,对其进行发酵复筛,测定CMCase与FPA活力。由表1可知,菌株B9的D/d值和CMCase、FPA活力均最大,分别为3.97和2.39、2.93 U/mL,其中D/d值和FPA活力显著高于其他菌株(P<0.05)。因此,选择菌株B9进行菌种鉴定,并作为诱变出发菌株。
表1 产纤维素酶菌株的筛选结果
Table1 Results of screening for cellulase‑producing bacteria
菌株编号D/dCMCase活力/(U/mL)FPA活力/(U/mL)A42.37±0.01c2.22±0.11a2.11±0.23bcA171.45±0.12e1.18±0.14c1.65±0.14dB93.97±0.06a2.39±0.18a2.93±0.22aC52.49±0.06b1.58±0.27b2.19±0.14bC71.87±0.01d1.28±0.18bc1.84±0.11cd
注:同列小写字母不同表示差异显著(P<0.05)。
2.1.2 筛选菌株分子生物学鉴定
2.1.2.1 形态学观察
将菌株B9在LB培养基上划线培养,其菌落形态见图1。 菌株B9生长良好,菌落呈白色,表面粗糙不透明,革兰氏染色试验表明其为革兰氏阳性菌。
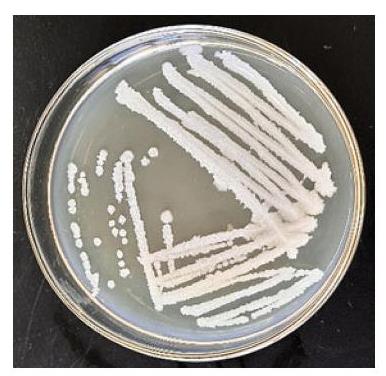
图1 菌株B9菌落形态
Fig.1 Colony morphology of strain B9
2.1.2.2 生理生化实验结果
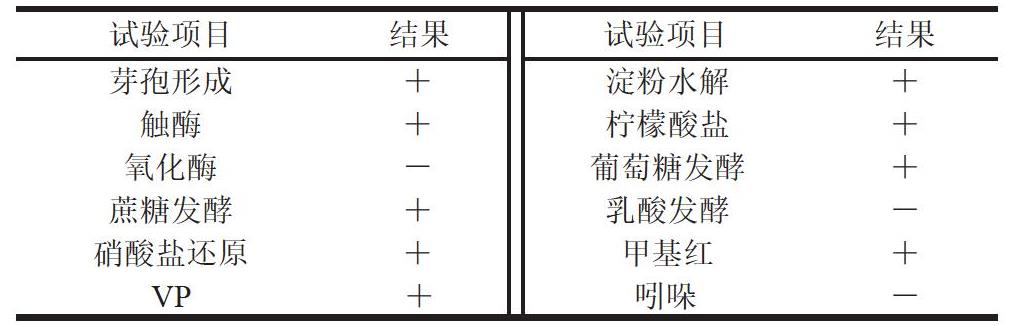
由表2可知,菌株B9可形成芽孢;其触酶阳性、氧化酶阴性;能水解淀粉,可利用柠檬酸盐;对葡萄糖和蔗糖发酵产酸产气,乳酸发酵阴性;硝酸盐还原试验、甲基红试验和VP试验均为阳性,吲哚试验阴性。
表2 菌株B9的生理生化实验结果
Table2 Physiological and biochemical test results of strain B9
试验项目结果试验项目结果芽孢形成+淀粉水解+触酶+柠檬酸盐+氧化酶-葡萄糖发酵+蔗糖发酵+乳酸发酵-硝酸盐还原+甲基红+VP +吲哚-
注:-.阴性,+.阳性。
2.1.2.3 分子生物学鉴定
基于16S rRNA基因序列构建菌株B9的系统发育树,结果见图2。菌株B9与枯草芽孢杆菌(Bacillus subtilis)(OR775577.1、OR534570.1、OR567542.1、OR523291.1)聚集在同一分支上,亲缘关系最近,结合形态学观察及生理生化实验结果,最终菌株B9被鉴定为枯草芽孢杆菌。
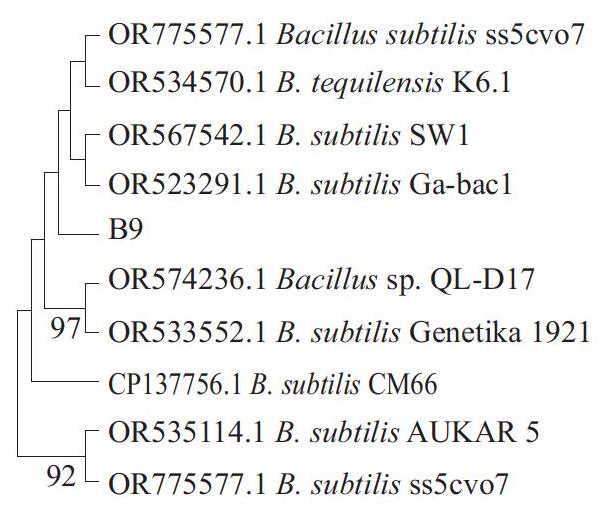
图2 基于16S rRNA基因序列菌株B9的系统发育树
Fig.2 Phylogenetic tree of strain B9 based on 16S rRNA gene sequences
2.2 菌株B9紫外诱变选育
2.2.1 诱变时间的确定
由图3可知,随着照射时间的增加,菌株的致死率不断上升。照射时间为30~40 s时,致死率为70%~80%;当照射时间延长至50 s时,菌株的致死率接近100%,菌株存活率较少,不利于后续筛选。研究表明,致死率在70%~80%时,紫外线既能对菌株DNA造成足够强度的损伤,如形成胸腺嘧啶二聚体,破坏碱基配对稳定性等,使菌株发生遗传变异,又能保留一定数量的存活菌株,保障后续筛选的可行性。在该范围内正突变率处于较高水平[24];若致死率过低(<70%),菌株遗传物质损伤不足,多数菌株仍保持原有遗传特性,高产突变株出现概率极低;致死率过高(>80%),则负突变率显著增加,即使存活也难以稳定表达高产性状,甚至丧失产酶能力。综上,当照射时间为35 s时,菌株B9的致死率在70%~80%的最优诱变区间内,既满足了诱变所需的遗传物质损伤强度,又能保证一定的存活率,以供后续筛选。因此,确定35 s为菌株B9的最适紫外诱变时间。
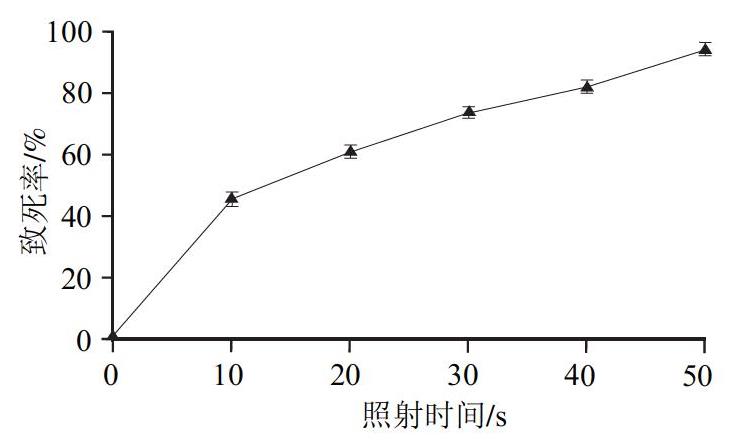
图3 菌株B9紫外诱变致死率
Fig.3 Mortality rate of ultraviolet mutagenesis for strain B9
2.2.2 紫外诱变菌株的初筛
纤维素降解菌能够分泌纤维素酶,水解培养基中的羧甲基纤维素生成葡萄糖及纤维二糖和纤维三糖等低聚糖,碘液可以与纤维素结合使培养基呈现紫色,不与糖类结合,因此菌落周围会产生透明的水解圈[25]。对菌株B9进行紫外诱变处理后涂布于初筛培养基,避光培养24 h,待长出单菌落后进行编号,测定突变株菌落的D/d值, D/d值越大说明菌株产纤维素酶活力越强。在初筛的100余株菌中,筛选出26株D/d值明显增加的突变株(表3)。 选取D/d值较大的突变株B9-12、B9-14、B9-20、B9-54、B9-65、B9-68、B9-69、B9-76、B9-77、B9-78进行后续实验。
表3 出发菌株B9及紫外诱变菌株的D/d值
Table3 Hydrolysis‑zone‑to‑colony‑diameter ratio of the starting strain B9 and its ultraviolet-mutated derivatives
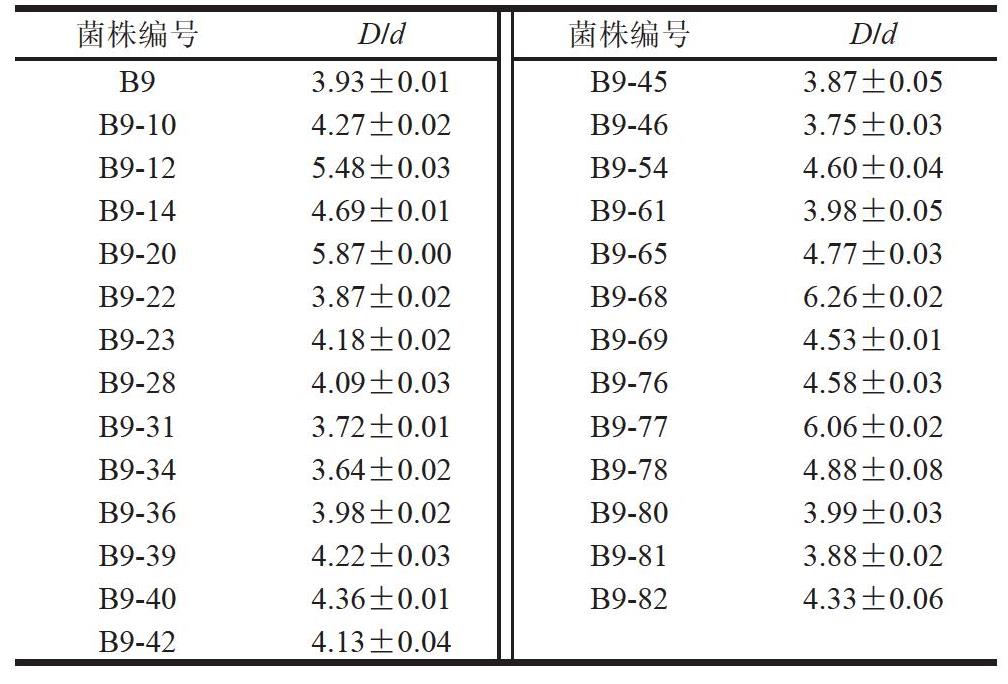
菌株编号D/d菌株编号D/dB93.93±0.01B9-453.87±0.05B9-104.27±0.02B9-463.75±0.03B9-125.48±0.03B9-544.60±0.04B9-144.69±0.01B9-613.98±0.05B9-205.87±0.00B9-654.77±0.03B9-223.87±0.02B9-686.26±0.02B9-234.18±0.02B9-694.53±0.01B9-284.09±0.03B9-764.58±0.03B9-313.72±0.01B9-776.06±0.02B9-343.64±0.02B9-784.88±0.08B9-363.98±0.02B9-803.99±0.03B9-394.22±0.03B9-813.88±0.02B9-404.36±0.01B9-824.33±0.06B9-424.13±0.04
2.2.3 紫外诱变菌株的复筛
由图4可知,10株突变菌株的CMCase和FPA活力均显著高于出发菌株B9(P<0.05),可见紫外线诱变处理可有效提高枯草芽孢杆菌B9产纤维素酶能力。选取产酶能力较强的突变株B9-12、B9-14、B9-54、B9-76、B9-78进行遗传稳定性分析。
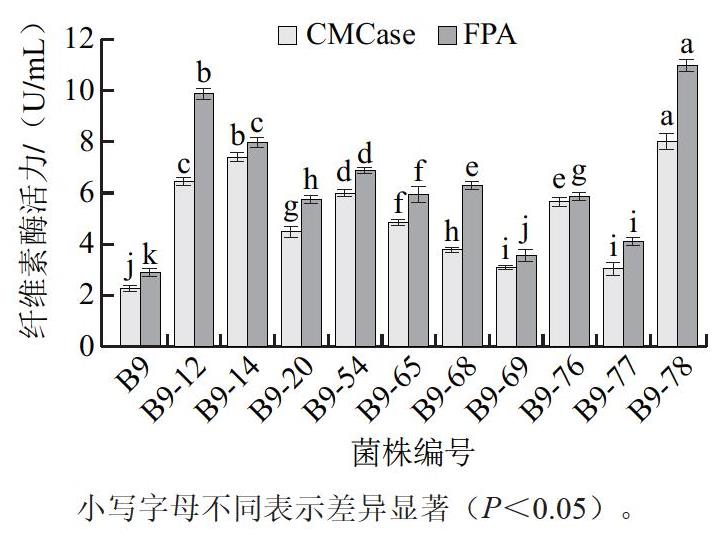
图4 高产纤维素突变菌株的CMCase和FPA活力
Fig.4 CMCase and FPA activities of high-cellulase-yielding mutant strains
2.2.4 突变菌株的遗传稳定性
微生物诱变获得的优良性状可能不稳定,易在传代中发生回复突变或基因丢失。通过传代培养可验证目标性状是否稳定遗传,确保突变株能稳定用于后续研究和生产[26]。为检测诱变菌株B9-12、B9-14、B9-54、B9-76、B9-78产酶能力的稳定性,分别对其进行连续5代划线培养,并将1、3、5代接种发酵培养基,测定突变菌株的CMCase和FPA活力。由图5可知,经5次传代,菌株B9-78的CMCase和FPA活力变化不大,菌株B9-54的CMCase活力和菌株B9-76的FPA活力呈上升趋势,其余突变菌传代后酶活力多呈下降或先增加后下降趋势。菌株B9-78经过5次传代后仍保持较高的产酶能力,且酶活力均高于其他突变菌株,其CMCase活力为(6.63±0.20)U/mL,FPA活力为(9.50±0.66)U/mL,分别为发菌株B9的2.77倍和3.24倍。导致紫外线诱变后不稳定的原因一方面可能是紫外线诱变损伤了菌株DNA修复系统相关基因,导致突变菌株在传代中发生回复突变或二次突变,使得高产性状丢失;另一方面,紫外线照射可能影响了编码纤维素酶质粒复制或分配稳定性,导致突变株在分裂过程中丢失该质粒,从而完全丧失产酶能力[27]。综上,突变菌株B9-78传代5次后,CMCase和FPA活力较传代前无明显变化,且高于其他菌株,说明其具有良好的产酶遗传稳定性。
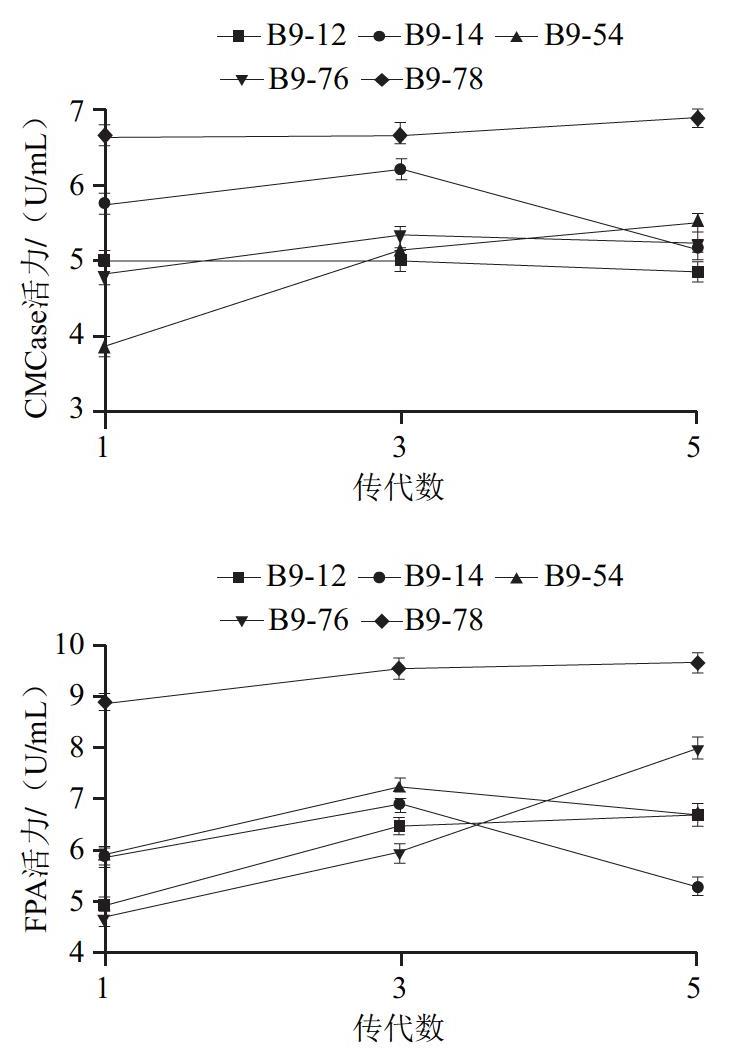
图5 突变菌株的CMCase活力及FPA活力的遗传稳定性
Fig.5 Genetic stability of CMCase activity and FPA activity of mutant strains
2.3 突变菌株B9-78产纤维素酶的酶学性质
2.3.1 温度对纤维素酶活力和稳定性的影响
由图6a可知,随着温度在30~80 ℃升高,突变菌株B9-78所产CMCase、FPA相对酶活力均呈先上升后下降趋势,粗酶液在50 ℃达到最高酶活力,相对活力均达到100%,超过60 ℃后,2种酶活力均下降较快,表明高温破坏了酶的三维结构。综上,突变菌株B9-78所产纤维素酶最适温度为50 ℃。由图6b可知,2种酶在30~60 ℃时比较稳定,保持较高的酶活力;超过60 ℃后,酶活力迅速下降,在70 ℃时仍存在40%左右的相对酶活力,表明该菌株所产的纤维素酶具有一定耐热性。
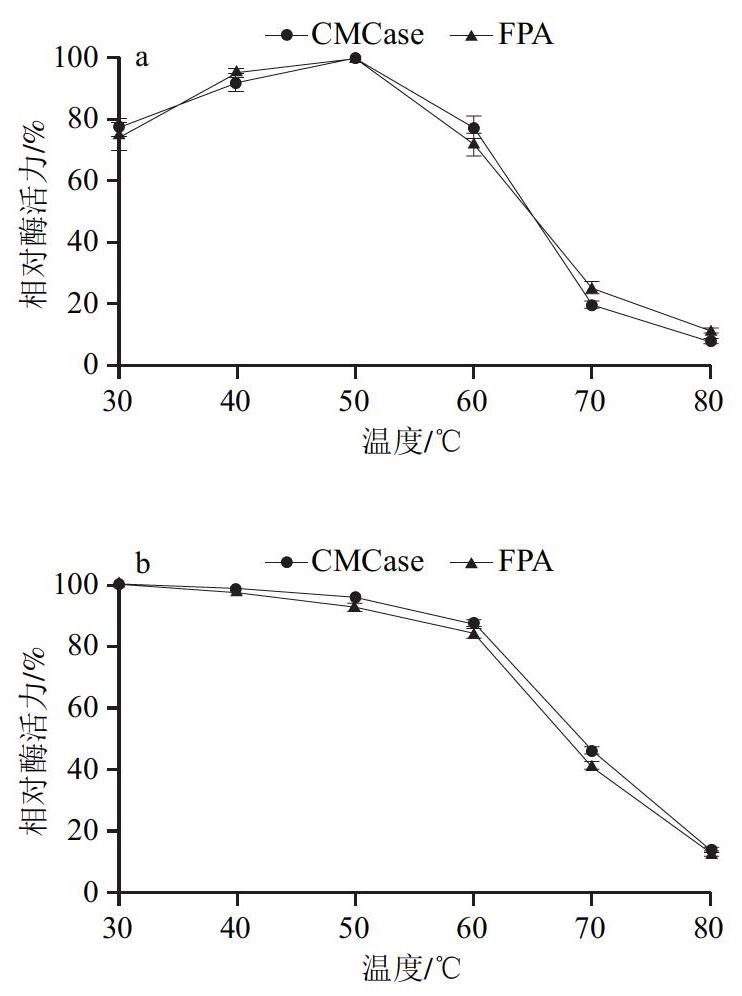
图6 温度对突变菌株B9-78所产CMCase和FPA活力(a)和 稳定性(b)的影响
Fig.6 Effects of temperature on the activity (a) and stability (b) of CMCase and FPA produced by mutant strain B9-78
2.3.2 pH值对纤维素酶活力和稳定性的影响
由图7a可知,随着pH值在4~8范围内升高,CMCase、 FPA活力均呈先上升后下降趋势,pH 6时达到最高活力,均达到100%,属中性纤维素酶。综上,诱变菌株B9-78所产纤维素酶最适pH值为6。由图7b可知,该纤维素酶 在pH值为5~8范围内相对酶活力可稳定在70%以上,当pH值为4时,粗酶液的相对酶活力仍接近50%,表明该酶在一定范围内具有pH值稳定性。
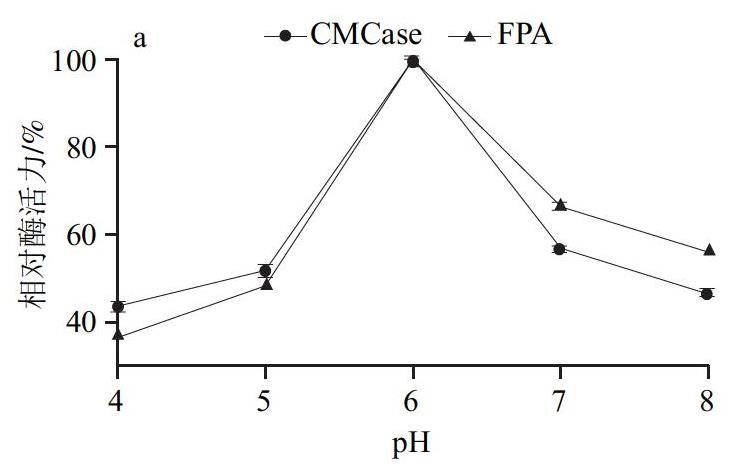
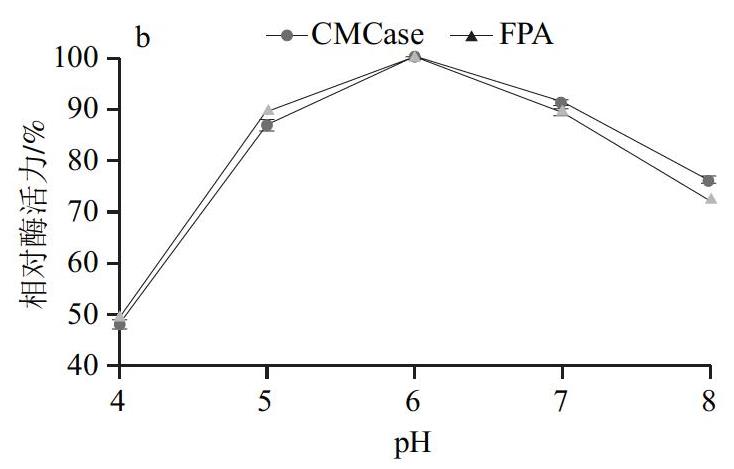
图7 pH值对突变菌株B9-78所产CMCase和FPA活力(a)和稳定性(b)的影响
Fig.7 Effects of pH on the activity (a) and stability (b) of CMCase and FPA produced by mutant strain B9-78
2.3.3 金属离子对纤维素酶活力的影响
由图8可知,Mg2+、Ba2+和Mn2+能够激活该突变株表达纤维素酶活性,其中Ba2+促进效果最显著,2种酶的相对活力均为147.55%,这与文献报道[28-29]一致。Fe2+、Zn2+和Cu2+对纤维素酶活性抑制作用较强,相对酶活力仅为40%~60%,这可能是由于Fe2+、Zn2+和Cu2+破坏酶的三维结构,影响了活性中心与底物的结合,使其发生失活现象[30]。
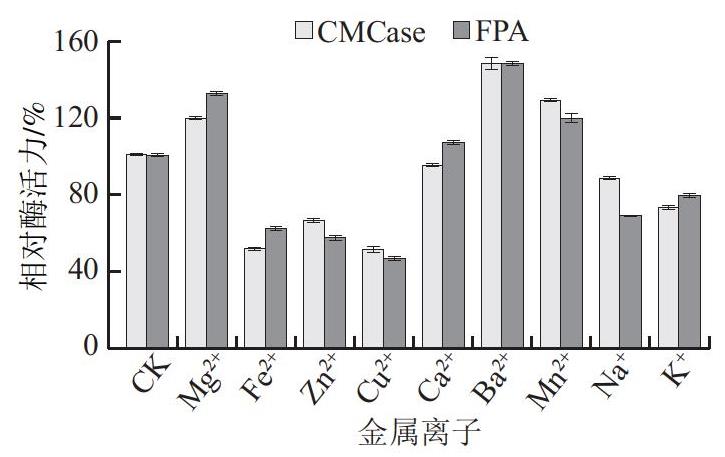
图8 金属离子对突变菌株B9-78所产CMCase和FPA活力的影响
Fig.8 Effects of metal ions on CMCase and FPA activities produced by mutant strain B9-78
3 结 论
本研究从腐烂秸秆和腐殖土中筛选获得一株纤维素降解菌B9,经形态学观察和分子生物学鉴定为枯草芽孢杆菌。为进一步提高菌株产CMCase和FPA能力,采用紫外线诱变育种技术对出发菌株B9进行诱变处理,最适诱变时间为35 s,初筛采用碘液染色法,以D/d值为初筛指标,挑选得到10株产CMCase和FPA能力较高的突变菌株,对10株突变株进行复筛及连续传代培养后获得了遗传稳定且酶活力最高的突变株B9-78,其经5次传代后CMCase和FPA活力分别为(6.63±0.20)U/mL 和(9.50±0.66)U/mL,较出发菌株显著提高(P<0.05)。突变株B9-78所产纤维素酶最适反应温度为50 ℃,最适反应pH值为6,具有良好的温度及pH值稳定性,添加金属离子Ba2+对纤维素酶活力的促进作用最强,而Fe2+、Zn2+和Cu2+抑制作用较强。在后续的研究中将对突变株B9-78产酶条件进行优化,以期进一步提高产酶能力。
[1] 陈欢, 史子浩, 吴春会, 等. 高产纤维素降解菌筛选、诱变选育及其秸秆降解效果研究[J]. 动物营养学报, 2024, 36(12): 8126-8136.DOI:10.12418/CJAN2024.693.
[2] Peng Guanyi, Gan Jiapan, Dong Ruihong, et al. Combined microwave and enzymatic treatment improve the release of insoluble bound phenolic compounds from the grapefruit peel insoluble dietary fiber[J]. LWT-Food Science and Technology, 2021, 149: 111905. DOI:10.1016/j.lwt.2021.111905.
[3] 卞辉洋, 段晟, 武瑾, 等. 多元羧酸预处理制备木质纳米纤维素及其性能研究[J]. 林产化学与工业, 2022, 42(6): 11-16. DOI:10.3969/j.issn.0253-2417.2022.06.002.
[4] 王雅婷, 莫裕静, 周茜婷, 等. 偶氮苯改性纳米纤维素制备超疏水材料[J]. 造纸科学与技术, 2025, 44(3): 20-24. DOI:10.19696/j.issn1671-4571.2025.03.004.
[5] 赵鑫, 张红, 门中华, 等. 纤维素酶的研究与应用进展[J]. 化学与生物工程, 2023, 40(9): 1-9. DOI:10.3969/j.issn.1672-5425.2023.09.001.
[6] 王静蕾, 李嘉琪, 樊津池, 等. 高产纤维素酶菌株选育及其产酶工艺的研究[J]. 陕西农业科学, 2024, 70(2): 8-12; 18. DOI:10.3969/j.issn.0488-5368.2024.02.002.
[7] Singh A, Bajar S, Devi A, et al. An overview on the recent developments in fungal cellulase production and their industrial applications[J]. Bioresource Technology Reports, 2021, 14: 100652. DOI:10.1016/j.biteb.2021.100652.
[8] 周龙珠, 王朋, 董双, 等. 纤维素酶改性油莎豆粕可溶性膳食纤维结构与功能研究[J]. 中国食品学报, 2024, 24(7): 241-251.DOI:10.16429/j.1009-7848.2024.07.024.
[9] 陈嘉川, 贾倩倩, 李凤凤, 等. 生物酶在制浆造纸过程中的应用及研究进展[J]. 中华纸业, 2021, 42(12): 9-16.
[10] Singhania R R, Ruiz H A, Awasthi M K, et al. Challenges in cellulase bioprocess for biofuel applications[J]. Renewable and Sustainable Energy Reviews, 2021, 151: 111622. DOI:10.1016/j.rser.2021.111622.
[11] 曹月. 传统自然发酵酿制型酱油酱醅产香芽孢杆菌的筛选及其诱变选育[D]. 成都: 四川大学, 2021. DOI:10.27342/d.cnki.gscdu.2021.002092.
[12] 杨阳, 王松涛, 许正宏, 等. 半纤维素的微生物酶促降解及其在酿造中的应用[J]. 食品与发酵工业, 2020, 46(23): 255-262.DOI:10.13995/j.cnki.11-1802/ts.024607.
[13] 邢茜, 李小艳, 侯艳霞, 等. 板栗叶发酵饲料的制备、发酵品质及营养价值的研究[J]. 中国饲料, 2024(14): 80-83. DOI:10.15906/j.cnki.cn11-2975/s.20241419.
[14] 阿拉腾珠拉, 郭春华, 刘华南, 等. 微生态白酒糟饲料发酵条件的优化[J]. 生物学通报, 2016, 51(10): 48-52.
[15] 杜琨. 人参果果汁分段酶解提取工艺优化[J]. 贵州农业科学, 2022,50(9): 106-112. DOI:10.3969/j.issn.1001-3601.2022.09.015.
[16] Zhang Ting, Fang Ke, Ni Hui, et al. Aroma enhancement of instant green tea infusion using β-glucosidase and β-xylosidase[J]. Food Chemistry, 2020, 315: 126287. DOI:10.1016/j.foodchem.2020.126287.
[17] 李婕, 李敏, 汪玲玲, 等. 高产纤维素酶真菌的筛选鉴定与紫外诱变选育研究[J]. 饲料研究, 2023, 46(17): 76-81. DOI:10.13557/j.cnki.issn1002-2813.2023.17.015.
[18] 张国利, 耿彬彬, 吴光宗, 等. 常压室温等离子体诱变选育花脸香蘑新菌株[J]. 菌物学报, 2021, 40(12): 3096-3108. DOI:10.13346/j.mycosystema.210342.
[19] 颜菲, 毕平, 张涛, 等. 紫外和EMS诱变选育大肠杆菌赖氨酸营养缺陷型突变株的综合实验设计与实践[J]. 实验技术与管理, 2021,38(9): 204-209; 223. DOI:10.16791/j.cnki.sjg.2021.09.041.
[20] 邓磊. 基于ARTP诱变与MMC结合选育L-组氨酸产生菌株[D].广州: 华南理工大学, 2020. DOI:10.27151/d.cnki.ghnlu.2020.005252.
[21] 王建玲, 许铭玉, 石天歌, 等. 紫外诱变选育恩拉霉素高产菌株[J].工业微生物, 2015, 45(5): 23-28. DOI:10.3969/j.issn.1001-6678.2015.05.005.
[22] 冯伟, 冯雅琪, 徐晶雪. 纤维素降解菌的筛选与诱变育种[J].安徽农学通报, 2021, 27(9): 41-43. DOI:10.16377/j.cnki.issn1007-7731.2021.09.014.
[23] 黄晓梅, 赵红晓, 范金霞, 等. 一株高产纤维素酶绿色木霉菌株诱变选育与发酵研究[J]. 东北农业大学学报, 2018, 49(6): 22-31.DOI:10.3969/j.issn.1005-9369.2018.06.003.
[24] 沙沙, 刘心怡, 张玉林, 等. 一株产纤维素酶的暹罗芽孢杆菌筛选及产酶条件优化[J]. 河南科学, 2019, 37(7): 1073-1081.
[25] 黄岚, 简倩楠, 刘雪阳, 等. 东北梅花鹿肠道纤维素降解微生物的分离筛选[J]. 北京师范大学学报(自然科学版), 2021, 57(4): 477-484.DOI:10.12202/j.0476-0301.2021082.
[26] 宋静静, 王克芬, 张辉, 等. 复合诱变筛选提高花生粕中AFB1降解率的菌株[J]. 现代畜牧科技, 2024(10): 49-52. DOI:10.19369/j.cnki.2095-9737.2024.10.015.
[27] 叶菁, 蒋雪薇, 罗晓明, 等. 高蛋白酶酶活酱油发酵用米曲霉的复合诱变选育[J]. 食品与机械, 2017, 33(1): 7-10; 15. DOI:10.13652/j.issn.1003-5788.2017.01.002.
[28] 覃宝山, 何海燕, 李燕婷, 等. β-葡萄糖苷酶产生菌的筛选鉴定及其粗酶液酶学性质研究[J]. 中国酿造, 2024, 43(8): 128-132.DOI:10.11882/j.issn.0254-5071.2024.08.019.
[29] 裴雯雯, 曾艳, 刘娟娟, 等. β-葡萄糖苷酶的枯草芽孢杆菌表达、酶学性质分析及其在宝藿苷I制备中的应用[J]. 食品工业科技, 2022,43(6): 133-140. DOI:10.13386/j.issn1002-0306.2021080167.
[30] 郭汉忠, 张旭东, 伍俊林, 等. 海洋弧菌NH1产几丁质酶的发酵条件优化及酶学性质研究[J]. 中国食品学报, 2025, 25(4): 196-208.DOI:10.16429/j.1009-7848.2025.04.018.