酱香型白酒作为中国传统固态发酵白酒的典型代表,以其“酱香突出、优雅细腻”的独特风格而闻名。这一独特风味的形成高度依赖其“四高两长,一大一多”的特殊酿造工艺体系[1]。其中,“高温堆积”作为核心工序,实质上是酒醅在开放环境下富集环境中复杂微生物并进行初步糖化与发酵的生化过程,被业内形象地称为“二次制曲”[2]。在该环节中,酒醅经历从空气中捕获并富集多样化微生物的动态过程,有效补充了高温大曲在微生物种类和数量上的不足,同时经历“富集-竞争-淘汰”的复杂微生物筛选过程,对酱香型白酒的风味形成与品质稳定起着至关重要的作用。
近年来,高通量测序技术在食品发酵领域的广泛应用极大深化了学界对高温堆积过程中微生物群落结构的认识。研究表明,堆积期间微生物多样性显著增加,芽孢杆菌属(Bacillus)、丝状真菌和酵母等核心功能类群得以大量繁殖[3]。多项研究从不同角度探讨了堆积过程中的微生物群落特征,Wang Huan等[4]通过高通量测序技术揭示了1~7轮次堆积发酵中微生物多样性的变化,发现“大回酒”轮次的特征真菌属包括unclassified_Davidiellaceae、念珠菌属(Candida)和酵母属(Saccharomyces),特征细菌属包括类芽孢杆菌属(Paenibacillus)、黄杆菌属(Flavobacterium)等。吴成等[5]研究表明,解淀粉芽孢杆菌(B. amyloliquefaciens)、库德里阿兹威毕赤酵母(Pichia kudriavzevii)等为4轮次酒醅中的优势菌种。黄俊秋等[6]对酱香型白酒5轮次堆积发酵过程菌群演替进行研究,发现堆积发酵前期以拟酵母属(Saccharomycopsis)、嗜热丝孢菌属(Thermomyces)、曲霉属(Aspergillus)和嗜热子囊菌属(Thermoascus)为主,中后期以哈萨克斯坦酵母属(Kazachstania)、毕赤酵母属(Pichia)和接合酵母属(Zygosaccharomyces)为主。这些复杂的微生物群落通过与理化因子相互作用,共同驱动风味物质形成,而其核心作用机制在于微生物代谢所产生的丰富酶系。在堆积过程中,各类微生物通过复杂的代谢作用产生淀粉酶、蛋白酶、纤维素酶等,催化原料中淀粉、蛋白质、纤维素等大分子物质分解与转化,为后续窖内发酵提供前体物质[7]。已有研究基于单菌分离及实验室条件下的产酶评价初步明确了部分功能菌株的产酶特征。在淀粉水解酶方面,谢瓦散囊菌(Eurotium chevalieri)可同时高产液化酶和糖化酶[8],阿姆斯特丹散囊菌(E. amstelodami)高产糖化酶[9];在蛋白酶方面,亨氏曲霉(A. hennebergii)[10]、B. amyloliquefaciens、枯草芽孢杆菌(B. subtilis)[11-12]、贝莱斯芽孢杆菌(B. velezensis)和莫哈韦芽孢杆菌(B. mojavensis)[13]均具有高产蛋白酶特性;此外,木霉属(Trichoderma)、曲霉属(Aspergillus)、青霉属(Penicillium)等真菌主要分泌纤维素酶和蛋白酶[14]。这些结果为理解单菌产酶潜力提供了重要参考。然而,基于单菌分离及实验室条件下的产酶评价难以准确表征实际发酵体系中酶活力的动态演变规律。此外,对于堆积过程中微生物群落演替与酶活力动态演变之间的内在关联,以及温度等关键环境因子在其中的调控作用,目前尚缺乏系统性认识。
基于此,本研究以酱香型白酒3、4、5轮次高温堆积酒醅为研究对象,通过高通量测序与酶活力测定,系统揭示其微生物群落结构的动态演替规律及关键酶活力的变化趋势,结合冗余分析(redundancy analysis,RDA)及Spearman相关性分析考察微生物群落与温度及酶活力之间的内在关联,旨在阐明轮次间微生物差异的形成机理,为优化堆积工艺参数、提升优质基酒生产稳定性提供科学依据与数据支撑。
1 材料与方法
1.1 材料与试剂
3、4、5轮次高温堆积酒醅样品来自山东某酱香型白酒酿造车间,按照酱香型白酒生产工艺,在酒醅蒸熟、摊晾、加曲并堆积后,从堆积开始至结束每隔12 h,使用酒醅取样器于图1所示的a、b、c、d 4个位置取样,各点取样量保持一致。每个时间点的各取样点糟醅混合均匀后,分装于无菌袋并标记。其中3轮次样品记为group3(发酵0~72 h);4轮次样品记为group4(发酵0~72 h);5轮次样品记为group5(发酵0~60 h)。所有样品均于-80 ℃冰箱保存,用于微生物组成分析。
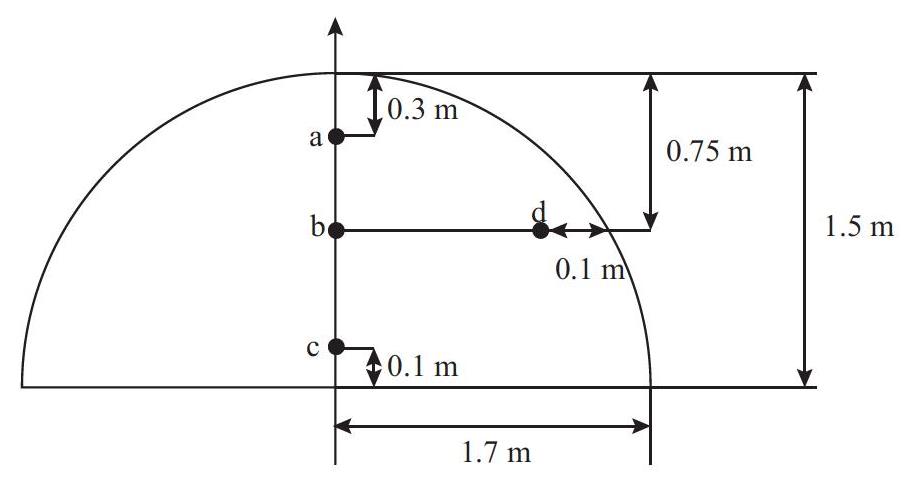
图1 酱香型白酒高温堆积酒醅取样点位置示意图
Fig.1 Schematic diagram of sampling points in high-temperature stacking fermented grains of sauce-flavor Baijiu
E.Z.N.A.®土壤DNA提取试剂盒 美国QIAGEN公司;rTaq DNA聚合酶试剂盒、DNA Marker 北京全式金生物技术有限公司;引物 生工生物工程(上海)股份有限公司;3,5-二硝基水杨酸(3,5-dinitrosalicylic acid,DNS) 北京索莱宝科技有限公司;羧甲基纤维素(carboxymethyl cellulose,CMC) 西格玛奥德里奇(上海)贸易有限公司 ;AxyPrep DNA凝胶回收试剂盒 康宁生命科学(吴江)有限公司 。
1.2 仪器与设备
Illumina MiSeq 测序平台 上海美吉生物医药科技有限公司;AL204精密电子天平 梅特勒-托利多仪器(上海)有限公司;DH-20008高速台式冷冻离心机 上海德洋意邦仪器有限公司;CWJ-A-1.5探针式电子温度计 济南雪娜斯酿酒科技有限公司。
1.3 方法
1.3.1 酒醅温度测定
酒醅堆体温度的监测遵循与企业实际生产一致的原则,以确保数据的代表性与准确性。监测与取样同步进行,即每12 h检测一次。使用校准后的探针式电子温度计,于每个时间点按生产中标准操作,在堆体中心及4个对称边缘点进行测定。待读数稳定后记录,并以该5点温度的平均值作为该时刻酒醅的代表温度。
1.3.2 高通量测序
采用DNA提取试剂盒提取样品DNA,分别采用细菌16S rDNA通用引物对338F(5′-ACTCCTACGG GAGGCAGCAG-3′)和806R(5′-GGACTACHVGGGTWTC TAAT-3′)扩增16S rDNA V3~V4可变区,采用真菌引物对ITS1F(5′-CTTGGTCATTTAGAGGAAGTAA-3′)和ITS2R(5′-GCTGCGTTCTTCATCGATGC-3′)扩增真菌ITS区,聚合酶链式反应(polymerase chain reaction,PCR)产物经2%琼脂糖凝胶电泳检测,采用AxyPrep DNA凝胶回收试剂盒切胶回收PCR产物。参照电泳初步定量结果,将PCR产物用QuantiFluorTM-ST蓝色荧光定量系统进行精确定量,随后利用Illumina MiSeq测序平台开展高通量测序分析。
1.3.3 酶活力测定
参照文献[15]的方法测定蛋白酶、纤维素酶、糖化酶和液化酶活力。蛋白酶活力测定采用福林酚法,以1 g/100 mL酪蛋白为底物(pH 3.0),40 ℃反应10 min,酶活力单位定义为每分钟水解酪蛋白产生1 μg酪氨酸的酶量(U);纤维素酶活力测定采用CMC法,以1 g/100 mL CMC-Na为底物(pH 5.0),50 ℃反应30 min,酶活力单位定义为每分钟从CMC-Na溶液中释放1 μmol葡萄糖的酶量(U);糖化酶和液化酶活力测定均采用DNS法,以2 g/100 mL可溶性淀粉为底物,其中糖化酶在pH 4.6、40 ℃条件下反应30 min,液化酶在pH 6.0、60 ℃条件下反应15 min;糖化酶和液化酶活力单位均定义为每小时产生1 mg葡萄糖的酶量(U)。
1.4 数据处理
微生物群落结构分析基于上海美吉生物医药科技有限公司的美吉生物云平台(https://cloud.majorbio.com/)进行,通过R语言进行微生物相关性网络构建、RDA以及Spearman相关性分析并可视化。采用Excel 2016、SPSS 26.0软件进行数据统计与显著性分析,通过单因素方差分析检验组间差异显著性(P<0.05)。使用OriginPro 2022绘制折线图。
2 结果与分析
2.1 高温堆积酒醅温度变化
作为微生物代谢产热的宏观体现,堆积温度的动态变化是评价发酵进程的关键指标。由图2可知,在发酵过程中,3、4、5轮次酒醅温度均随着发酵的进行呈上升趋势,3轮次酒醅起始温度为32.20 ℃,在0~48 h内无显著变化(P>0.05),48 h后温度逐渐升高,发酵72 h时,温度达46.60 ℃。4轮次起始温度较高,为34.00 ℃,其温度在0~24 h内无显著变化(P>0.05),随后在24~72 h期间显著上升(P<0.05),终点温度达49.00 ℃。5轮次起始温度为31.80 ℃,在0~12 h内无明显变化,于24~60 h快速上升,发酵至60 h时,温度达到最高,为49.30 ℃。这种轮次间升温动力学差异直接反映其内在微生物群落组成与代谢活性的不同。高温堆积过程中,微生物代谢活动导致温度持续上升,尤其是嗜热菌群的富集和活性增强,推动酿造过程中关键酶的生成和风味物质的合成。相关研究表明,堆积发酵中的温度变化直接影响微生物群落的结构,进一步影响酿酒的最终质量[16]。
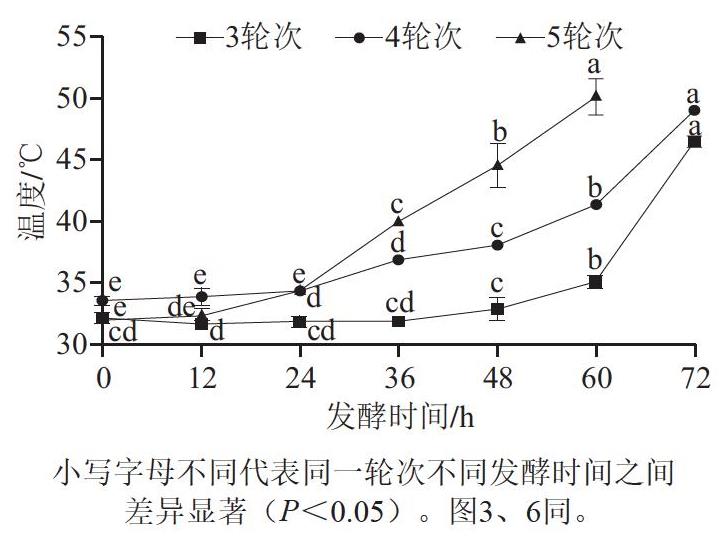
图2 不同轮次高温堆积酒醅温度的变化
Fig.2 Temperature variation of high-temperature stacking fermented grains across different rounds
2.2 堆积过程中酒醅微生物α-多样性变化
Chao1指数可反映群落的物种丰富度,数值越大,群落物种越丰富;Shannon指数反映样品中群落多样性,Shannon指数越大,表明样品中群落多样性越高,反之则越低。由图3可知,不同轮次间微生物群落丰富度和多样性变化趋势存在差异。在3轮次中,细菌Chao1指数与Shannon指数在整个发酵过程中无显著变化(P>0.05),表明其丰富度与多样性较为稳定。真菌的Chao1指数与Shannon指数在0~24 h无显著变化(P>0.05),36~48 h开始显著下降(P<0.05),至60~72 h进一步显著降低(P<0.05),与堆积温度的快速升高存在高度相关性。在4轮次中,细菌Chao1指数在0~36 h内无显著变化(P> 0.05),36~48 h内有所下降,而在48~72 h明显升高,Shannon指数则全程无显著变化(P>0.05),显示其多样性较为稳定而丰富度在发酵后期呈提升的变化趋势。真菌Chao1指数、Shannon指数整体呈先下降后升高再下降的趋势,表明丰富度与多样性呈动态变化趋势,真菌多样性显著减少阶段与温度的快速上升期及高温维持期基本重叠,而细菌丰富度的显著增加则出现于高温维持后期,提示真菌对温度变化的响应更为敏感。在5轮次中,细菌Chao1指数呈波动下降趋势,于24~60 h明显降低,堆积结束时最低;Shannon指数在0~48 h无显著变化(P>0.05),48 h后明显下降。真菌Chao1指数与Shannon指数在12~36 h下降最为明显,之后有所增加。该轮次中,真菌丰富度及多样性明显下降阶段(12~36 h)与温度的快速上升期高度重合,而细菌丰富度、多样性下降在整个升温过程中持续下降,进一步说明真菌群落对温度变化的响应更为迅速。综合来看,温度对微生物群落的影响尤为显著,特别是对真菌群落的影响更为迅速和直接。随着温度的升高,真菌群落的多样性逐渐下降,尤其是在堆积发酵的高温阶段。这一结果与张梦梦等[17]的研究结论一致,表明温度变化对微生物群落结构和功能具有显著的调控作用。
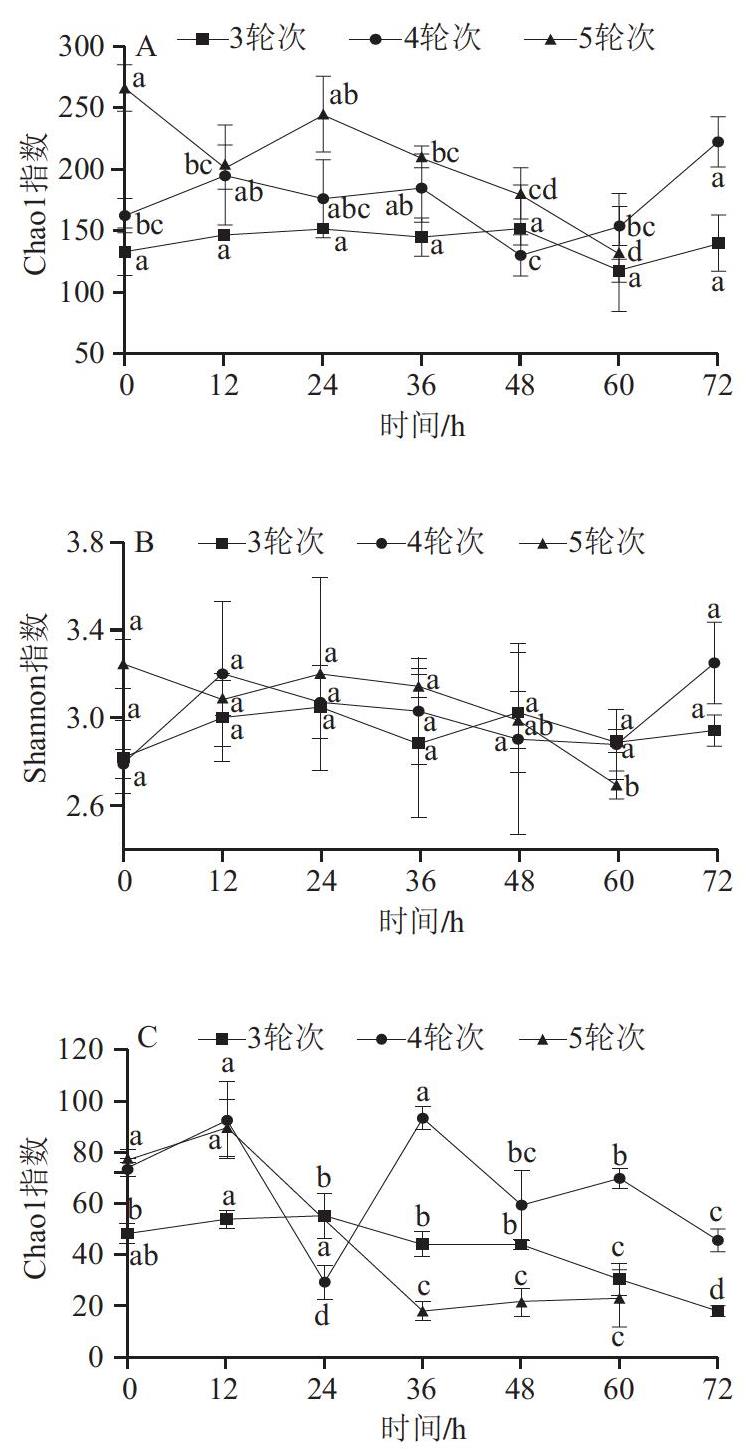
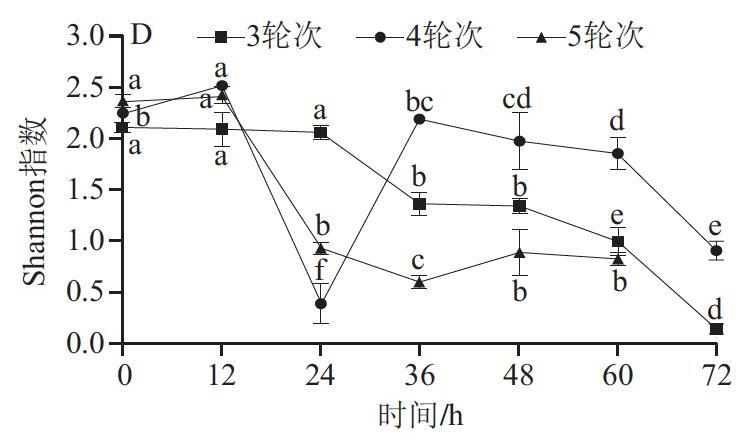
图3 不同轮次高温堆积酒醅发酵过程中细菌(A、B)与 真菌(C、D) α-多样性
Fig.3 α-Diversity of bacteria (A, B) and fungi (C, D) in high-temperature stacking fermented grains during fermentation across different rounds
2.3 高温堆积酒醅微生物群落结构演替
2.3.1 细菌群落结构
所有酒醅样品共检测出485个细菌属,将相对丰度小于1%的菌属归为其他,其中相对丰度大于1%的优势细菌属为22个。由图4可知,枝芽孢杆菌属(Virgibacillus)、克罗彭斯特菌属(Kroppenstedtia)、大洋芽孢杆菌属(Oceanobacillus)和Bacillus相对丰度在所有样品中均高于5%,为各轮次共有的核心优势细菌属。该组成特征与仁怀产区酱香型白酒酿造相关研究报道[4,18]基本一致。具体地,在3轮次酒醅中共检出229个细菌属,其中优势细菌属17个。Virgibacillus相对丰度在36 h最 高(36.59%),之后持续下降,这一变化除受温度逐步升高影响外,还可能与堆积过程中营养底物消耗、代谢产物积累及局部微氧环境的改变等因素有关[19-20]。相比之下,Kroppenstedtia和Oceanobacillus相对丰度在发酵60 h较高,分别达到25.71%和26.44%。研究表明,这2种菌属是高温大曲中的典型嗜热菌,能在50 ℃以上有效降解淀粉和纤维素等复杂多糖[6,21]。Bacillus相对丰度呈现先升后降趋势,体现其作为兼性厌氧耐高温菌属的广泛适应性[22]。值得注意的是,乳杆菌属(Lactobacillus)和厌氧盐杆菌属(Anaerosalibacter)相对丰度在发酵中后期异常升高,这2类厌氧或兼性厌氧菌的富集可能源于堆积过程中形成的局部厌氧微环境,对3轮次酒醅的有机酸组成和风味形成具有特殊意义。4轮次酒醅中共检出309个细菌属,优势细菌属17个,醋杆菌属(Acetobacter)相对丰度在堆积后期显著上升,至堆积结束达12.15%。该菌作为严格好氧的乙酸生产者,其在高温期的持续富集表明本轮次堆积过程维持了较好的有氧条件,对乙酸酯类风味物质的合成具有重要生态意义[23]。核心菌群中,Virgibacillus相对丰度从起始的50.49%持续降至18.82%,其与Kroppenstedtia、Oceanobacillus和Bacillus等细菌属为发酵72 h的主要菌群,这一变化与堆积温度持续上升同步,说明温度对群落结构的筛选作用。此外,火山渣芽孢杆菌属(Scopulibacillus)、葡萄球菌属(Staphylococcus)和片球菌属(Pediococcus)等菌属在4轮次酒醅中亦有检出。5轮次酒醅共检出306个细菌属,优势细菌属14个。Kroppenstedtia相对丰度在0~24 h内相对稳定,当发酵24 h之后相对丰度增加并趋于稳定,在48 h达到最高值(35.51%)。与4轮次相比,Acetobacter相对丰度在48 h时为1.15%,反映了轮次间堆积工艺参数的差异及微生物对微环境变化的敏感响应。此外,Scopulibacillus和高温放线菌属(Thermoactinomyces)在5轮次中亦有检出,其中Thermoactinomyces作为典型嗜热放线菌,可分泌多种水解酶系,在高温条件下对原料降解和风味前体生成具有关键作用[24]。综上,尽管各轮次细菌群落在发酵过程中发生动态演替,但Virgibacillus、Kroppenstedtia、Oceanobacillus和Bacillus作为核心菌群相对丰度始终保持稳定,演替规律呈现出清晰的温度驱动特性,随着堆积温度升高,Virgibacillus等中温菌属相对丰度下降,而Kroppenstedtia、Bacillus等嗜热菌属的竞争优势显著增强。这些核心菌群通过其不同的温度适应性及代谢功能在发酵不同阶段发挥关键作用,共同构成酱香型白酒酿造过程稳定的微生物功能基础。
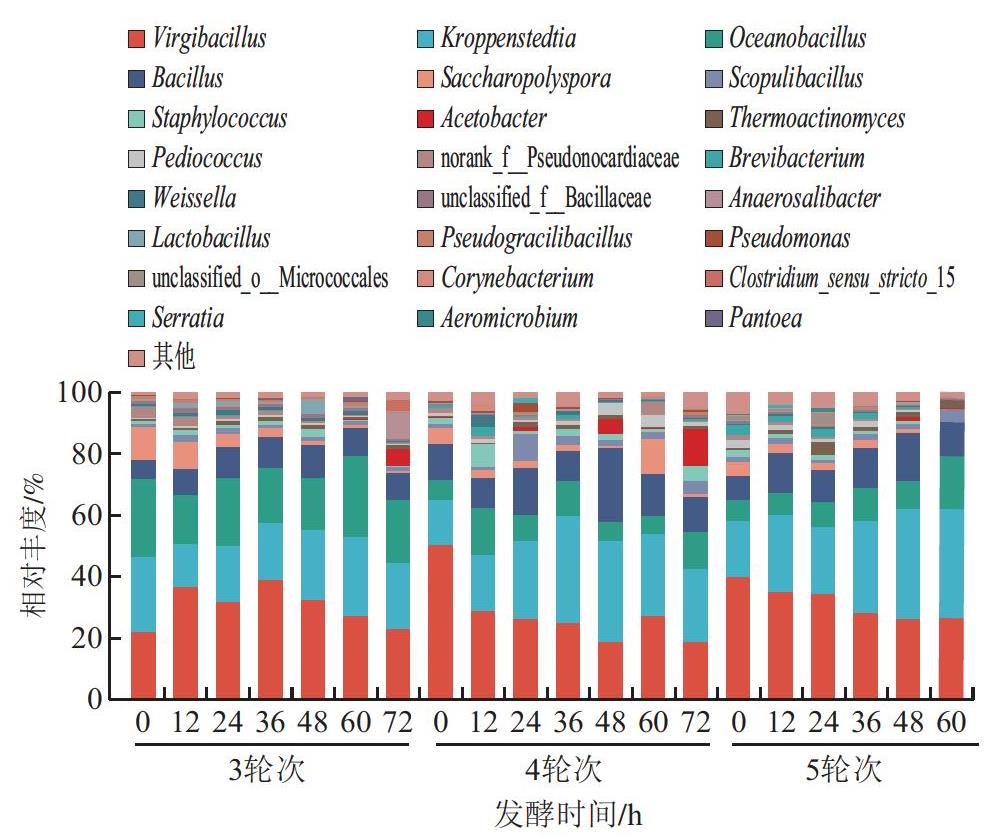
图4 基于属水平不同轮次酒醅样品细菌群落结构
Fig.4 Bacterial community composition of fermented grain samples from different rounds at the genus level
2.3.2 真菌群落结构
所有酒醅样品共检出147个真菌属,相对丰度大于1%的优势真菌属共16个,由图5可知,红曲霉属(Monascus)和拟青霉属(Paecilomyces)在所有样品中的相对丰度均大于5%,为各轮次共有的核心优势真菌属。具体地,3轮次酒醅共检出74个真菌属,其中优势真菌属9个。Paecilomyces在发酵36 h时的相对丰度达到最高值(63.71%),其相对丰度峰值出现在48 h堆积温度显著升高之前。研究显示,该菌属在40~45 ℃条件下分泌的纤维素酶和半纤维素酶活力最佳[25],表明堆积前期32~40 ℃的升温过渡阶段已能满足其生长需求;之后随堆积温度升高,其相对丰度逐渐下降,优势地位逐渐被更耐热的Monascus所取代。Monascus相对丰度从初始的14.61%持续上升至发酵结束时的97.95%。研究显示,该菌属在45~50 ℃高温环境下仍能保持较高的代谢活性,不仅能分泌淀粉酶、蛋白酶等多种水解酶系,还表现出较强的酯化能力,对酱香风味物质的形成具有重要贡献[26]。4轮次酒醅共检出123个真菌属,优势真菌属达10个。Monascus在24~72 h相对丰度均较高,其在发酵72 h达到最高值(79.58%);Paecilomyces相对丰度在24 h最高(68.50%),之后出现下降,发酵72 h仅为7.16%。此外,Pichia、Zygosaccharomyces相对丰度在发酵48 h分别升高至19.47%、7.66%,这些酵母菌具有较强的酯类合成能力[27-28],可能对4轮次特殊风味的形成具有重要贡献。5轮次酒醅共检出86个真菌属,优势真菌属11个。Paecilomyces在24~36 h占据绝对优势,其相对丰度分别达80.81%和79.18%,后期虽逐步下降但至发酵结束仍为42.70%。Monascus相对丰度在整个发酵期间整体呈稳定上升趋势,由初始9.55%持续增长至54.17%,进一步证实该菌属的嗜热特性。此外,Saccharomyces相对丰度在发酵60 h达1.96%,其较强的乙醇发酵能力可能对5轮次酒醅的代谢特征产生特定影响。综上,与细菌群落的研究结果一致,尽管各轮次真菌群落在发酵过程中发生动态演替,但其核心菌群的组成及其时序变化规律同样保持高度稳定。Monascus与Paecilomyces作为主要核心功能真菌,在发酵不同阶段通过代谢分工发挥关键作用,且其演替规律呈现出与温度变化相协同的趋势。该结论证实,在酱香型白酒酿造过程中,真菌群落这种稳定有序的演替规律,对于维持发酵过程的代谢平衡和保障酒体品质一致性具有至关重要的作用。
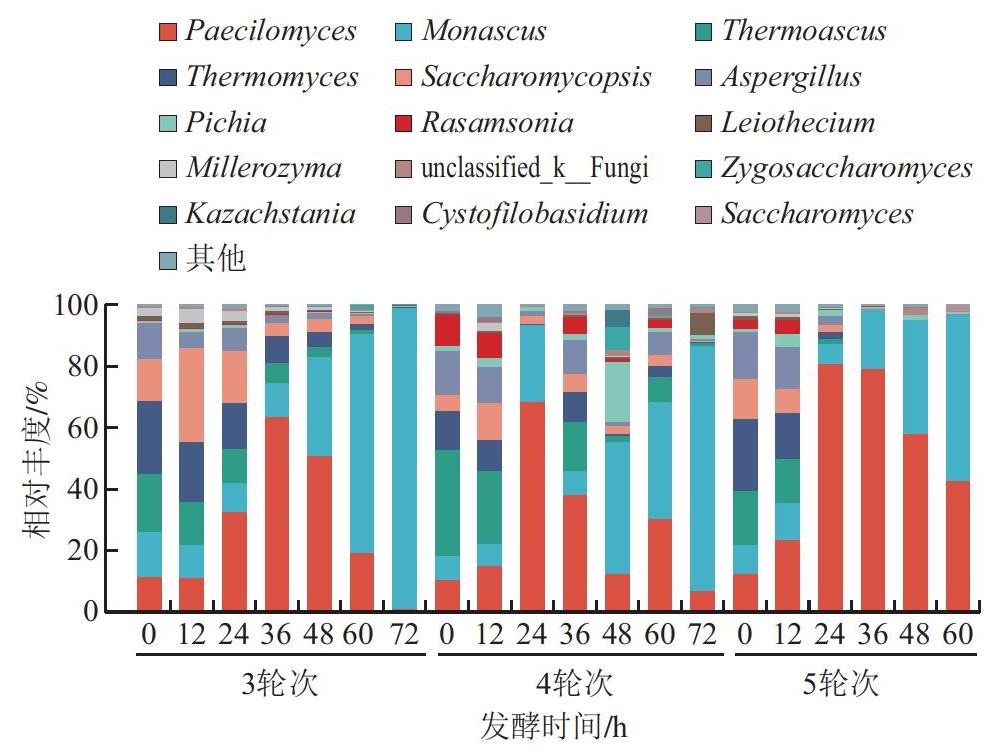
图5 基于属水平不同轮次酒醅样品真菌群落结构
Fig.5 Fungal community structure of fermented grain samples from different rounds at the genus level
2.4 高温堆积酒醅关键酶活力变化
由图6可知,3轮次表现出稳健和协同的酶活力特性,其液化酶、糖化酶和纤维素酶活力均呈现先升后降的单峰曲线,并于60 h同步达到峰值,表明该轮次的微生物群落代谢活动协调一致,淀粉、纤维素等大分子物质的降解与糖化过程衔接紧密。蛋白酶活力在187.69~240.77 U/g 范围内,变化幅度较小,表明该轮次酶系具有较好的稳定性,反映出微生物代谢活动的持续性,为整个酿造过程提供了稳定、充足的底物基础。与3轮次相比,4轮次则展现出快速响应与后期分化的鲜明特征,其液化酶与糖化酶活力在堆积12 h时较高,分别为7 718.27 U/g 和5 585.67 U/g,高于其他轮次,这可能与较高的起堆温度(34.00 ℃)促使微生物迅速激活有关。液化酶活力整体维持较高水平,至发酵结束时达8 240.11 U/g,可能与Kroppenstedtia等嗜热菌在后期成为优势菌群,持续分泌耐热液化酶有关。蛋白酶活力呈逐渐下降趋势,至堆积结束时为126.11 U/g;纤维素酶活力整体呈先平稳后上升的趋势。这种前期快速响应、后期专攻淀粉降解的代谢策略,反映了4轮次特有的代谢规律。5轮次的糖化酶活力处于较低水平,在961.33~1 909.21 U/g 之间波动;液化酶活力在发酵结束时为2 986.54 U/g,但仍显著低于其他轮次同期水平;蛋白酶和纤维素酶活力整体呈先上升后下降的趋势,与其他轮次相比,该轮次各酶活力整体偏低,表明其物质分解能力相对较弱。这种整体偏弱且无序的酶活力特征,与该轮次真菌多样性急剧下降、细菌丰富度持续降低的结果一致。这表明5轮次较快的升温速率可能抑制了大部分中温酶系产生菌的活性。综上,3个轮次的酶活力呈现出明显不同的变化规律,3轮次以稳定性为特征,4轮次以快速响应为特点,5轮次则表现出整体偏弱的趋势。这种差异反映了各轮次在酱香型白酒酿造过程中承担的不同代谢功能,为理解多轮次发酵的工艺特性提供了重要依据。
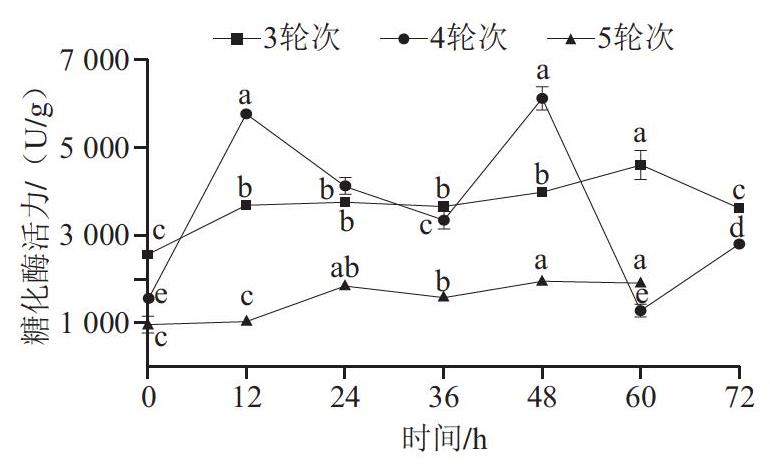
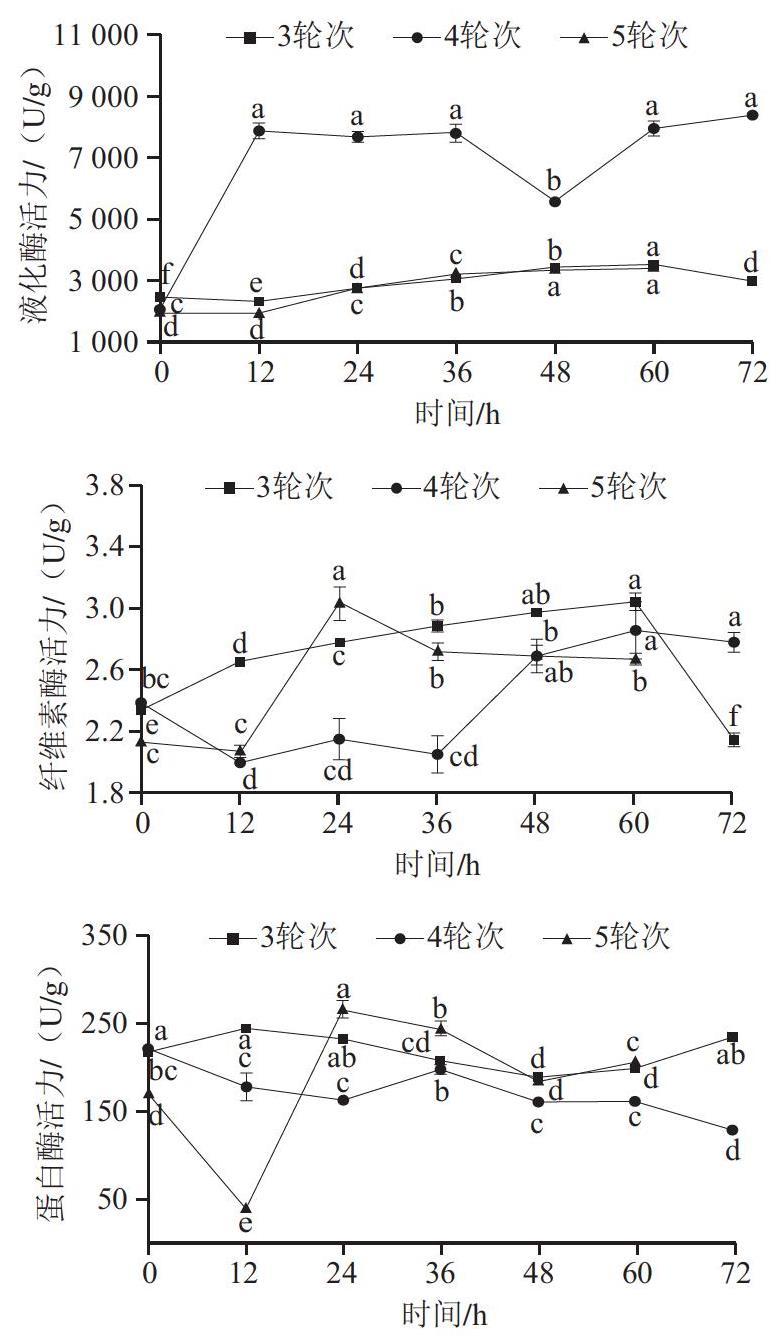
图6 不同轮次堆积酒醅发酵过程中各种酶活力
Fig.6 Enzyme activities of stacking fermented grains during fermentation across different rounds
2.5 微生物菌群与温度及酶活力的关联性分析
对3、4、5轮次酒醅细菌、真菌群落与温度及酶活力进行RDA与相关性分析。由图7A可知,前2个排序轴累计解释了81.7%的细菌群落结构变异(RDA1=70.3%、RDA2=11.4%)。环境因子的箭头长度代表其对群落的影响程度,温度箭头最长且与第1轴高度重合,表明温度是驱动细菌群落演替的关键环境因子;液化酶、糖化酶、纤维素酶和蛋白酶等酶活力指标与群落分布均呈显著相关性。由图7B可知,前2个排序轴累计解释了真菌群落结构变异的82.9%(RDA1=67.9%、RDA2= 15.0%)。与细菌群落一致,温度箭头同样较长且与 第1轴高度重合,表明温度也是驱动真菌群落演替的核心环境因子;各酶活力指标亦呈显著相关性。
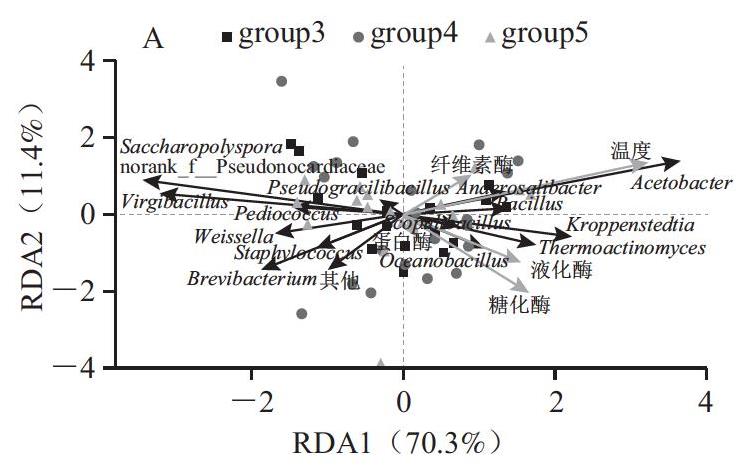
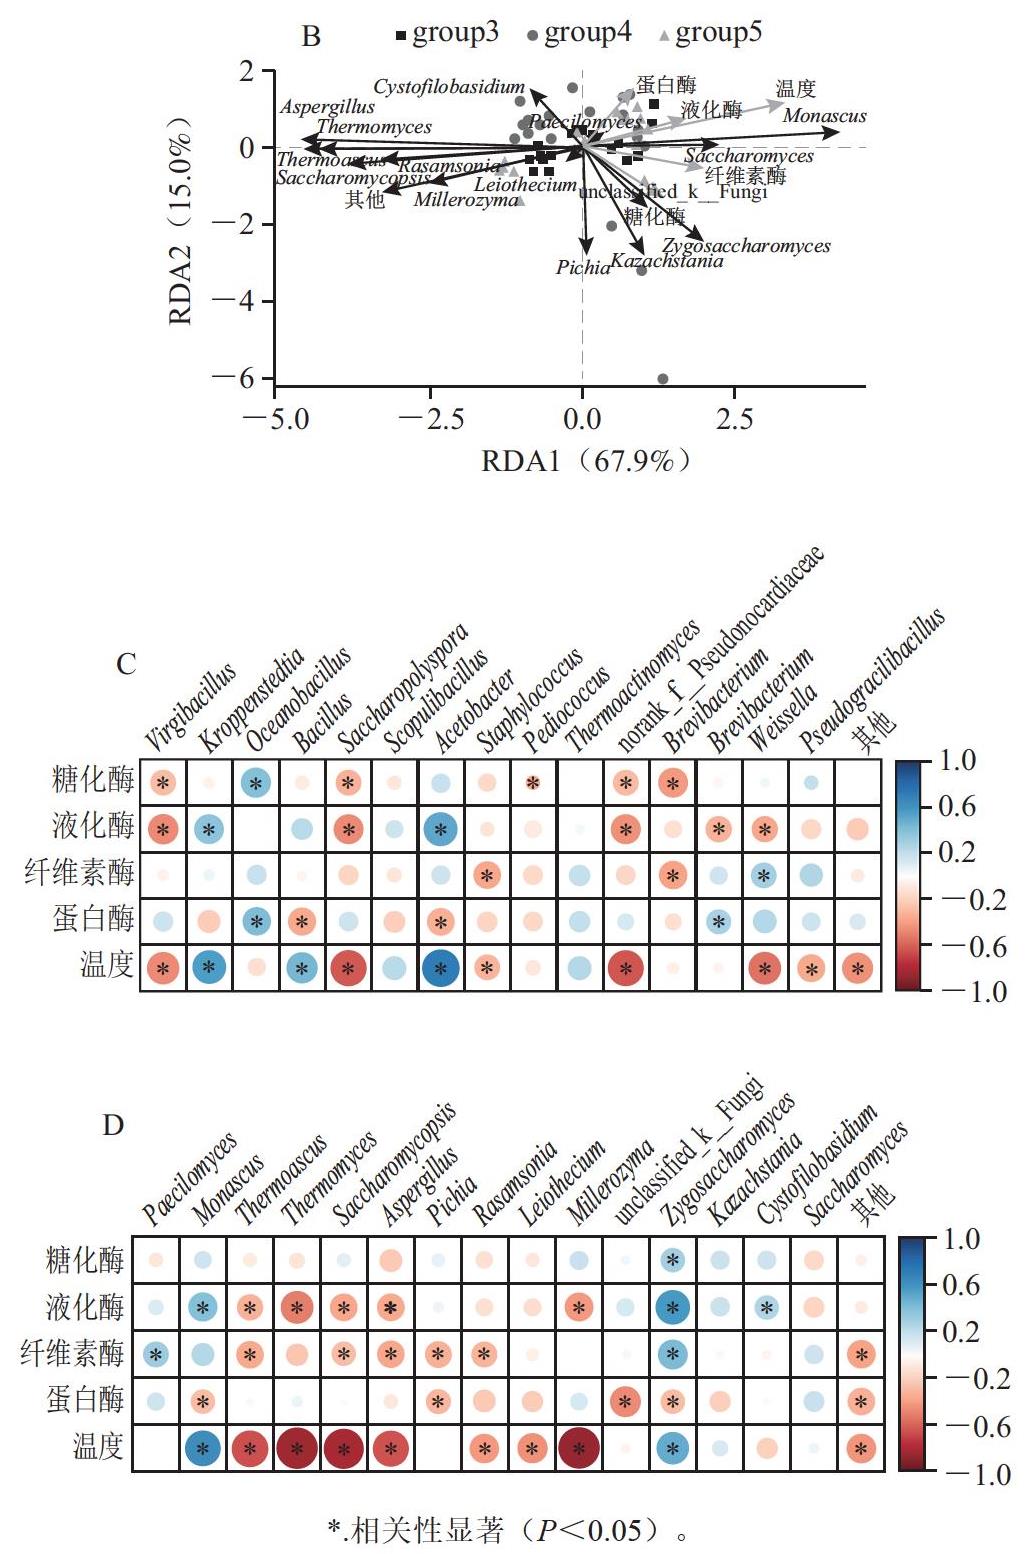
图7 酒醅酶活力、温度与细菌属(A、C)和真菌属(B、D)关联性分析
Fig.7 Correlation analysis of enzyme activity and temperature with bacterial genera (A, C) and fungal genera (B, D) in fermented grains
由图7C可知,温度对细菌群落的定向选择作用显著,堆积过程中的升温显著富集嗜热及耐热类群,并抑制中温类群。其中,Kroppenstedtia、Bacillus和Acetobacter与温度呈显著正相关(P<0.05)。这些菌属均为典型的高温适应性功能菌群[2,6,23]。与之相反,Virgibacillus、糖多孢菌属(Saccharopolyspora)和魏斯氏菌属(Weissella)等中温菌属与温度呈显著负相关(P<0.05),其相对丰度随堆积温度上升而显著降低[19-20,29]。从菌群与酶活力的对应关系来看,液化酶活力和Kroppenstedtia、Acetobacter显著正相关(P<0.05)。相关研究表明,Kroppenstedtia是淀粉水解酶系的关键贡献者,其编码的α-淀粉酶和α-1,4-葡萄糖苷酶在淀粉长链裂解中发挥核心作用[30];Acetobacter虽与液化酶活力呈正相关,但其主要功能在于将乙醇氧化为乙酸,参与有机酸代谢[23];Oceanobacillus与糖化酶、蛋白酶活力均呈显著正相关(P<0.05),该菌属是堆积酒醅中的优势功能菌群,具有分泌糖化酶等淀粉水解酶类的功能,且能分泌中性蛋白酶,将蛋白质降解为多肽和氨基酸,分解产物为美拉德反应生成吡嗪类、呋喃类等酱香风味物质提供前体[29,31]。纤维素酶活力与Weissella呈显著正相关(P<0.05),相关研究表明,Weissella是能够分泌纤维素酶的功能菌群,其基因组中普遍存在编码糖苷水解酶等碳水化合物活性酶[32];此外,在固态发酵体系中添加纤维素酶可显著富集魏斯氏菌属[33]。上述证据共同印证了该菌属与纤维素降解的密切关联。
由图7D可知,温度对真菌群落的定向选择作用同样显著。Monascus与温度呈显著正相关(P<0.05),该菌属在堆积末期成为绝对优势真菌类群,是高温堆积阶段发挥核心功能的嗜热真菌[26];其分泌的高活性液化酶可在高温条件下快速裂解淀粉生成糊精与低聚糖,因此液化酶活力与Monascus呈显著正相关[24]。Zygosaccharomyces与温度呈正相关(P<0.05),该菌属具有高耐性发酵特性,能够利用糖化产生的可发酵糖进行增殖,与糖化酶和纤维素酶活力呈显著正相关[28];Pichia具有较强的酯类合成能力[27],二者在4轮次中的富集可能对该轮次酯类风味物质的形成具有重要贡献。Paecilomyces与纤维素酶活力呈显著正相关,进一步证实了其纤维素降解功能[25]。
上述结果表明,温度通过定向热筛选机制,在细菌中富集克罗彭斯特菌属、芽孢杆菌属和醋杆菌属等耐热菌群,在真菌中富集红曲霉属等耐热菌群,同时抑制枝芽孢杆菌属、糖多孢菌属和魏斯氏菌属等中温菌群,从而构建起以耐热功能菌为核心的优势微生物群落。该群落内部的功能分工直接决定液化酶、糖化酶、纤维素酶和蛋白酶等关键酶活力的动态变化规律,进而形成轮次间不同的代谢特征。该结果与Xiao Chen等[34]在中温大曲中的发现一致,均证实温度是微生物群落演替的核心驱动力;Yang Liang等[35]进一步发现高温大曲不同空间层次的微生物群落受温度、pH值和酸度等环境因子的差异化驱动,与本研究中温度在轮次尺度上的主导作用相互印证。此外,与Li Yuanbu等[16]报道的低温异常发酵(低于40 ℃)中Lactobacillus主导不同,本研究的正常高温发酵(高于50 ℃)中芽孢杆菌属和克罗彭斯特菌属为核心耐热菌群,进一步凸显了温度对微生物群落结构及代谢功能的塑造作用。
3 结 论
本研究以酱香型白酒3、4、5轮次高温堆积酒醅为对象,结合高通量测序与酶活力测定,揭示了各轮次堆积过程中温度变化、微生物演替、关键酶活力变化及其内在关联。结果显示,细菌群落以枝芽孢杆菌属、克罗彭斯特菌属、大洋芽孢杆菌属和芽孢杆菌属为核心,真菌以红曲霉属和拟青霉属为主导,核心菌群组成及演替时序跨轮次保持稳定。温度是驱动群落演替的关键因子,各轮次特异性升温模式通过热筛选塑造差异化优势菌群,进而决定不同的酶活动态。3轮次升温平缓,枝芽孢杆菌属与拟青霉属于中期占优,液化酶、糖化酶和纤维素酶3种酶活力协同稳步上升,代谢特征稳健;4轮次起堆温度最高,细菌丰富度在发酵后期显著提升,醋杆菌属、毕赤酵母属等显著富集,酶活响应迅速但后期分化明显;5轮次升温最快,嗜热的克罗彭斯特菌属竞争优势突出,群落代谢多样性偏低,各酶活水平低且增长迟缓。RDA与Spearman相关分析进一步表明,液化酶活力与克罗彭斯特菌属、红曲霉属显著正相关(P<0.05);糖化酶与蛋白酶均与大洋芽孢杆菌属显著正相关(P<0.05);纤维素酶与拟青霉属显著正相关(P<0.05)。这种菌-酶功能分工格局直接决定了轮次间代谢功能的分异。本研究从微生物生态学角度揭示了温度、微生物和酶活力之间的内在联系,为通过调控堆积参数优化特定轮次发酵进程提供了理论依据。
[1] 崔利. 酱香型白酒“4211”关键工艺与“关键工艺”认证标准及二者之间的关系[J]. 酿酒, 2024, 51(6): 2-5. DOI:10.3969/j.issn.1002-8110.2024.06.003.
[2] Zhang Hongxia, Wang Li, Tan Yuwei, et al. Effect of Pichia on shaping the fermentation microbial community of sauce-flavor Baijiu[J].International Journal of Food Microbiology, 2021, 336: 108898.DOI:10.1016/j.ijfoodmicro.2020.108898.
[3] 翟晶娟, 李星禹. 堆积对麸曲酱香型白酒酿造风味形成的影响[J].酿酒, 2025, 52(3): 88-90. DOI:10.3969/j.issn.1002-8110.2025.03.023.
[4] Wang Huan, Huang Yongguang, Huang Yunli. Microbiome diversity and evolution in stacking fermentation during different rounds of Jiang-flavoured Baijiu brewing[J]. LWT-Food Science and Technology,2021, 143: 111119. DOI:10.1016/j.lwt.2021.111119.
[5] 吴成, 程平言, 谢丹, 等. 酱香型白酒4轮次堆积发酵理化因子、风味物质与微生物群落相关性分析[J]. 食品科学, 2023, 44(2): 240-247. DOI:10.7506/spkx1002-6630-20220401-003.
[6] 黄俊秋, 王松涛, 张宿义, 等. 酱香白酒第5轮堆积发酵过程菌群演替与有机酸关联分析[J]. 食品科学, 2025, 46(18): 102-114.DOI:10.7506/spkx1002-6630-20250303-017.
[7] 安凯园, 杜艳红, 聂建光, 等. 酱香型白酒生产堆积酒醅中微生物、理化因子以及风味物质研究进展[J]. 中国酿造, 2025, 44(6): 20-25.DOI:10.11882/j.issn.0254-5071.2025.06.004.
[8] 班世栋, 王晓丹, 陈孟强, 等. 酱香型大曲中具产酶功能霉菌的分离筛选[J]. 酿酒, 2014, 41(4): 31-36. DOI:10.3969/j.issn.1002-8110.2014.04.008.
[9] 王晓丹, 徐佳, 周鸿翔, 等. 酱香型大曲中分离到的阿姆斯特丹散囊菌产酶产香特性[J]. 食品科学, 2016, 37(11): 154-159. DOI:10.7506/spkx1002-6630-201611027.
[10] 黄永光. 酱香型白酒酿造中Aspergillus hennebergii及其分泌酸性蛋白酶的研究[D]. 无锡: 江南大学, 2014.
[11] 曾德勇, 方镒, 刘涛, 等. 酱香型高温大曲中高产蛋白酶细菌的分离及鉴定[J]. 酿酒科技, 2015(3): 27-30. DOI:10.13746/j.njkj.2014358.
[12] 卫春会, 黄治国, 黄丹, 等. 高温大曲高产蛋白酶菌株的分离鉴定及其产酶性能研究[J]. 食品与机械, 2014, 30(4): 24-29. DOI:10.13652/j.issn.1003-5788.2014.04.007.
[13] Wu Xianyu, Jiang Qianer, Wang Zhishan, et al. Diversity, enzyme production and antibacterial activity of Bacillus strains isolated from sesame-flavored liquor Daqu[J]. Archives of Microbiology, 2021, 203(9): 5831-5839. DOI:10.1007/s00203-021-02552-8.
[14] 戴奕杰, 李宗军, 田志强. 酱香型白酒酒醅酶活性和轮次酒理化指标分析[J]. 中国酿造, 2019, 38(2): 31-36. DOI:10.11882/j.issn.0254-5071.2019.02.007.
[15] 王丹丹. 白酒发酵过程中酶系与物系的相关性研究[D]. 北京: 北京理工大学, 2015.
[16] Li Yuanbu, Qin Xing, Zeng Xianglian, et al. Comprehensive analysis of spatiotemporal heterogeneity reveals the effects of physicochemical and biological factors on temperature rise during the Moutai-flavor Baijiu stacking fermentation process[J]. Chemical Engineering Journal, 2025, 508: 161049. DOI:10.1016/j.cej.2025.161049.
[17] 张梦梦, 张媛媛, 吴玉轩, 等. 不同堆积形状对芝麻香型白酒风味品质及微生物群落的影响[J]. 食品与发酵工业, 2026, 52(16): 218-228.DOI:10.13995/j.cnki.11-1802/ts.044755.
[18] Yang Liang, Xian Chun, Li Peng, et al. The spatio-temporal diversity and succession of microbial community and its environment driving factors during stacking fermentation of Maotai-flavor Baijiu[J]. Food Research International, 2023, 169: 112892. DOI:10.1016/j.foodres.2023.112892.
[19] Heyrman J, Logan N A, Busse H J, et al. Virgibacillus carmonensis sp. nov., Virgibacillus necropolis sp. nov. and Virgibacillus picturae sp. nov., three novel species isolated from deteriorated mural paintings, transfer of the species of the genus Salibacillus to Virgibacillus, as Virgibacillus marismortui comb. nov. and Virgibacillus salexigens comb. nov., and emended description of the genus Virgibacillus[J]. International Journal of Systematic and Evolutionary Microbiology, 2003, 53(2): 501-511. DOI:10.1099/ijs.0.02371-0.
[20] Oh Y J, Jang J Y, Lim S K, et al. Virgibacillus kimchii sp. nov.,a halophilic bacterium isolated from kimchi[J]. Journal of Microbiology,2017, 55(12): 933-938. DOI:10.1007/s12275-017-7386-3.
[21] Shi Wei, Chai Lijuan, Fang Guanyu, et al. Spatial heterogeneity of the microbiome and metabolome profiles of high-temperature Daqu in the same workshop[J]. Food Research International, 2022, 156: 111298. DOI:10.1016/j.foodres.2022.111298.
[22] Huang Yuhong, Yi Zhuolin, Jin Yanling, et al. Metatranscriptomics reveals the functions and enzyme profiles of the microbial community in Chinese Nong-flavor liquor starter[J]. Frontiers in Microbiology,2017, 8: 1747. DOI:10.3389/fmicb.2017.01747.
[23] Hao Fei, Tan Yuwei, Lü Xibin, et al. Microbial community succession and its environment driving factors during initial fermentation of Maotai-flavor Baijiu[J]. Frontiers in Microbiology, 2021, 12: 669201. DOI:10.3389/fmicb.2021.669201.
[24] 刘洋, 赵婷, 姚粟, 等. 一株芝麻香型白酒高温大曲嗜热放线菌的分离与鉴定[J]. 生物技术通报, 2012(10): 210-216. DOI:10.13560/j.cnki.biotech.bull.1985.2012.10.025.
[25] Yang Yang, Niu Mansi, Yu Hui, et al. Exploring the contribution of temperature-adapted microbiota to enzyme profile of saccharification in Daqu using metagenomics and metaproteomics[J]. LWT-Food Science and Technology, 2024, 197: 115916. DOI:10.1016/j.lwt.2024.115916.
[26] 吴怡雯, 冯睿, 周恒, 等. 红曲霉的分类学研究现状及展望[J].中国中药杂志, 2025, 50(23): 6571-6582. DOI:10.19540/j.cnki.cjcmm.20250908.601.
[27] 吕枫, 赵兴秀, 李仕鲁, 等. 酱香型白酒窖醅中耐高温产香酵母的筛选及性能研究[J]. 中国酿造, 2020, 39(11): 43-47. DOI:10.11882/j.issn.0254-5071.2020.11.009.
[28] 慕济锗, 刘治国, 孙仁杰, 等. 高耐性拜耳接合酵母在酱香型白酒中的应用[J]. 食品研究与开发, 2024, 45(10): 142-149; 189.DOI:10.12161/j.issn.1005-6521.2024.10.019.
[29] Li Hui, He Ruyi, Xiong Xiaomao, et al. Dynamic diversification of bacterial functional groups in the Baiyunbian liquor stacking fermentation process[J]. Annals of Microbiology, 2016, 66(3): 1229-1237. DOI:10.1007/s13213-016-1211-9.
[30] 杨阳, 魏阳, 刘晓彤, 等. 基于白酒发酵过程多组学数据挖掘大曲淀粉糖化酶及其协同应用效果解析[J]. 生物工程学报, 2025, 41(5):2101-2118. DOI:10.13345/j.cjb.240746.
[31] Liu Xu, Fu Junjie, Shen Hanjun, et al. Oceanobacillus in hightemperature Daqu: taxonomic diversity, metabolic characteristics and biofortification effect[J]. Process Biochemistry, 2025, 150: 68-79.DOI:10.1016/j.procbio.2025.01.002.
[32] Chaichana N, Singkhamanan K, Wonglapsuwan M, et al. Genomeguided characterization of Weissella species highlights strain-specific functional traits relevant to food fermentation and probiotics[J].Microbiology Spectrum, 2026, 14: e00331-26. DOI:10.1128/spectrum.00331-26.
[33] Wang Wenbo, Nie Yanshun, Tian Hua, et al. Microbial community,co-occurrence network relationship and fermentation lignocellulose characteristics of Broussonetia papyrifera ensiled with wheat bran[J]. Microorganisms, 2022, 10(10): 2015. DOI:10.3390/microorganisms10102015.
[34] Xiao Chen, Lu Zhenming, Zhang Xiaojuan, et al. Bio-heat is a key environmental driver shaping the microbial community of mediumtemperature Daqu[J]. Applied and Environmental Microbiology, 2017,83(23): e01550-17. DOI:10.1128/aem.01550-17.
[35] Yang Liang, Fan Wenlai, Xu Yan. Qu-omics elucidates the formation and spatio-temporal differentiation mechanism underlying the microecology of high temperature Daqu[J]. Food Chemistry, 2024,438: 137988. DOI:10.1016/j.foodchem.2023.137988.