白酒产业正向健康化方向演进,健康白酒已成为中国白酒行业重要发展趋势。孙宝国等[1]早在2016年提出,健康白酒应通过“内寻外加,自然强化”实现,为功能性白酒的开发奠定基础。1-脱氧野尻霉素(1-deoxynojirimycin,DNJ)是一种具有抗糖活性的生物碱,为α-葡萄糖苷酶的强效抑制剂。食品中的碳水化合物先水解生成二糖,二糖进一步在α-葡萄糖苷酶的催化作用下分解为可被机体吸收的单糖,DNJ能够竞争性结合α-葡萄糖苷酶的活性位点,抑制二糖分解,从而降低葡萄糖生成量,达到降血糖目的[2-3]。DNJ不仅能够有效抑制机体内糖类转化,降低血液中的葡萄糖生成量[4],而且在抗糖尿病[5]、抗肿瘤[6]、抗病毒[7]等多个领域展现出广阔的研究与应用前景。天然植物中DNJ含量普遍较低,化学合成成本高,这制约了DNJ的开发和应用[8]。微生物发酵合成DNJ可有效弥补上述缺陷,且微生物能够利用桑叶中的活性物质实现DNJ的生物合成与富集,是高效、安全的DNJ制备途径[9]。同时,白酒发酵过程以葡萄糖为微生物代谢底物,与产DNJ微生物的合成代谢路径高度契合[10],结合桑叶中天然DNJ含量高[11]、富含碳源及DNJ合成前体物质的优势,为酒类发酵体系DNJ内生强化、开发健康功能性酒体提供了良好的研究基础。
目前,针对DNJ高产菌株筛选、菌种改造及发酵制备技术已有相关研究报道。现有产DNJ菌株主要有放线菌和芽孢杆菌[12-14],植物乳植杆菌发酵桑叶也能有效提升DNJ产量[15]。牛葆鑫[16]从蚕砂中分离得到一株产DNJ的霍氏肠杆菌,通过桑源活性物质诱导调控实现菌株高产,其DNJ产量最高可达26.37 μg/mL。Lu Yu等[17]构建了一株高产DNJ解淀粉芽孢杆菌工程菌株,其DNJ产量达1 135.6 mg/L;Li Xujie等[18]也对解淀粉芽孢杆菌进行改造,在3 L发酵罐中DNJ产量达1 632.5 mg/L。现有研究已证实微生物发酵制备DNJ的可行性,且可实现较高的产量水平,但当前高产菌株多为工程菌株,应用于白酒、发酵酒生产的研究鲜见报道。
基于此,本研究从桑叶组织中分离筛选产DNJ内生菌,采用形态学观察及分子生物学技术进行鉴定,以实验室小试工艺模拟生产清香型白酒和米酒,系统优化桑叶添加量,考察筛选菌株与桑叶协同发酵对DNJ产量、出酒率及酒体品质的影响,为白酒和发酵酒中DNJ富集提供新策略。
1 材料与方法
1.1 材料与试剂
桑叶和桑树茎采摘自当地10年生以上桑树;干桑叶为市购;绿衣观音土曲(土曲)采自劲牌有限公司毛铺制曲车间;米酒曲采自广西天龙泉酒业有限公司制曲车间;糯高粱为东北红糯高粱。
土壤基因组DNA提取试剂盒 天根生化科技(北京)有限公司;Premix Taq 宝日医生物技术(北京)有限公司;正丙醇、乙酸乙酯、乙腈、乙酸铵标准品(均为色谱纯) 中国医药集团有限公司;淀粉酶(50 000 U/g)、糖化酶(100 000 U/g) 无锡市雪梅酶制剂科技有限公司。
LB培养基:蛋白胨10 g、酵母提取物 5 g、氯化钠10 g、琼脂20 g,溶于1 L蒸馏水中,pH 7.0左右,115 ℃灭菌30 min。
高粱汁培养基:1 kg高粱粉碎至60目,加入60 ℃温水和高粱粉质量5 的淀粉酶,于60 ℃反应2 h,105 ℃蒸30 min,冷却至60 ℃,继续加入5
 糖化酶和5
 淀粉酶,60 ℃反应24 h,过滤后再进行抽滤,用蒸馏水稀释调整糖度为8 °Brix。
1.2 仪器与设备
AL204电子分析天平 梅特勒-托利多仪器(上海) 有限公司;YXQ-LS-75S蒸汽灭菌锅、SPX-100B-Z生化培养箱 上海博迅实业有限公司;7890A气相色谱(gas chromatography,GC)仪 美国Agilent公司;Prominence Plus LC-20A高效液相色谱(high performance liquid chromatography,HPLC)仪 岛津(上海)实验器材有限公司; DZKW-D-1电热恒温水浴锅 北京市永光明医疗仪器有限公司;QYC-200全温空气摇床 上海福玛实验设备有限公司;Biometra Tone 96G聚合酶链式反应(polymerase chain reaction,PCR)仪 德国耶拿公司;LB50T糖度仪 广州市铭睿电子科技有限公司;DMA35 V4便携式密度计 奥地利安东帕(中国)有限公司;ECLIPSE E200生物显微镜 尼康精机(上海)有限公司。
1.3 方法
1.3.1 桑树内生菌株的分离与筛选
1.3.1.1 菌株分离纯化
从健康桑树上采集桑树茎叶,用自来水洗净表面污渍并晾干水分。桑树茎切成长度为2~3 cm的小段,75%乙醇浸泡3 min,再用2 g/100 mL次氯酸钠浸泡5 min,取出后用无菌水冲洗,待水分蒸干[19],茎分层剖开,并将所得碎片分别置于LB培养基表面;叶片切碎后进行研磨,用适量生理盐水进行梯度稀释,涂布LB培养基。上述平板均为实验组。以最后一次冲洗材料后的无菌水作为对照,取200 μL涂布LB培养基,37 ℃培养1~2 d,对照组无微生物长出则确定实验组分离获得的菌株为桑树内生菌。实验组平板置于37 ℃培养箱至长出菌落,采用平板划线分离法,挑取形态、色泽、大小不同的菌落涂布于LB培养基,直至获得纯培养。对纯培养菌株编号,接种于LB液体培养基,37 ℃培养18 h,制成种子液备用。
1.3.1.2 菌株初筛
取20 g桑叶粉于121 ℃灭菌20 min,接种40 mL筛选菌株种子液(OD600 nm值=0.8~1.0,下同),混匀后37 ℃培养7 d,加入400 mL水,90 ℃萃取4 h,发酵液过滤后旋蒸8 h,得到浓缩提取物后进行DNJ产量测定。
1.3.1.3 菌株复筛
为确认筛选菌株是否可在清香型白酒酿造过程中产DNJ,按照3%接种量将种子液接种于高粱汁培养基中,37 ℃培养7 d,发酵液8 000 r/min离心10 min,取上清液进行DNJ产量测定[20]。
1.3.2 筛选菌株鉴定
1.3.2.1 形态学观察
对菌株进行分离、纯化培养,直至获得单菌落;观察菌落表型特征,并采用革兰氏染色试剂盒处理菌体,借助生物显微镜开展细胞形态观察。
1.3.2.2 分子生物学鉴定
按照土壤基因组DNA试剂盒说明书提取细菌全基因组DNA,以其为模板,采用细菌16S rRNA基因通用引物27F和1492R进行PCR扩增[21],PCR扩增体系参照Premix Taq使用说明书:即Premix Taq 15 μL、引物对共1 μL、ddH2O 12 μL、DNA模板2 μL。PCR扩增条件:95 ℃预变性5 min;95 ℃变性30 s,55 ℃退火50 s,72 ℃延伸50 s,35个循环;72 ℃延伸10 min。PCR扩增产物纯度与完整性经1%琼脂糖凝胶电泳检测合格后送到武汉华大基因科技有限公司进行测序,将所得测序结果在NCBI GenBank数据库中进行BLAST同源性比对分析[22],选取同源性较高菌株的16S rRNA基因序列,使用MEGA 6.0软件中的邻接法构建系统发育树。
1.3.3 清香型白酒实验室小试实验
在实验室水平模拟清香型白酒生产工艺。称取260 g糯高粱,淘洗干净后于65 ℃热水中浸泡过夜,沥干水分后于115 ℃蒸粮10 min;初蒸完毕后将高粱置于65 ℃温水中闷粮5 min,使高粱吸饱水分;闷粮结束后再次沥干表面水分,于111 ℃复蒸10 min;复蒸结束后将熟粮摊晾至30 ℃左右,添加熟粮质量5 的土曲;土曲翻拌均匀后于30 ℃糖化24 h,即得糖化醅。取500 g糖化醅与500 g灭菌(121 ℃、20 min)酒糟(清香型白酒小试实验蒸酒后获得)混合,30 ℃发酵7 d[23],得到发酵醅。取100 g发酵醅,检测DNJ产量,取剩余发酵醅小火慢蒸,收集前100 mL酒样,计算出酒率[24],采用GC法检测酒样中乙酸乙酯、正丙醇、杂醇油含量[25-26]。
桑叶添加量优化实验:以仅添加熟粮质量5 的土曲为对照,实验组在添加熟粮质量5
 的土曲外,再分别添加熟粮质量1.5%、3.0%、4.5%、7.5%的桑叶。
菌株强化产DNJ实验:以仅添加熟粮质量5 土曲为对照1,以添加熟粮质量5
 土曲和最适桑叶添加量为对照2,实验组分为:1)添加5
 土曲和10 mL S3和S5菌株种子液;2)添加5
 土曲、最适桑叶添加量和10 mL S3和S5菌株种子液。
1.3.4 米酒实验室小试实验
称取200 g籼米,洗净沥干后加入200 mL水,121 ℃蒸煮10 min,蒸煮完毕后用筷子打散,待温度降至30 ℃左右,加入2 g米酒曲,翻拌完毕后于30 ℃糖化24 h,取出后加入260 mL蒸馏水,于30 ℃无氧发酵10 d。
桑叶添加量优化实验:以仅添加米酒曲为对照,实验组添加等质量米酒曲并分别加入原料质量1.5%、3.0%、4.5%、7.5%的桑叶,发酵完毕后过滤,测定滤液糖度和乙醇体积分数,用以评估不同添加量桑叶对米酒酒质的影响。
菌株强化发酵酒产DNJ实验:以仅添加米酒曲为对照1,以添加米酒曲及最适桑叶添加量为对照2,实验组分为:1)添加米酒曲和10 mL S3和S5菌株种子液;2)添加米酒曲、最适桑叶添加量和10 mL S3和S5菌株种子液。
1.3.5 DNJ产量测定
采用HPLC法检测酒醅或酒样中的DNJ产量[27]。准确称取40 g酒醅,加入5倍质量的水,80 ℃提取2次,每次2 h,提取液用滤纸过滤,酒样直接过滤,将收集到的滤液于60 ℃浓缩,干燥后得到提取物。精密称取提取物适量于10 mL容量瓶中,用乙腈-水(含6.5 mmol/L乙酸铵)(50∶50,V/V)溶液溶解并定容,摇匀,经0.22 μm有机相微孔滤膜过滤,于4 ℃保存备用。
HPLC条件:Shodex Asahipak NH2P-50色谱柱(250 mm×4.6 mm,5 μm);蒸发光散射检测器,漂移管温度100 ℃,氮气流速2.5 L/min,柱温40 ℃,乙腈-水(6.5 mmol/L乙酸铵)(82∶18,V/V)等度洗脱,流动相流速1.0 mL/min。
定性定量分析:根据保留时间进行定性分析,采用外标法进行定量分析。
1.4 数据处理
采用Excel 2019进行数据处理。
2 结果与分析
2.1 产DNJ菌株的分离与筛选
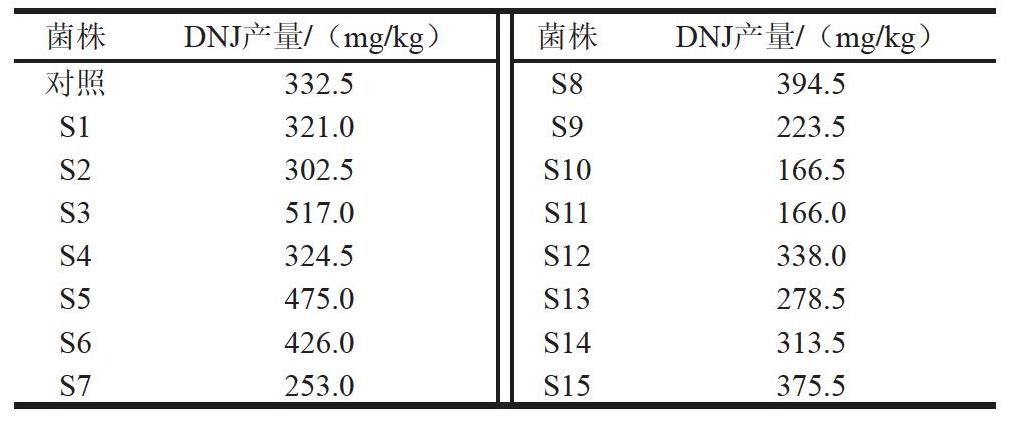
由表1可知,从桑树茎叶共分离纯化得到15株内生菌,编号为S1~15,相比于不添加菌株的对照,S3和S5发酵桑叶产DNJ能力较强,DNJ产量分别为517.0 mg/kg和475.0 mg/kg,与不添加菌株对照相比,DNJ产量分别提升55.5%和42.9%,表明S3和S5能够有效利用桑叶中丰富的DNJ前体物质进行代谢转化,合成DNJ。具有合成DNJ能力的微生物可以葡萄糖为前体代谢生成DNJ[28]。为探究S3和S5在以高粱为主要原料的白酒酿造体系中的产DNJ潜力,以主要成分为葡萄糖的高粱汁为发酵培养基,对其发酵产物进行检测,结果表明,S3和S5在高粱汁培养基中的DNJ产量分别为85.96 mg/L和80.75 mg/L,表明S3和S5具有利用高粱汁中糖源合成DNJ的能力,但其DNJ产量远低于发酵桑叶的DNJ产量,因此在酿造过程中可通过协同添加桑叶的方式提升DNJ产量。
表1 15株桑源内生菌株发酵桑叶产DNJ能力
Table1 DNJ yield from mulberry leaf fermentation by 15 mulberry-derived endophytic strains
菌株DNJ产量/(mg/kg)菌株DNJ产量/(mg/kg)对照332.5S8394.5S1321.0S9223.5S2302.5S10166.5S3517.0S11166.0S4324.5S12338.0S5475.0S13278.5S6426.0S14313.5S7253.0S15375.5
2.2 菌株S3和S5的鉴定
2.2.1 菌株S3和S5形态学观察
由图1可知,S3菌落呈圆形,白色,表面湿润有光泽,S3革兰氏染色为阳性,显微形态为圆形。S5菌落呈扁平状,乳白色,边缘不规则,表面干燥,具有芽孢杆菌典型的褶皱,S5革兰氏染色为阳性,显微形态为杆状。
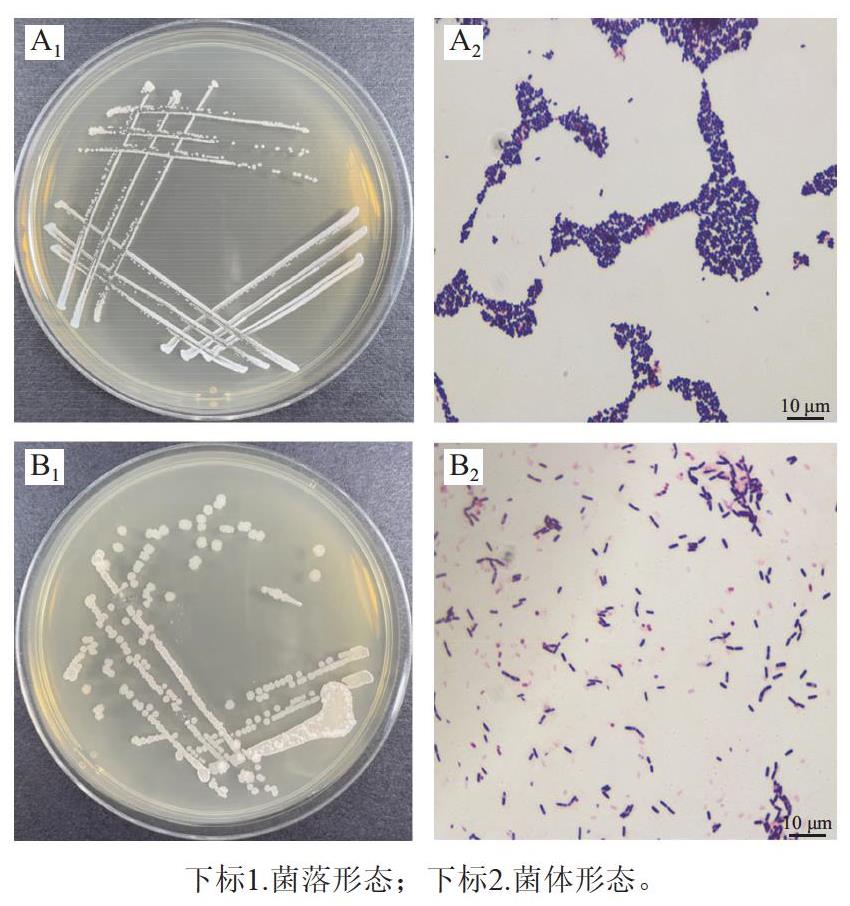
图1 菌株S3(A)和S5(B)的菌落形态及菌体显微形态
Fig.1 Colonial and microscopic morphologies of strains S3 (A) and S5 (B)
2.2.2 菌株S3和S5分子生物学鉴定
由图2可知,菌株S3和S5分别与巴氏葡萄球菌(Staphylococcus pasteuri)和解淀粉芽孢杆菌(Bacillus amyloliquefaciens)聚于一支,同源性较高。因此,S3、S5分别被鉴定为巴氏葡萄球菌和解淀粉芽孢杆菌。
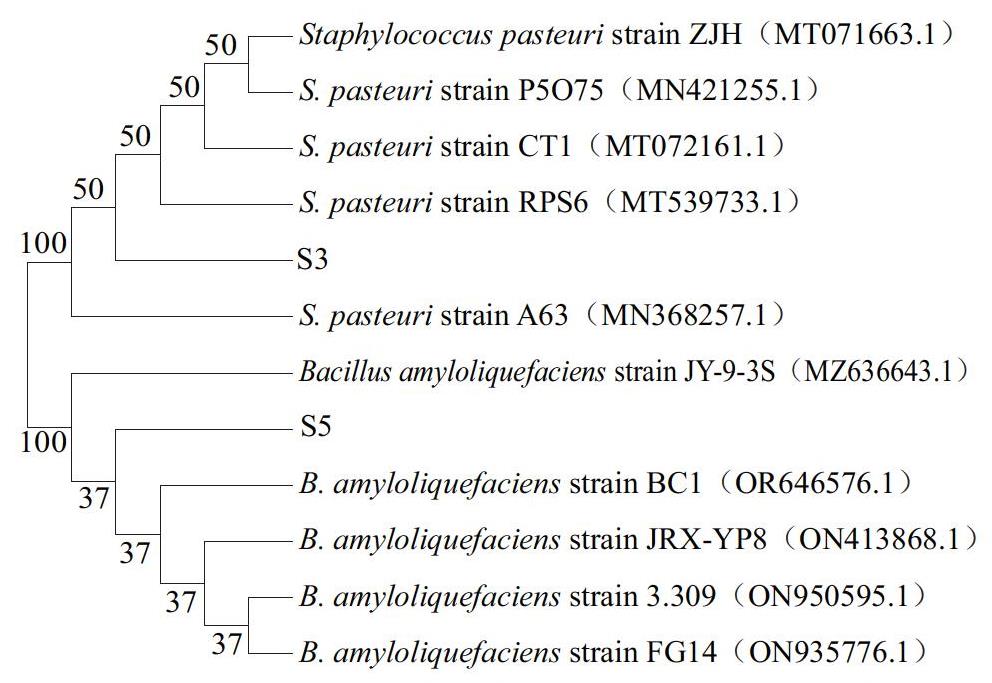
图2 基于16S rRNA基因序列的菌株S3和S5系统发育树
Fig.2 Phylogenetic tree of strains S3 and S5 based on 16S rRNA gene sequences
2.3 桑叶添加量选择
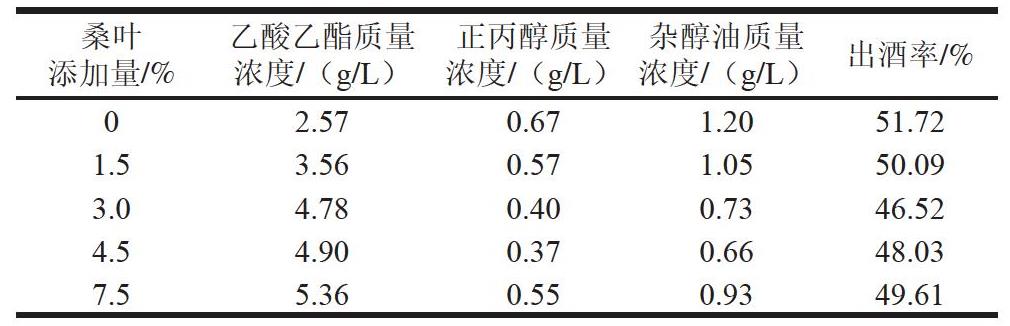
由表2可知,在出酒率方面,不添加桑叶时出酒率为51.7%,桑叶添加量为1.5%~7.5%时,出酒率为46.52%~50.09%,各组间差异较小,桑叶添加量3.0%时,出酒率降幅最高(10.05%),表明适量添加桑叶对出酒率影响有限。
表2 不同桑叶添加量对出酒率及风味指标的影响
Table2 Effects of different mulberry leaf additions on liquor yield and flavor indicators
桑叶乙酸乙酯质量正丙醇质量浓度/(g/L)出酒率/%杂醇油质量添加量/%浓度/(g/L)浓度/(g/L)02.570.671.2051.721.53.560.571.0550.093.04.780.400.7346.524.54.900.370.6648.037.55.360.550.9349.61
在酒体风味指标方面,桑叶的添加对乙酸乙酯、正丙醇及杂醇油产量具有明显影响。随着桑叶添加量在0%~7.5%范围内的增加,乙酸乙酯产量呈持续上升趋势;而正丙醇与杂醇油产量则表现出先降后升的变化趋势。当桑叶添加量为4.5%时,酒质风味指标改善效果最为突出,乙酸乙酯产量为4.90 g/L,较对照组提升90.7%,正丙醇和杂醇油产量分别为0.37、0.66 g/L,较对照组分别降低44.8%和45.0%。当桑叶添加量提高至7.5%时,乙酸乙酯提升幅度最高,可达108.6%,然而此时酒体中正丙醇和杂醇油降低幅度较低,分别为17.9%及22.5%。综上,确定最适桑叶添加量为4.5%。
2.4 桑源内生菌协同桑叶发酵对清香型白酒酒醅DNJ 产量、出酒率及风味指标的影响
由表3可知,所有实验组酒样中均未检出DNJ。这是由于DNJ的沸点高达361.1 ℃,在蒸馏过程中无法随酒蒸气挥发进入酒样。在单独添加菌株S3、S5的处理组中,酒醅中同样未检出DNJ。分析其原因,绿衣观音土曲微生物种类丰富、菌群间竞争激烈,与高粱汁高糖环境相比,菌株S3和S5在酒醅体系中可利用的糖源底物较为有限,产DNJ能力受到抑制,致使酒醅中DNJ积累量低于检测限。与此同时,菌株S3和S5的单独添加使乙酸乙酯产量分别降低43.6%和37.9%,正丙醇产量分别下降47.8%和43.5%,杂醇油产量降幅相对较小,分别为12.5%和8.3%,各组出酒率无明显变化。上述结果表明,菌株S3和S5的单独添加对白酒乙酸乙酯的生成具有一定抑制效应,但对正丙醇的降低具有积极 作用。
在发酵过程中添加4.5%桑叶(对照2)时,酒醅中DNJ产量为39.25 mg/kg,主要来源于桑叶自身所含DNJ。与对照1相比,对照2的乙酸乙酯产量提升72.3%,正丙醇和杂醇油产量分别降低34.8%和29.2%,再次证实了桑叶对白酒风味品质的积极调控作用。
表3 桑源内生菌协同桑叶发酵对清香型酒醅与酒样DNJ产量、出酒率及风味指标的影响
Table3 Effects of synergistic fermentation of mulberry leaves by mulberry-derived endophytes on DNJ yield, liquor yield and flavor quality of light-flavor fermented grains and liquor samples
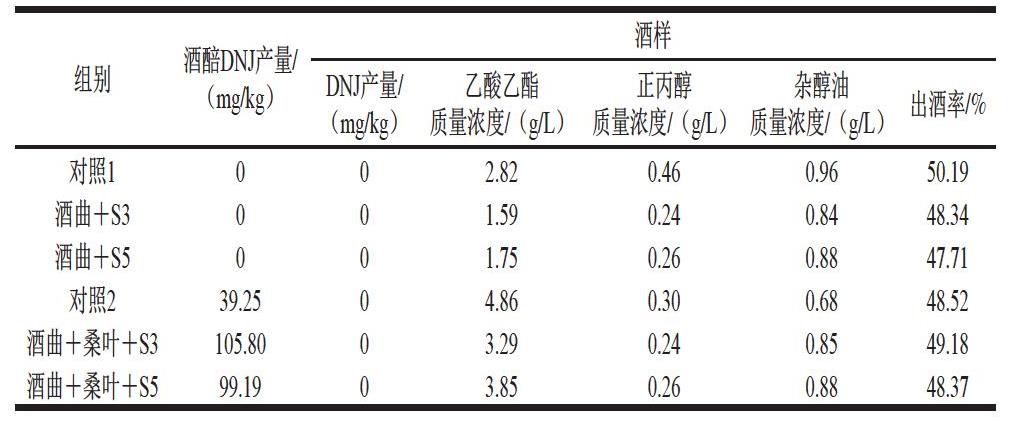
组别酒醅(mDgN/kJg产)量/D(NmJg产/kg量)/质量乙浓酸度乙/(酯g/L)质量浓酒正度样丙/醇(g/L)质量浓杂度醇/油(g/L)出酒率/%对照1002.820.460.9650.19酒曲+S3001.590.240.8448.34酒曲+S5001.750.260.8847.71对照239.2504.860.300.6848.52酒曲+桑叶+S3105.8003.290.240.8549.18酒曲+桑叶+S599.1903.850.260.8848.37
在添加4.5%桑叶的基础上分别添加菌株S3和S5进行协同发酵,酒醅中DNJ产量分别升至105.80 mg/kg和99.19 mg/kg,较仅添加桑叶的对照2分别提升169.6%和152.7%,表明桑叶与产DNJ菌株的协同发酵能够显著促进DNJ在酒醅中的积累。然而,与对照2相比,酒曲+桑叶+S3组和酒曲+桑叶+S5组乙酸乙酯产量分别下降32.3%和20.8%,正丙醇产量分别降低20.0%和13.3%,而杂醇油产量分别增加25.0%和29.4%,与单独添加菌株组的结论一致,进一步说明S3和S5菌株对乙酸乙酯的生成具有一定抑制效应。
综合与对照1的横向比较,桑叶与菌株的协同发酵在整体上仍表现出改善酒质的正向效果:酒曲+桑叶+S3组和酒曲+桑叶+S5组乙酸乙酯产量分别较对照1提升16.7%和36.5%,正丙醇产量分别降低47.8%和43.5%,杂醇油产量分别降低11.5%和8.3%,各处理组出酒率无明显差异。上述结果表明,在桑叶与菌株协同作用下,酒醅DNJ产量得到明显提升,同时对乙酸乙酯的抑制程度弱于单独添加菌株处理,整体酒质优于单纯菌株强化组,兼顾了功能性成分积累与酒体风味品质的协调统一。
2.5 桑源内生菌协同桑叶发酵对米酒糖度、乙醇含量及DNJ产量的影响
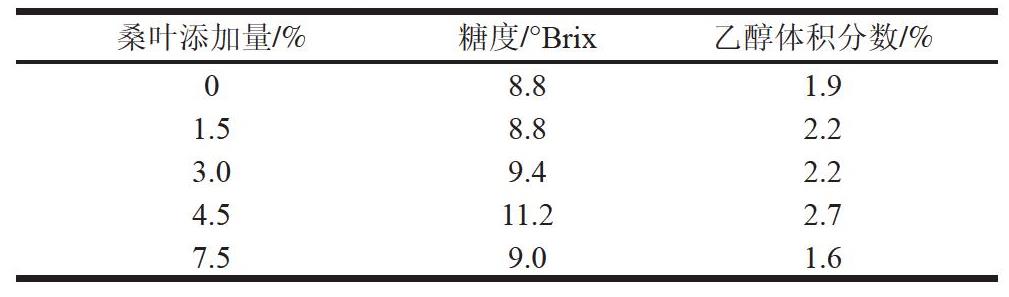
由于DNJ沸点高,无法通过蒸馏进入白酒酒体中,因此通过内生赋能在蒸馏酒中引入DNJ受到限制。尽管如此,仍可通过添加提取物的方式将DNJ应用于白酒,也可先提升发酵酒中DNJ产量,再与白酒进行勾兑等方式提升白酒中DNJ含量。由表4可知,在糖度方面,桑叶的添加对米酒糖度无明显降低作用,当添加量增至3.0%,其糖度有小幅度提升,推测桑叶中的多糖、可溶性碳水化合物可为发酵体系补充碳源,在一定程度上缓解底物消耗。在乙醇体积分数方面,桑叶添加量为1.5%~4.5%时,乙醇体积分数增加,表明适量桑叶能够有效促进米酒发酵进程;当添加量为7.5%时,乙醇体积分数下降,表明过量桑叶会抑制微生物代谢活动,不利于乙醇积累。综合考虑,确定桑叶适宜添加量为4.5%。
表4 不同桑叶添加量对米酒糖度和乙醇体积分数的影响
Table4 Effects of different mulberry leaf addition on sugar content and ethanol volume fraction of rice wine
桑叶添加量/%糖度/°Brix乙醇体积分数/%08.81.91.58.82.23.0 9.42.24.5 11.22.77.5 9.01.6
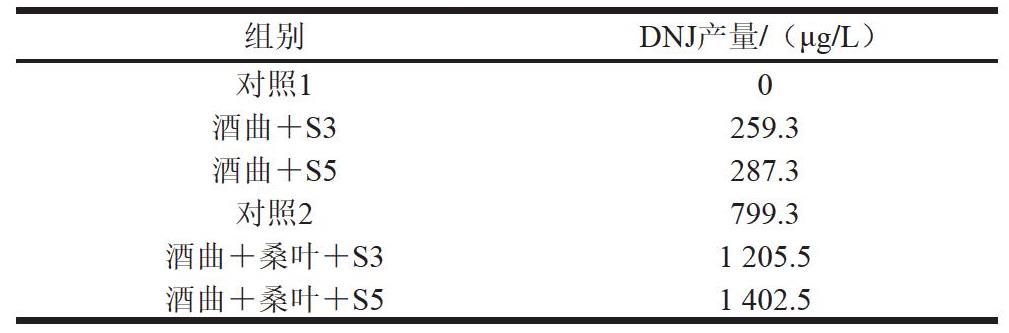
由表5可知,在仅添加酒曲的对照1中,米酒中DNJ未检出,表明在纯大米发酵体系中,酒曲微生物自身不具备合成DNJ的能力。单独添加菌株S3和S5后,米酒中DNJ产量分别为259.3 μg/L和287.3 μg/L,证实两株菌在米酒发酵基质内具备自主合成DNJ的能力,但在缺乏桑叶前体物质的条件下,DNJ积累水平相对有限。单独添加4.5%桑叶(对照2)时,米酒中DNJ产量达799.3 μg/L,显著高于仅添加菌株组,表明桑叶自身所含DNJ是米酒中DNJ的主要来源。在4.5%桑叶基础上分别添加10 mL S3或S5种子液进行协同发酵,米酒中DNJ产量分别为1 205.5 μg/L和1 402.5 μg/L,较对照2分别提升50.8%和75.5%,菌株增效作用明显。推测其机制在于两个方面:一方面,菌株的代谢活动可破坏桑叶植物细胞壁结构,促进桑叶组织中结合态DNJ的充分释放与溶出;另一方面,菌株能够利用桑叶中多糖、生物碱等DNJ合成前体物质,进一步催化转化生成新的DNJ分子。两种机制协同作用,共同推动米酒中DNJ含量的大幅提升。上述结果表明,产DNJ菌株及桑叶协同发酵能够高效富集米酒的DNJ。
表5 桑源内生菌协同桑叶发酵对米酒DNJ产量的影响
Table5 Effects of synergistic fermentation of mulberry leaves by mulberry-derived endophytes on DNJ yield in rice wine
组别DNJ产量/(μg/L)对照10酒曲+S3259.3酒曲+S5287.3对照2799.3酒曲+桑叶+S31 205.5酒曲+桑叶+S51 402.5
3 结 论
本研究从桑叶和桑树茎中分离筛选得到2株DNJ产量较高的菌株(S3和S5),分别鉴定为巴氏葡萄球菌和解淀粉芽孢杆菌,与不添加桑叶的对照组相比,桑叶添加量为4.5%时,可使清香型白酒中乙酸乙酯提升90.7%,正丙醇与杂醇油分别降低44.8%和45.0%,出酒率变化不大,对米酒糖度和乙醇体积分数无明显影响;添加4.5%桑叶后分别添加S3、S5进行强化发酵,清香型白酒酒醅中DNJ产量分别达到105.80、99.19 mg/kg。由于沸点高,DNJ无法经过蒸馏作用进入白酒酒体,因此本研究进一步将S3、S5菌株及4.5%桑叶应用于发酵酒米酒酿造,米酒中DNJ产量分别达到1 205.5 μg/L和1 402.5 μg/L。综上,本研究从桑叶和桑树茎内生菌中筛选高产DNJ的桑源菌株,构建“菌株-桑叶”协同发酵体系,实现了DNJ在酒类中的富集与产量提升,精准契合白酒内生赋能理念;针对DNJ高沸点无法进入蒸馏白酒酒体的问题,提供了“酒醅富集+发酵酒直接承载”的差异化解决方案,为同类高沸点功能物质引入酒类提供了可借鉴的新策略。其应用前景主要体现在两个方面:一是为清香型白酒及发酵米酒的健康化升级提供了切实可行的技术路径,助力健康白酒产业发展;二是丰富了白酒内生赋能的实践维度,为酒类内生赋能高沸点健康成分提供了直接实验论据。
[1] 孙宝国, 李贺贺, 胡萧梅, 等. 健康白酒的发展趋势[J]. 中国食品学报, 2016, 16(8): 1-6. DOI:10.16429/j.1009-7848.2016.08.001.
[2] 王诗睿, 赵冲. 桑叶中1-脱氧野尻霉素降糖机制研究进展[J]. 核农学报, 2023, 37(11): 2252-2257. DOI:10.11869/j.issn.1000-8551.2023.11.2252.
[3] 郭时印, 李林, 周虹, 等. 1-脱氧野尻霉素对α-葡萄糖苷酶的抑制作用机制[J]. 食品科学, 2019, 40(5): 45-50. DOI:10.7506/spkx1002-6630-20180808-081.
[4] Hoogenraad A R, Geldof M, Hiemstra H, et al. Bioequivalence of mulberry fruit extract and 1-deoxynojirimycin for postprandial blood glucose lowering: a randomized trial in humans[J]. The Journal of Nutrition, 2025, 155(7): 2164-2171. DOI:10.1016/j.tjnut.2025.05.037.
[5] Mehmood A, Battino M, Chen Xiumin. 1-Deoxynojirimycin:a comprehensive review of sources, biosynthesis pathways, strategies to enhance its production, and anti-diabetic activities[J]. Food &Function, 2025, 16(12): 4673-4701. DOI:10.1039/d4fo04954c.
[6] 许永东. 桑叶中1-脱氧野尻霉素应用分析[J]. 湖北农业科学, 2018,57(22): 8-10.
[7] Sun Yiwei, Wang Liyan, Ma Keke, et al. Antiviral activity of 1-deoxynojirimycin extracts of mulberry leaves against porcine epidemic diarrhea virus[J]. Animals, 2025, 15(9): 1207. DOI:10.3390/ani15091207.
[8] 程相锦. 1-脱氧野尻霉素高产工程菌的构建及发酵工艺[D]. 武汉:华中农业大学, 2018. DOI:10.27158/d.cnki.ghznu.2018.000187.
[9] 李旺, 韩蕴琦, 丁轲, 等. 发酵对蛋白桑1-脱氧野尻霉素提取量的影响[J]. 中国饲料, 2020, 657(13): 45-49. DOI:10.15906/j.cnki.cn11-2975/s.20201309.
[10] Wu Hao, Guo Ye, Chen Lei, et al. A novel strategy to regulate 1-deoxynojirimycin production based on its biosynthetic pathway in Streptomyces lavendulae[J]. Frontiers in Microbiology, 2019, 10:1968. DOI:10.3389/fmicb.2019.01968.
[11] 谢克英, 娄芳慧, 孙瑞琳, 等. 桑叶中1-脱氧野尻霉素研究进展[J].河南农业, 2021(18): 33-35.
[12] Lim H J, Siziya I N, Seo M J. Verification and applications of 1-deoxynojirimycin biosynthesis: recent advances and future prospects[J]. Process Biochemistry, 2024, 141: 118-131. DOI:10.1016/j.procbio.2024.03.013.
[13] 张锦锦, 孙雨婷, 郭烨, 等. 桑树内生菌的生物活性及应用前景[J].河北农业科学, 2023, 27(1): 85-90; 98.
[14] Lee H, Seo M J, Jang S. 1-Deoxynojirimycin-producing bacteria:production, optimization, biosynthesis, biological activities[J].Biotechnology and Bioprocess Engineering, 2024, 29(6): 981-992. DOI:10.1007/s12257-024-00159-6.
[15] 梅玉立. 桑叶发酵条件优化及混合活性成分对小鼠脂代谢异常的影响[D]. 重庆: 西南大学, 2022. DOI:10.27684/d.cnki.gxndx.2022.002441.
[16] 牛葆鑫. 蚕砂中产1-脱氧野尻霉素菌株PD04的筛选、鉴定及特性研究[D]. 镇江: 江苏科技大学, 2023. DOI:10.27171/d.cnki.ghdcc.2023.000858.
[17] Lu Yu, Cheng Xiangjin, Deng Huanhuan, et al. Improvement of 1-deoxynojirimycin production of Bacillus amyloliquefaciens by gene overexpression and medium optimization[J]. LWT-Food Science and Technology, 2021, 149: 111812. DOI:10.1016/j.lwt.2021.111812.
[18] Li Xujie, Zhang Meng, Lu Yu, et al. Metabolic engineering of Bacillus amyloliquefaciens for efficient production of α-glucosidase inhibitor 1-deoxynojirimycin[J]. Synthetic and Systems Biotechnology, 2023, 8(3): 378-385. DOI:10.1016/j.synbio.2023.05.002.
[19] 尹丹丹. 基于枯草杆菌代谢途径研究川芎中川芎嗪的来源及川芎活血化瘀作用的药效学研究[D]. 合肥: 安徽中医药大学, 2019.DOI:10.26922/d.cnki.ganzc.2019.000172.
[20] 江威, 王路瑶, 张宗杰, 等. 清香型小曲白酒酒醅中乳酸菌的筛选鉴定及其发酵特性研究[J]. 中国酿造, 2022, 41(8): 57-63.DOI:10.11882/j.issn.0254-5071.2022.08.010.
[21] Isono N, Hayakawa H, Usami A, et al. A comparative study of ethanol production by Issatchenkia orientalis strains under stress conditions[J].Journal of Bioscience and Bioengineering, 2012, 113(1): 76-78.DOI:10.1016/j.jbiosc.2011.09.004.
[22] Chun J, Lee J H, Jung Y, et al. EzTaxon: a web-based tool for the identification of prokaryotes based on 16S ribosomal RNA gene sequences[J]. International Journal of Systematic and Evolutionary Microbiology, 2007, 57(10): 2259-2261. DOI:10.1099/ijs.0.64915-0.
[23] 杨强, 唐洁, 杨生智, 等. 清香型小曲白酒产酯酵母的筛选及应用[J].酿酒科技, 2016(1): 78-80. DOI:10.13746/j.njkj.2015385.
[24] 许银, 杨强, 张龙, 等. 高产乙酸乙酯酵母菌的筛选及其在香型小曲白酒生产中的应用[J]. 中国酿造, 2021, 40(8): 76-80. DOI:10.11882/j.issn.0254-5071.2021.08.014.
[25] 孙细珍, 杜佳炜, 张帆, 等. 应用顶空固相微萃取-气相色谱质谱技术解析天龙泉米酒风味成分[J]. 酿酒, 2021, 48(5): 55-60.
[26] GB/T 10781.2—2022 白酒质量要求 第2部分: 清香型白酒[S].
[27] GB/T 40642—2021 桑叶提取物中1-脱氧野尻霉素的检测 高效液相色谱法[S].
[28] 吴昊. 微生物源1-脱氧野尻霉素生物合成调控及其抑制α-葡萄糖苷酶机理研究[D]. 南宁: 广西大学, 2019.