酶在食品工业中应用广泛,可实现底物转化、产物合成及风味调控等功能[1-3]。脂肪酶(EC 3.1.1.3)属于水解酶,可催化三酰甘油酯发生水解反应,其核心催化功能之一是通过断裂酯键将甘油三酯分解为丙三醇(甘油)和游离脂肪酸[4-5]。脂肪酶具有来源广泛、生产周期短、催化活性优异等优势,现已成为工业化应用最主流的酶制剂之一[6]。按照来源可将脂肪酶分为动物源、植物源和微生物源3类[7]。与动植物源脂肪酶相比,细菌和真菌源脂肪酶的主要优点是具有较高的耐热性和有机溶剂耐受性[7-8],且大多数微生物源脂肪酶属于胞外分泌型酶蛋白,便于分离提取,且易于规模化生产[9]。
芽孢杆菌属、伯克霍尔德氏菌属、假单胞菌属、葡萄球菌属、曲霉属、毛霉菌属、青霉属、根霉属、毕赤酵母和红酵母等微生物[7,10-11]是工业用脂肪酶的主要来源。棘孢曲霉是曲霉属真菌,具有球形或椭圆形的顶囊,分生孢子为淡褐色球状,表面有刺突,在自然界中分布广泛,常见于粮食、植物和土壤中[2]。棘孢曲霉(Aspergillus aculeatus)作为一种重要的工业微生物,其产生的脂肪酶具有独特的催化特性和良好的应用潜力。然而,现有针对曲霉属产脂肪酶的研究多集中于黑曲霉、烟曲霉等菌株,棘孢曲霉产脂肪酶相关报道较为稀缺[12-13]。目前关于棘孢曲霉脂肪酶的系统性研究十分有限,相关文献仅以Triyaswati等[14]的报道为主。
本研究以已获得的棘孢曲霉为原料,采用传统平板筛选法获得高产脂肪酶棘孢曲霉优势菌株;对其产脂肪酶发酵条件进行优化,并系统表征其所产脂肪酶的酶学性质,以期深入了解诱导物对微生物生长代谢等生理特性的影响,揭示棘孢曲霉脂肪酶的基本酶学特征,为进一步探讨该菌种脂肪酶的发酵生产与应用提供参考。
1 材料与方法
1.1 材料与试剂
棘孢曲霉BNCC 19623冻干粉 北纳生物科技有限公司;KH2PO4、K2HPO4、琼脂、橄榄油、溴甲酚紫国药集团化学试剂有限公司;DNA Green核酸染料 北京百泰克生物技术有限公司;氢氧化钠 永华化学科技有限公司;丙烯酰胺、十二烷基硫酸钠(sodium dodecylsulfate,SDS)、Tris 生工生物工程(上海)股份有限公司。其他试剂均为分析纯或生化试剂。
油脂同化平板[15]:K2HPO4 1 g/L、MgSO4·7H2O 0.5 g/L、KCl 0.5 g/L、FeSO4 0.01 g/L、(NH4)2SO4 1.5 g/L、橄榄油乳化液150 mL/L、琼脂20 g/L、溴甲酚紫3 mL/L;罗丹明B平板[16]:FeSO4·7H2O 0.03 g/L、MgSO4·7H2O 1.5 g/L、KCl 1 g/L、KH2PO4 2 g/L、琼脂40 g/L、蛋白胨15 g/L、罗丹明B 0.6 g/L、橄榄油乳化液400 mL/L;液态发酵培养基:葡萄糖5 g/L、蛋白胨50 g/L、酵母膏20 g/L、无水CaCl2 3 g/L、无水MgSO4 0.5 g/L、橄榄油4.0 mL/L;种子培养基:马铃薯葡萄糖液体培养基26 g/L;PDA培养基:马铃薯葡萄糖液体培养基26 g/L、琼脂20 g/L。121 ℃灭菌20 min备用。
1.2 仪器与设备
SW-CJ-1B单人单面净化工作台 苏州净化设备有限公司;TC-96聚合酶链式反应(polymerase chainreaction,PCR)仪 杭州博日科技有限公司;5804R高速离心机 德国Eppendorf公司;Mini-6K微型离心机 贺默(上海)仪器科技有限公司;T6紫外-可见分光光度计 北京普析通用仪器制造有限责任公司;041BR172997电泳仪 伯乐(上海)生命研究发展有限公司;THZ-D恒温振荡器 太仓市豪诚实验仪器制造有限公司;FE20 pH计 梅特勒-托利多仪器(上海)有限公司;DK-S26电热恒温水浴锅 上海森信实验仪器有限公司。
1.3 方法
1.3.1 原料预处理
称取棘孢曲霉冻干粉样品5 mg置于250 mL玻璃瓶中,加入100 mL无菌水及几颗无菌玻璃珠,振荡5 min后制作菌液。将菌液稀释不同倍数后用于后续接种。
1.3.2 高产脂肪酶菌株筛选
将各稀释梯度的菌液分别涂布于油脂同化平板,28 ℃培养箱中培养72 h,挑取使平板产生水解圈的菌落接种于种子培养基,30 ℃、180 r/min振荡培养12 h。将培养后的种子悬液进行不同倍数稀释后涂布于罗丹明B平板上再次筛选。依据平板菌落经荧光灯照射后是否呈现橘色筛选菌株,并制备菌悬液。
1.3.3 高产脂肪酶菌株鉴定
参考周康熙等[17]的方法提取菌株基因组DNA并进行PCR扩增,将扩增样品送至测序中心测序,并将测序结果导入NCBI数据库进行同源性比对分析。
1.3.4 棘孢曲霉产脂肪酶发酵条件优化
将菌液接种于种子培养基中,30 ℃、180 r/min振荡培养12 h。以1%接种量将种子液接种于液态发酵培养基中,30 ℃、180 r/min振荡培养48 h,橄榄油添加量5%(V/V),初始pH值为自然pH值。在上述初始发酵条件基础上,逐一考察发酵周期(16、24、32、40、48、56、64 h)、发酵温度(25、28、30、32、35、40 ℃)、橄榄油添加量(2.5%、5.0%、10.0%、15.0%、20.0%,V/V)、接种量(1%、2%、3%、4%、5%、6%、7%、8%,V/V)、初始pH值(5.5、6.0、6.5、7.0、7.5、8.0)对脂肪酶活性的影响。每组设置3个平行。在测定发酵液脂肪酶活性时,将发酵液稀释5倍后,于4 ℃、 10 000 r/min离心10 min,取上清液(粗酶液)测定。
1.3.5 脂肪酶活性测定
采用橄榄油乳化法构建反应体系,通过氢氧化钠滴定法测定脂肪酶活性[18],进行3次独立平行测定。在烧杯中称取10 g固体聚乙烯醇(polyvinyl alcohol,PVA),加入500 mL水,置于电炉上加热至沸腾溶解,期间不断搅拌直至全部溶解,水浴冷却,加水定容至500 mL,经3层纱布过滤,备用。分别量取配制好的PVA溶液75 mL和橄榄油25 mL,混合后倒入榨汁机中乳化15 min,分3次乳化处理,为保证乳化液稳定性,每次处理后冷却5 min再进行下一次,得到体积分数25%的橄榄油乳化液,备用。
取2个干净的150 mL三角瓶,分别标记为1号(实验组)和2号(空白对照组)。先向2个瓶子中各加入5 mL橄榄油乳化液和4 mL 50 mmol/L磷酸盐缓冲液(称取一定量的KH2PO4和K2HPO4,按照物质的量1∶1配制溶液,采用稀磷酸溶液和稀氢氧化钾溶液,配合pH计调节溶液pH值至7.5),摇匀后置于30 ℃水浴锅中预热处理5 min,取出后在1号瓶中加入1 mL粗酶液,2号瓶中加入同等体积(1 mL)的pH 7.5磷酸盐缓冲液。摇匀后于30 ℃水浴条件下反应5 min,反应结束后立即取出,加入95%乙醇15 mL以终止反应。以酚酞为指示剂,滴定至终点时,30 s内溶液保持微红不褪色,记录各组氢氧化钠标准溶液消耗体积。由于脂肪酸与氢氧化钠按物质的量1∶1发生中和反应,实验组与空白对照组NaOH滴定量差值即为酶促反应所生成的游离脂肪酸含量。定义30 ℃、pH 7.5 条件下,1 min水解橄榄油乳化底物生成1 μmoL游离脂肪酸所需酶量为1个酶活性单位(U)。脂肪酶活性按下式计算:
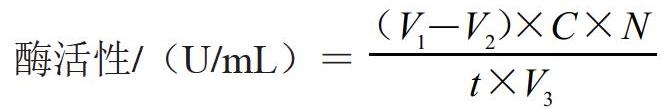
式中:V1为样品消耗NaOH的体积/mL;V2为空白对照消耗NaOH的体积/mL;C为NaOH标准溶液浓度(50 mmol/L);t为反应时间/min;V3为反应用酶液 体积/mL;N为样品稀释倍数。
1.3.6 脂肪酶分子质量测定
硫酸铵盐析曲线绘制:设置(NH4)2SO4饱和度梯度为0%、20%、30%、40%、50%、55%、60%、65%、70%、75%、80%、90%。取200 mL最优发酵条件下制备的粗酶液置于烧杯,依据分步盐析法计算各梯度所需(NH4)2SO4添加量。添加硫酸铵后,磁力搅拌0.5 h,随后于4 ℃、8 000 r/min离心,弃去上清液。沉淀采用pH 7.5磷酸盐缓冲液复溶,采用超微量分光光度计测定蛋白质量浓度,同时测定脂肪酶活性,以最高酶活性为100%绘制硫酸铵盐析曲线,确定最佳盐析饱和度。另取200 mL粗酶液,按最佳盐析饱和度添加(NH4)2SO4,采用相同方法得到沉淀蛋白复溶溶液,置于-80 ℃冰箱保存,用于后续蛋白分子质量测定。
蛋白分子质量测定:采用十二烷基硫酸钠-聚丙烯酰胺凝胶电泳(sodium dodecyl sulfate-polyacrylamide gel electrophoresis,SDS-PAGE)法[19]。取20 μL沉淀蛋白复溶溶液和5 μL上样缓冲液于0.2 mL离心管中混匀,沸水持续加热10 min使脂肪酶变性,每孔上样15 μL样品,电泳结束后取出胶片,保护液处理30 min,考马斯亮蓝G-250染色30 min,脱色液洗脱至条带清晰后观察蛋白条带。
1.3.7 酶学性质分析
最适酶促反应温度测定:取一定量粗酶液,稀释5倍后进行酶促反应,反应温度分别设置为25、30、35、40、45、50、55 ℃,每组设置3个平行。以30 ℃条件下酶活性为100%,计算脂肪酶相对活性。
热稳定性测定:取一定量粗酶液,稀释5倍后分装到10 mL离心管中,设置处理温度为30、40、60、70 ℃。每个温度处理1、2、3、4、5、6 h,每组设置3个平行。以各温度梯度处理1 h时的酶活性为100%,计算脂肪酶相对活性。
最适酶促反应pH值测定:取一定量粗酶液,稀释5倍后进行酶促反应,将反应体系pH值分别设定为5.5、6.0、6.5、7.0、7.5、8.0、8.5、9.0、9.5、10.0,每组设置3个平行,测定酶活性(体系pH值将改变)。以pH 9.0条件下测定的酶活性为100%,计算脂肪酶相对活性。
金属离子对脂肪酶活性的影响:取一定量粗酶液,稀释5倍后进行酶促反应,在反应体系中分别加入1 mmol/L和10 mmol/L Mg2+、Ca2+、Zn2+、Na+、K+,每组设置3个平行,测定酶活性。以不添加金属离子的酶活性为100%,计算脂肪酶相对活性,考察金属离子对棘孢曲霉脂肪酶催化活性的影响。
1.4 数据处理
所有实验均设置3次独立生物学重复,实验数据以 ±s表示,采用Excel 2021软件完成数据整理,使用Origin 2021软件绘制图形,采用SPSS 26.0软件进行统计学分析,使用MEGA 11软件构建系统发育树。
2 结果与分析
2.1 产脂肪酶优势菌株的筛选
以橄榄油为唯一碳源,观察棘孢曲霉菌株在罗丹明B平板上的生长状态。由图1可知,经过10 d培养后,不同棘孢曲霉菌落在罗丹明B平板上的水解圈面积大小不一。图1A中的菌落产生的水解圈面积较小,且无法进一步扩展;图1B中的菌落产生的水解圈面积明显较大,且经过10 d的生长,部分菌落的生长面积进一步扩展。因此,将图1B中的菌落作为能够水解甘油三酯的优势菌落,命名为F233,并用于后续研究。
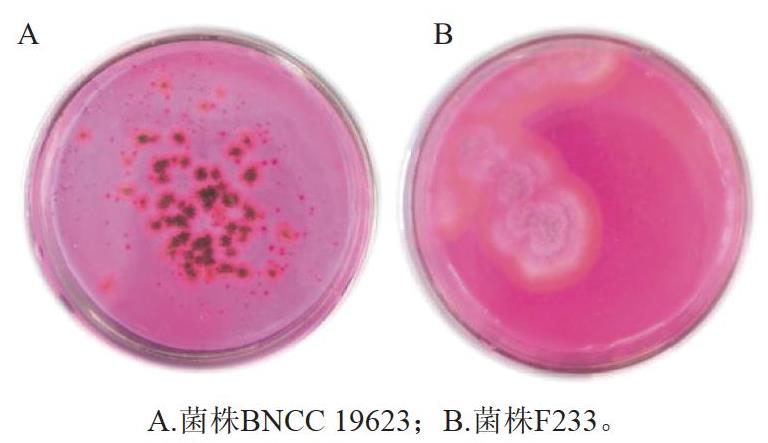
图1 不同棘孢曲霉菌株在罗丹明B平板上的生长状态
Fig.1 Growth status of different A. aculeatus strains on rhodamine B plates
2.2 产脂肪酶优势菌株的鉴定
以菌株F233的基因组DNA为模板,采用通用引物ITS1/ITS4对ITS序列进行PCR扩增,经琼脂糖凝胶电泳所得条带见图2,经估算该扩增片段大小约为680 bp。
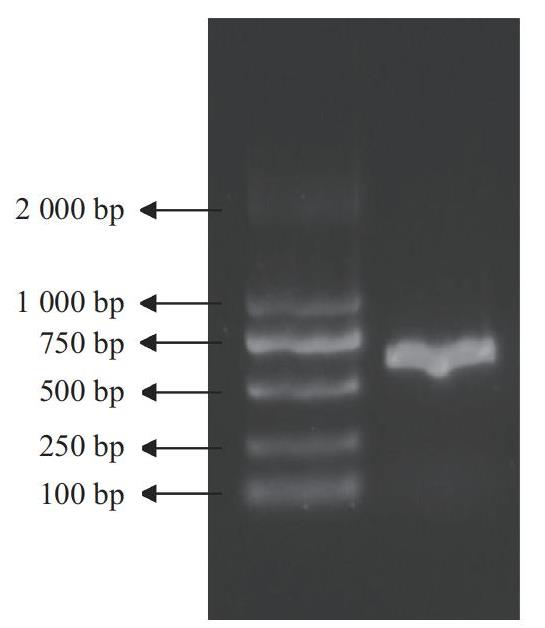
图2 菌株F233 ITS扩增产物电泳图
Fig.2 Electrophoretogram of ITS amplification products of strain F233
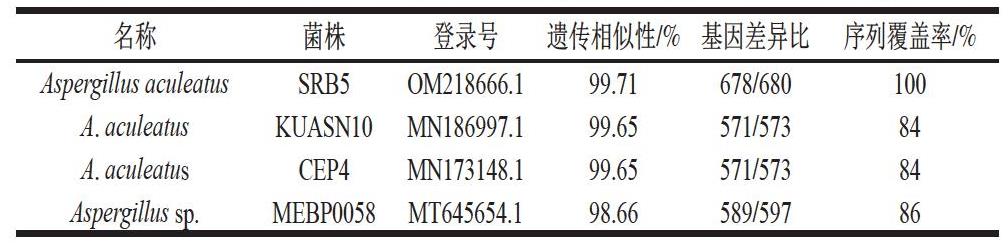
将经琼脂糖凝胶电泳鉴定合格的PCR扩增产物送至浙江有康生物科技有限公司完成测序,将测序结果导入NCBI中进行BLAST同源比对,筛选匹配度较高的参考序列,部分比对结果如表1所示。基于比对序列构建系统发育树,由图3可知,菌株F233与棘孢曲霉(Aspergillus aculeatus)SRB5聚类于同一进化分支。这表明该菌与棘孢曲霉(A. aculeatus)亲缘关系较近,据此将菌株F233鉴定为A. aculeatus。
表1 ITS序列BLAST比对的部分结果
Table1 Partial results of BLAST alignment based on ITS sequences
名称菌株登录号遗传相似性/%基因差异比序列覆盖率/%Aspergillus aculeatusSRB5OM218666.199.71678/680100A. aculeatusKUASN10MN186997.199.65571/57384A. aculeatusCEP4MN173148.199.65571/57384Aspergillus sp.MEBP0058MT645654.198.66589/59786
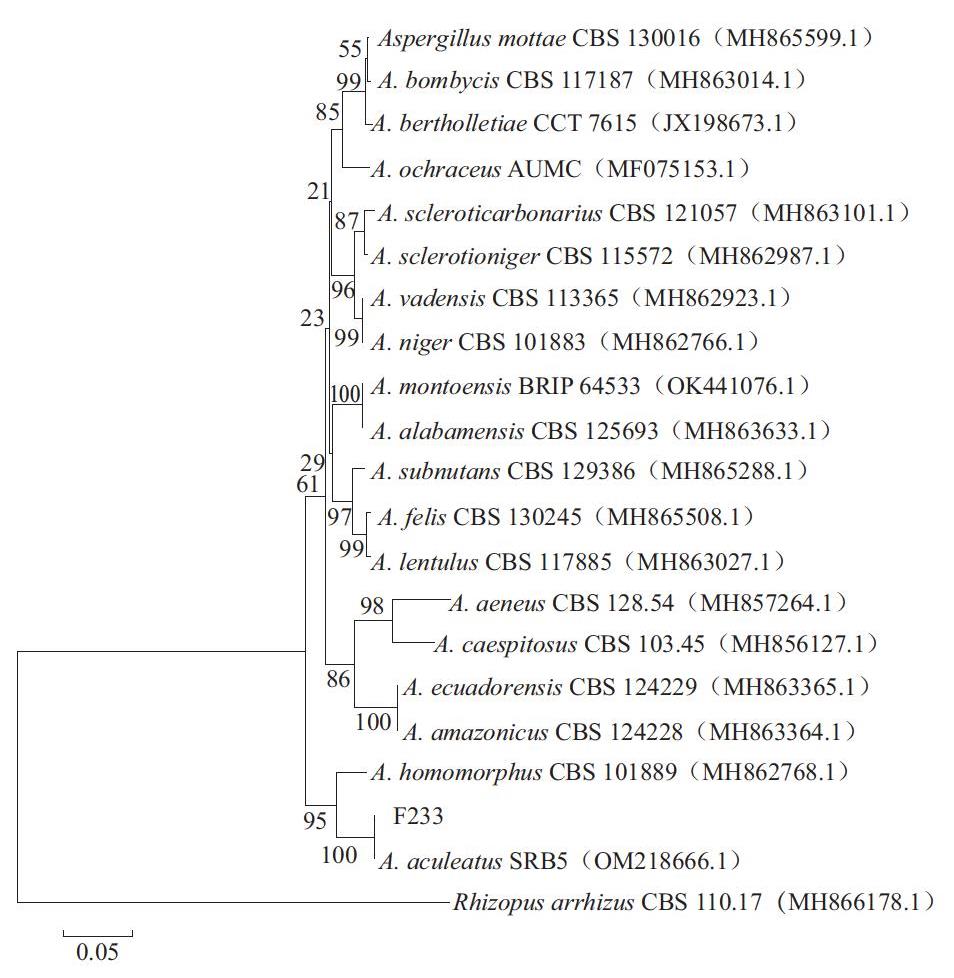
图3 基于ITS比对序列构建的F233菌株系统发育树
Fig.3 Phylogenetic tree of strain F233 constructed from aligned ITS sequences
2.3 棘孢曲霉产脂肪酶发酵条件
由图4可知,发酵周期为40 h时,脂肪酶活性达到最高值,为177.0 U/mL。此时菌体处于稳定期,产酶效率最高。据Triyaswati等[14]报道,来源于印度尼西亚的棘孢曲霉Ms.11在最佳产酶条件下发酵4 d获取的发酵液脂肪酶活性仅5.22 U/mL。与之相较,本研究获得的棘孢曲霉F233具有较大的脂肪酶活性优势。
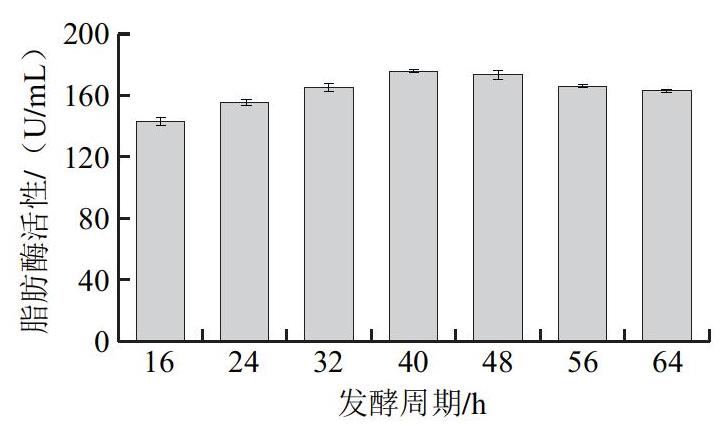
图4 发酵周期对发酵液脂肪酶活性的影响
Fig.4 Effect of fermentation cycle on lipase activity in fermentation broth
由图5A可知,发酵温度由25 ℃升至28 ℃时,发酵液脂肪酶活性达到最高值,为120.0 U/mL。当发酵温度进一步升高时,酶活性降低。该结果与姚璐晔等[20]在贝莱斯芽孢杆菌产脂肪酶发酵优化实验中报道的温度对产酶的影响结果相似。这可能是因为对热敏感的酶在发酵过程中发生部分失活,从而导致表观酶活性损失。此外,过高的发酵温度可能会抑制菌体的生长代谢。
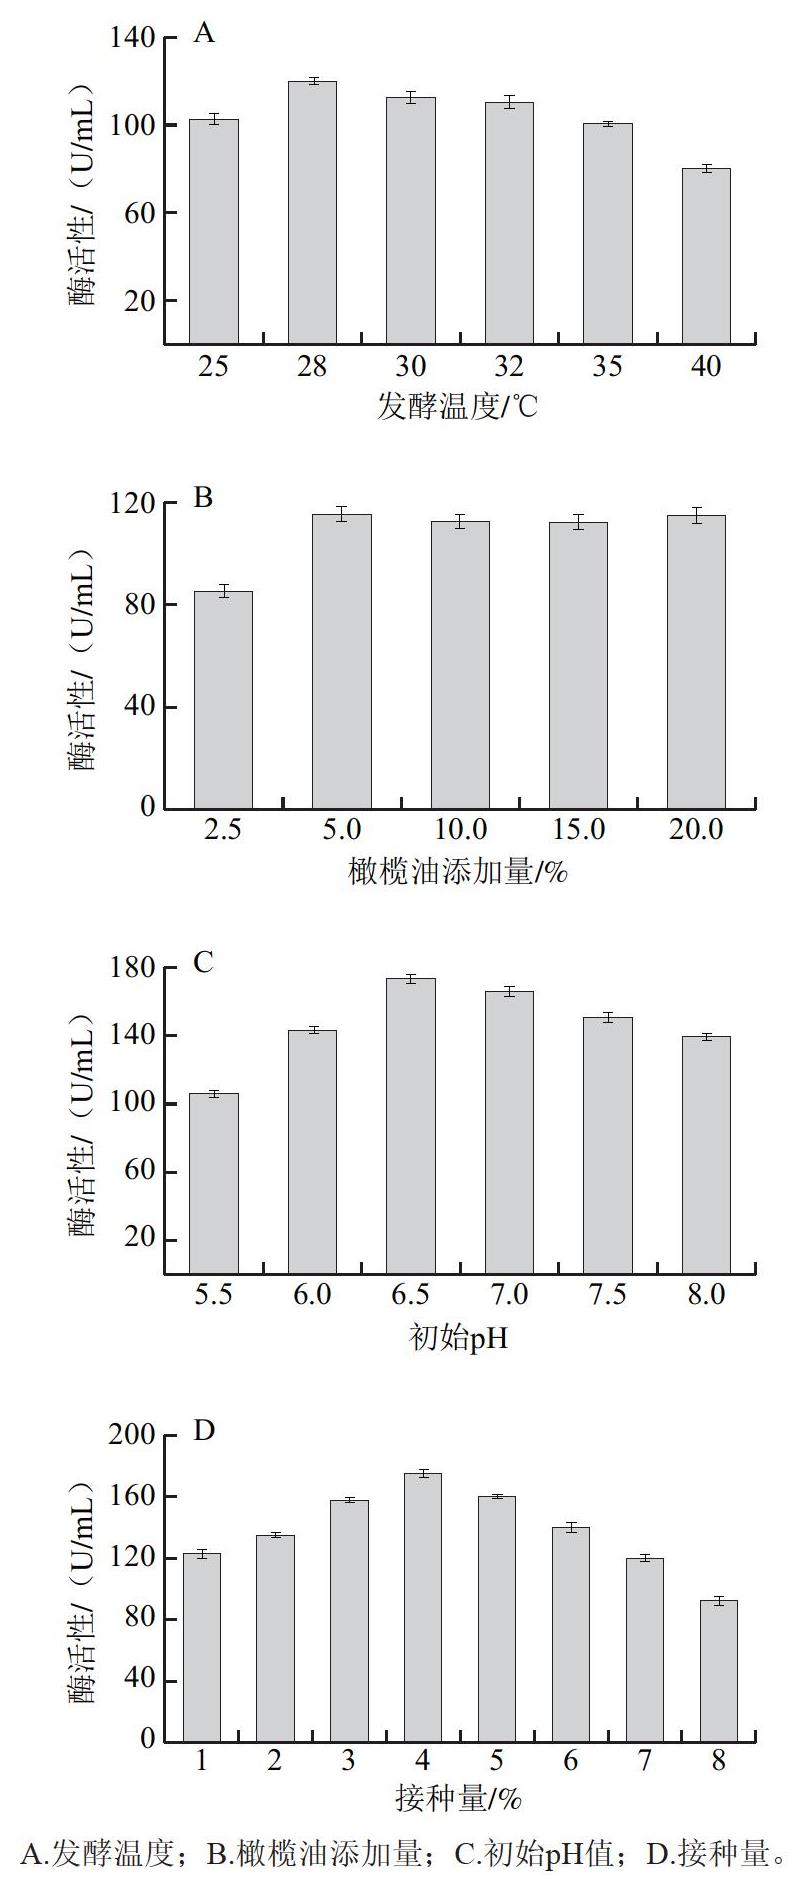
图5 发酵产酶过程中不同因素对脂肪酶活性的影响
Fig.5 Effects of various factors on lipase activity during enzyme‑producing fermentation
由图5B可知,橄榄油添加量由2.5%升至5.0%时,发酵液脂肪酶活性明显上升,当橄榄油添加量继续升至20%过程中,发酵液脂肪酶活性基本趋于稳定,表明橄榄油可作为碳源,既能促进棘孢曲霉生长,又能诱导其合成脂肪酶,这与文献[15]报道结果一致。
由图5C可知,当初始pH值为6.5时,发酵液脂肪酶活性最高,达172.50 U/mL。以初始pH 6.5为基准,pH值过高或过低均导致发酵液脂肪酶活性呈下降趋势。例如,初始pH 8.0时,发酵液脂肪酶活性降至140 U/mL左右。因此,中性偏酸条件更利于棘孢曲霉F233产生脂肪酶。
由图5D可知,接种量对发酵液酶活性的影响较大,酶活性整体呈先上升后下降的趋势。这可能是因为过高接种量诱发营养竞争而导致酶活性下降。因此,最佳接种量为4%。
综上,棘孢曲霉F233产脂肪酶最适发酵条件为:发酵周期40 h、发酵温度28 ℃、橄榄油添加量5.0%、接种量4%、初始pH 6.5。在该优化条件下进行发酵产酶验证实验,将所得酶液稀释5倍后测得总酶活性为162.5 U/mL,较初始发酵条件下酶活性(111.0 U/mL)提升46.4%,表明发酵工艺优化能大幅提高该棘孢曲霉菌的脂肪酶生成能力。
2.4 脂肪酶分子质量与酶学性质
2.4.1 硫酸铵盐析曲线
由图6可知,(NH4)2SO4饱和度在0%~50%区间时,体系(NH4)2SO4浓度较低,无蛋白沉淀析出,因此无法检测沉淀脂肪酶活性;当(NH4)2SO4饱和度升至50%时,开始产生蛋白沉淀。随着(NH4)2SO4饱和度的升高,沉淀脂肪酶相对活性随之增加。在(NH4)2SO4饱和度70%时,沉淀酶相对活性最高,继续增加(NH4)2SO4饱和度,沉淀脂肪酶相对活性出现下降。因此,棘孢曲霉F233所产脂肪酶的最优盐析(NH4)2SO4饱和度为70%,后续采用该饱和度对粗酶液进行初步纯化富集,以去除大部分杂蛋白,获得高活性粗脂肪酶沉淀,用于SDS-PAGE分子质量测定。
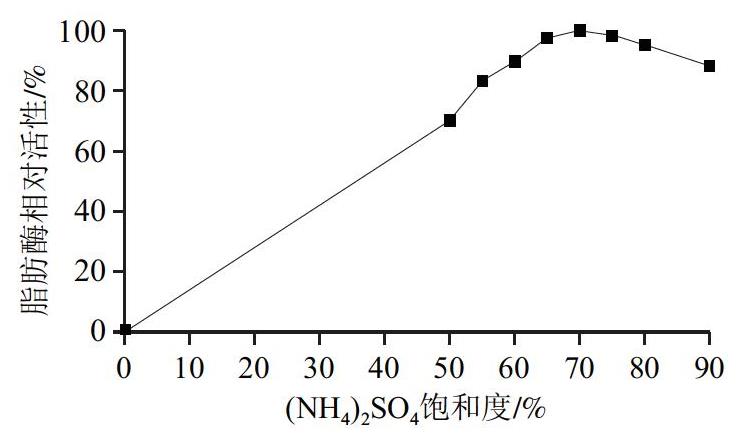
图6 棘孢曲霉F233发酵所产脂肪酶的硫酸铵盐析曲线
Fig.6 Ammonium sulfate salting-out curve of lipase produced by A. aculeatus F233
2.4.2 脂肪酶分子质量
如图7所示,以标准蛋白Marker分子质量分布为对照,估算脂肪酶的蛋白分子质量为32.5 kDa,与已报道多数微生物所产脂肪酶的分子质量相近,如黑曲霉脂肪酶(32 kDa)[21]、Bacillus subtilis kubt4(30 kDa)[22]、嗜碱性Gp-1菌(31 kDa)[23]等。然而,该脂肪酶分子质量与已报道烟曲霉所产脂肪酶分子质量(42 kDa)[13]存在差异。这可能与构成脂肪酶的氨基酸种类和数目差异有关。
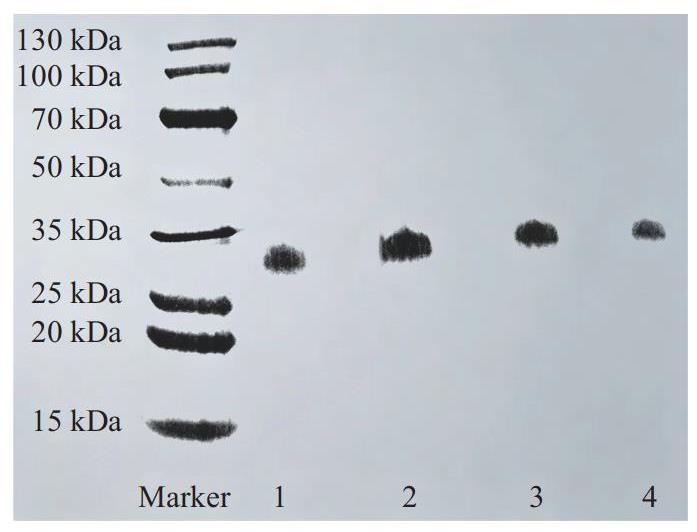
图7 70%硫酸铵沉淀蛋白的电泳图
Fig.7 Electrophoretogram of proteins precipitated by 70% ammonium sulfate
2.4.3 脂肪酶酶学性质
由图8A可知,温度对棘孢曲霉的酶促反应影响显著。温度由25 ℃升至30 ℃时,脂肪酶相对活性迅速增加并达到最高点,随着温度的进一步升高,脂肪酶相对活性呈明显下降趋势。高温易破坏热敏性酶的分子结构或空间构象,从而导致酶蛋白变性活性。因此,棘孢曲霉F233产脂肪酶的最适反应温度为30 ℃,与部分曲霉产脂肪酶的最适温度相似,如棘孢曲霉Ms.11(30 ℃)[14]、青霉XMZ-9(30 ℃)[15]等。然而,与烟曲霉B[13]、黑曲霉[21]的最适催化温度(40 ℃)相比,其最适温度相对较低。
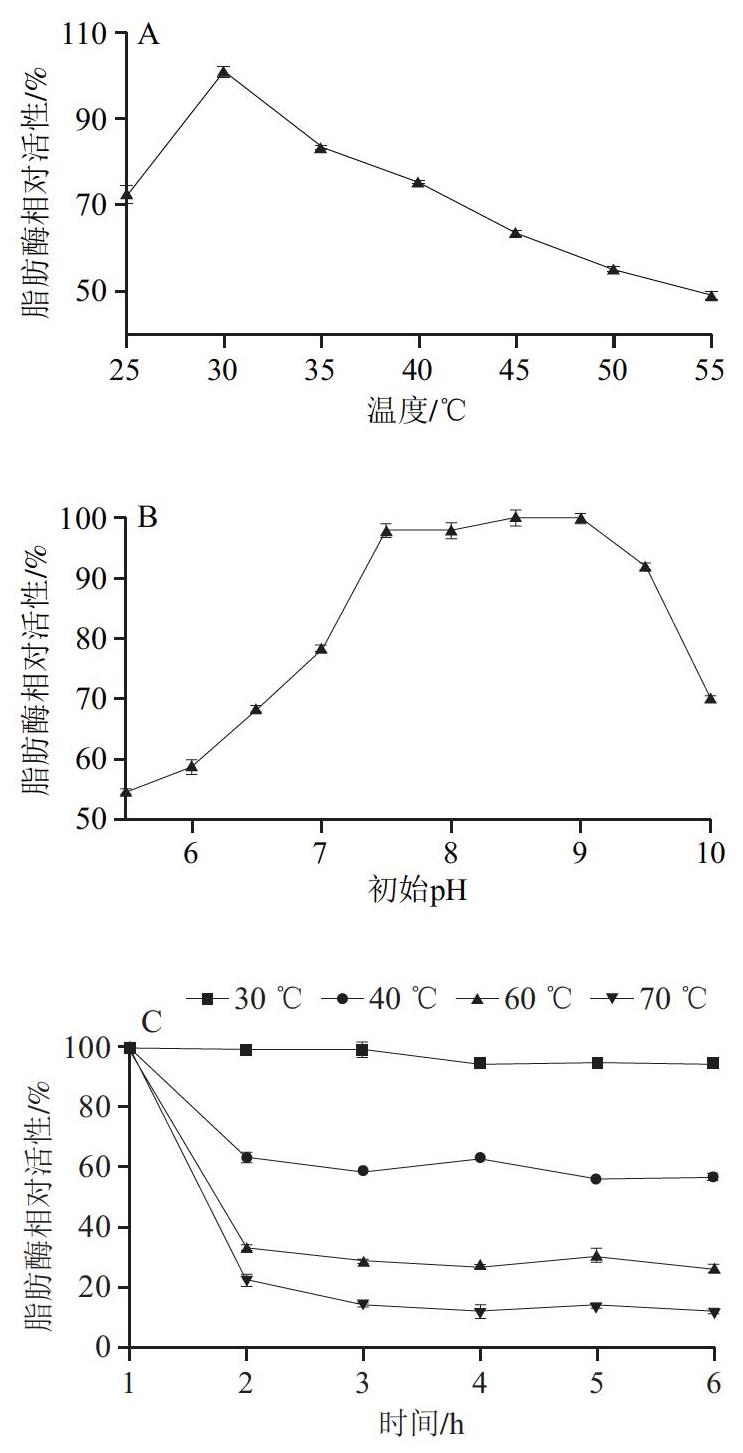
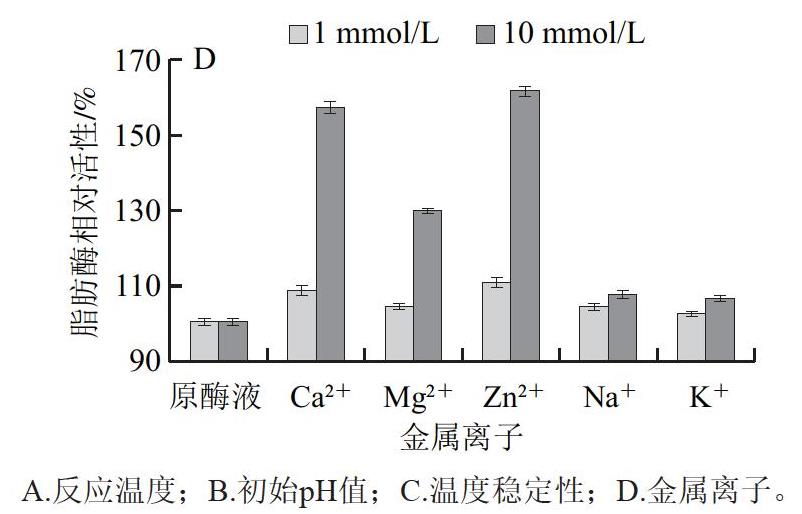
图8 不同因素对脂肪酶酶学性质的影响
Fig.8 Effects of different factors on the enzymatic properties of the lipase
由图8B可知,当pH值处于5.5~7.5时,随着pH值的升高,脂肪酶相对活性呈上升趋势,当pH值处于8.5~9.0时,脂肪酶相对活性基本保持稳定且维持在较高水平。当pH值进一步升高时,脂肪酶相对活性呈现剧烈下降趋势。结果表明,该脂肪酶为碱性脂肪酶,其最适pH值与已报道的烟曲霉B产脂肪酶[13]、棘孢曲霉Ms.11产脂肪酶[14]、黑曲霉产脂肪酶[21]的最适pH 7.0差异较大。
由图8C可知,脂肪酶经30 ℃水浴处理3 h后,其相对活性始终维持在较高水平;经40、60、70 ℃水浴处理3 h后,其相对活性分别降至70%、50%和35%。由此推测,该脂肪酶属于中温脂肪酶。据报道,棘孢曲霉Ms.11产脂肪酶在30 ℃保温1 h,其酶活性损失15%[15]。尽管棘孢曲霉F233产脂肪酶比已报道同家族脂肪酶的热稳定性高,但仍不够理想,需通过理性设计等方法进一步提升。
金属离子在调控脂肪酶催化功能方面具有重要作用。由图8D可知,金属离子对棘孢曲霉F233产脂肪酶活性具有普遍促进作用。相较于Na+、K+,二价金属离子(Ca2+、Mg2+、Zn2+)对该脂肪酶的促进作用更显著。此外,相同金属离子在10 mmol/L添加浓度下对脂肪酶活性的促进作用强于1 mmol/L,其中10 mmol/L Ca2+、Mg2+、Zn2+对脂肪酶活性促进作用较强,如10 mmol/L Ca2+能够将脂肪酶活性提升60%。本研究结果与现有金属离子调控脂肪酶活性的相关报道结论相一致。刘慧平等[24]研究发现,Ca2+和Mg2+对洋葱伯克霍尔德菌HE877产脂肪酶活性也具有促进作用。针对脂肪酶盖子结构的系统性分析表明,盖子区域的带电荷氨基酸残基(如赖氨酸的ε-氨基、精氨酸的胍基或天冬氨酸残基等)能够与金属离子发生静电相互作用,改变盖子的局部结构及动态构象[25]。据此推测,该脂肪酶活性的提升可能归因于金属离子对脂肪酶盖子结构构象变化及开合速率的调控[12]。
研究表明,微生物来源的嗜冷脂肪酶或含有两个盖子结构的脂肪酶分子通常具有金属离子配位点[25]。然而,曲霉产脂肪酶结构相对简单,通常仅含一个典型的盖子结构[16,25]。已解析的黑曲霉产脂肪酶晶体结构(PDB:6IDY)显示,其催化中心区域无可结合金属离子的特征氨基酸残基,难以与金属离子发生配位作用。同时,棘孢曲霉产脂肪酶与黑曲霉产脂肪酶均属于曲霉产脂肪酶,具有较高的同源性。由此推测,棘孢曲霉F233产脂肪酶不属于金属酶,其酶活性可能不受乙二胺四乙酸螯合作用干扰。此外,Ca2+、Mg2+等金属离子对酶蛋白的热稳定性和pH值稳定性均具有一定的提升作用[26-27]。例如,Ca2+能够有效提升Chromohalobacter japonicus BK-AB18产脂肪酶的活性和热稳定性[26]。5 mmol/L Ca2+能够使该脂肪酶在80 ℃条件下的残余活性提升5倍。此外,分子动力学模拟结果表明,Ca2+等金属离子能够通过有效消除盖子结构区域的静电排斥效用,从而提升酶蛋白的整体构象稳定性[27]。由此推测,Ca2+可能也具有改善棘孢曲霉产脂肪酶稳定性的作用。
3 结 论
本研究利用橄榄油平板筛选法从棘孢曲霉冻干粉中筛选得到高产脂肪酶的优势菌株棘孢曲霉F233,经菌株形态鉴定、18S rDNA序列比对分析,鉴定为棘孢曲霉属。该曲霉产酶的最佳发酵条件为:发酵周期40 h、发酵温度28 ℃、橄榄油添加量5%、接种量4%、初始 pH 6.5。该脂肪酶属于碱性脂肪酶,其最适酶促反应温度为30 ℃,最适pH值为8.5~9.0,Ca2+、Mg2+、Zn2+对该脂肪酶催化活性有明显促进作用,其在碱性洗涤剂制备、含金属离子催化体系等领域具备良好应用潜力。
[1] 张玉千, 周学, 夏文静, 等. 棘孢曲霉液体发酵产β-葡萄糖苷酶培养基的优化[J]. 江苏农业科学, 2021, 49(11): 208-212. DOI:10.15889/j.issn.1002-1302.2021.11.036.
[2] 王迪, 倪辉, 李利君, 等. 一株棘孢曲霉的鉴定及其柚苷酶合成规律[J]. 微生物学报, 2013, 53(7): 691-701. DOI:10.13343/j.cnki.wsxb.2013.07.005.
[3] 李志国, 任敏, 闫清泉, 等. 不同来源脂肪酶对乳制品风味的影响[J].食品科技, 2022, 47(7): 32-37. DOI:10.13684/j.cnki.spkj.2022.07.026.
[4] 郑炜彬, 胡秋怡, 杨李, 等. 异常球菌RM菌株脂肪酶基因LIP的克隆、表达及酶学性质[J]. 福建农林大学学报(自然科学版), 2025,54(4): 533-543. DOI:10.13323/j.cnki.j.fafu(nat.sci.).202404003.
[5] Sachin V, Kiran N R, Ningaraju T M, et al. Biodiesel production from non-edible oils using immobilized recombinant lipase from Pseudomonas fluorescens isolated in the Western Ghats, India[J].Biofuels, 2025, 16(5): 489-498. DOI:10.1080/17597269.2024.2439726.
[6] 徐远志, 胡珊, 代思泽, 等. 高活性脂肪酶的发掘、评价及在甘油二脂合成中应用[J]. 生物技术通报, 2025, 41(11): 177-189.DOI:10.13560/j.cnki.biotech.bull.1985.2025-0392.
[7] 张尧, 王佳欣, 温婵婵, 等. 微生物源蛋白酶和脂肪酶分类、特性及在食品工业中的应用进展[J]. 食品工业科技, 2025, 46(3): 415-424.DOI:10.13386/j.issn1002-0306.2024030017.
[8] Vivek K, Sandhia G S, Subramaniyan S. Extremophilic lipases for industrial applications: a general review[J]. Biotechnology Advances, 2022, 60: 108002. DOI:10.1016/j.biotechadv.2022.108002.
[9] Yao Wentao, Liu Kaiquan, Liu Hongling, et al. A valuable product of microbial cell factories: microbial lipase[J]. Frontiers in Microbiology, 2021, 12: 743377. DOI:10.3389/fmicb.2021.743377.
[10] Salgado C A, Dos Santos C I A, Vanetti M C D. Microbial lipases:propitious biocatalysts for the food industry[J]. Food Bioscience, 2022,45: 101509. DOI:10.1016/j.fbio.2021.101509.
[11] Ismail A R, Kashtoh H, Baek K H. Temperature-resistant and solvent-tolerant lipases as industrial biocatalysts: biotechnological approaches and applications[J]. International Journal of Biological Macromolecules, 2021, 187: 127-142. DOI:10.1016/j.ijbiomac.2021.07.101.
[12] Cong Shanzi, Tian Kangming, Zhang Xin, et al. Synthesis of flavor esters by a novel lipase from Aspergillus niger in a soybean-solvent system[J]. 3 Biotech, 2019, 9(6): 244. DOI:10.1007/s13205-019-1778-5.
[13] 唐薇, 黄伟谦, 杨博, 等. 烟曲霉脂肪酶B在毕赤酵母中的表达及酶学性质研究[J]. 食品科学技术学报, 2019, 37(2): 36-41.DOI:10.3969/j.issn.2095-6002.2019.02.006.
[14] Triyaswati D, Ilmi M. Lipase-producing filamentous fungi from nondairy creamer industrial waste[J]. Microbiology and Biotechnology Letters, 2020, 48(2): 167-178. DOI:10.4014/mbl.1912.12018.
[15] 郑小梅, 伍宁丰, 范云六. 来源于青霉XMZ-9两个低温脂肪酶的基因克隆、原核表达与性质测定[J]. 生物工程学报, 2012, 28(4): 488-497. DOI:10.13345/j.cjb.2012.04.010.
[16] Huang Meiping, Wu Min, Xu Qiangsheng, et al. Highly efficient synthesis of fructooligosaccharides by extracellular fructooligosaccharide-producing enzymes and immobilized cells of Aspergillus aculeatus M105 and purification and biochemical characterization of a fructosyltransferase from the fungus[J]. Journal of Agricultural and Food Chemistry, 2016, 64(33): 6425-6432.
[17] 周康熙, 陈思鹏, 王泽楠, 等. 红曲中红曲菌的鉴定及优质菌的筛选[J].中国食品学报, 2023, 23(1): 296-305. DOI:10.16429/j.1009-7848.2023.01.028.
[18] 滕宏飞, 王丹静, 徐青, 等. 橄榄油乳化法测定脂肪酶活性的优化研究[J].食品工业, 2011, 32(6): 80-83.
[19] Abo-Kamer A M, Abdelaziz A A, Elkotb E S, et al. Production and characterization of a promising microbial-derived lipase enzyme targeting BCL-2 gene expression in hepatocellular carcinoma[J]. Microbial Cell Factories, 2025, 24(1): 58. DOI:10.1186/s12934-025-02671-7.
[20] 姚璐晔, 陆嘉虞, 田雨森, 等. 脂肪酶产生菌贝莱斯芽孢杆菌LT-2筛选及产酶条件优化[J]. 生物技术, 2025, 35(3): 304-312; 337.DOI:10.16519/j.cnki.1004-311x.2025.03.0049.
[21] 丛珊滋, 田康明, 张新, 等. 黑曲霉脂肪酶tglE的基因克隆与生化特征解析[J]. 食品与发酵工业, 2019, 45(21): 1-7. DOI:10.13995/j.cnki.11-1802/ts.020595.
[22] Nadaf P, Ghagane S, Nadaf R D, et al. Purification and characterization of lipase from Bacillus subtilis kubt4 for biodiesel production[J].Discover Applied Sciences, 2025, 7(2): 116. DOI:10.1007/s42452-024-06340-z.
[23] Tailor A J, Bariya N K, Gadhvi R R. Harnessing a thermo-active and alkaline lipase from novel strain of Brevibacillus borstelensis gp-1, for application in biodiesel synthesis[J]. Biocatalysis and Biotransformation, 2025, 43(1): 14-28. DOI:10.1080/10242422.2024.2391873.
[24] 刘慧平, 谢炜, 周春晖, 等. 产耐热碱性脂肪酶菌株筛选鉴定与酶学性质研究[J]. 广东轻工职业技术大学学报, 2025, 24(3): 1-7.DOI:10.3969/j.issn.1672-1950.2025.03.002.
[25] Chen Gang, Khan I M, He Wensen, et al. Rebuilding the lid region from conformational and dynamic features to engineering applications of lipase in foods: current status and future prospects[J].Comprehensive Reviews in Food Science and Food Safety, 2022,21(3): 2688-2714. DOI:10.1111/1541-4337.12965.
[26] Hertadi R, Widhyastuti H. Effect of Ca2+ ion to the activity and stability of lipase isolated from Chromohalobacter japonicus BK-AB18[J]. Procedia Chemistry, 2015, 16: 306-313. DOI:10.1016/j.proche.2015.12.057.
[27] Yaacob N, Mohamad Ali M S, Salleh A B, et al. Toluene promotes lid 2 interfacial activation of cold active solvent tolerant lipase from Pseudomonas fluorescens strain AMS8[J]. Journal of Molecular Graphics and Modelling, 2016, 68: 224-235. DOI:10.1016/j.jmgm.2016.07.003.