酵母作为重要的微生物资源,已被广泛应用于发酵食品、饲料、医药等行业之中[1]。酵母的生长除了必需碳源、氮源、水和无机盐外,还需要B族维生素、特定氨基酸、核苷酸以及肌醇在内的多种生长因子[2],其中肌醇,别称环己六醇(C6H12O6),不仅是构成细胞膜磷脂的关键前体,还参与调控细胞内信号转导,是维持酵母细胞内代谢稳态不可或缺的重要生长因子之一。
在酵母细胞中,肌醇除了可作为相容性溶质[3],帮助酵母细胞应对渗透压变化、干旱、高盐等环境胁迫等外,还主要作为前体物质合成磷脂酰肌醇(phosphatidylinositol,PI)及其磷酸化磷脂酰肌醇(phosphatidylinositol phosphate,PIP)、磷脂酰肌醇-4,5-二磷酸(phosphatidylinositol-4,5-bisphosphate,PIP2)、磷脂酰肌醇-3,4,5-三磷酸(phosphatidylinositol-3,4,5-trisphosphate,PIP3)等磷酸化衍生物,对维持细胞膜稳定性、细胞形态、离子稳态及代谢调控等生理功能起着关键的作用[4]。研究表明,肌醇可以促进酵母细胞生长和生物量积累[5]。如果酵母细胞中缺乏肌醇,将对PI、RNA、蛋白质、细胞壁合成以及细胞分裂产生不利的影响,由此将导致细胞失去维持机体稳态的能力[6]。缺乏肌醇不仅会降低酵母的生长和代谢速度,还会导致不良代谢产物的产生[7]。系统性地掌握肌醇促进酵母生长的机制,有助于优化酵母培养工艺、提高发酵效率、拓展其在工业生产中的应用潜力[8]。本文介绍肌醇及其衍生物的生理功能、阐述酵母细胞内肌醇的合成途径,总结酵母对于肌醇的转运与利用的分子机制,并综述外源添加肌醇对不同酵母发酵的影响,旨在探究肌醇对酵母生长的作用机制,为酵母发酵性能的改善提供理论依据。
1 肌醇及其衍生物
肌醇作为重要的生长因子,其衍生物的形成过程是生物体内微量元素合成、复杂磷脂合成、信号传导等生理化学反应的重要途径[9],肌醇衍生物是由肌醇通过磷酸化、焦磷酸化或与脂质结合等方式转化形成的一类分子[10]。这些结构极大地拓展了肌醇的生理功能范围,使其从基础代谢成分转变为直接调控细胞生命活动的关键信号分子。
1.1 肌醇
1850年,德国医生和化学家Scherer首次从肌肉中分离出一种具有甜味的“新糖类”物质,精确推算出该物质实验式,将其命名为inositol(肌醇)[11];1887年Maquenne证实该化合物为一种环己六醇[12]。由于肌醇中环己烷的“椅式构象”和6个羟基的空间排布方式不同,存在9种立体异构体,其中myo-、D-chiro-、muco-、neo-和scyllo-肌醇存在于自然界中,含量最为丰富的是myo-肌醇,其次是D-chiro-肌醇;L-chiro-、allo-、epi-和cis-肌醇异构体由myo-肌醇衍生或化学合成[13]。在酵母细胞中研究最多的肌醇也是myo-肌醇。
在酵母细胞中,肌醇主要参与维持膜磷脂稳态,调节离子通道的通透性[14]、胞内磷酸盐水平以及代谢流量平衡等[15]。作为细胞内第二信使PI生物合成的前体物质,肌醇直接影响膜脂组成、膜流动性及膜蛋白的定位与功能,进而维持细胞膜的结构完整性、胞内物质运输与信号接收的效率。通过生成肌醇-1,4,5-三磷酸(inositol1,4,5-trisphosphate,IP3)、PIP2等关键磷酸化衍生物,肌醇还能够调控细胞内钙稳态这一重要生理途径[16]。此外,肌醇还对PI、双磷脂酰甘油及磷脂酰胆碱等合成酶的表达具有调控作用[17]。
1.2 肌醇衍生物
根据肌醇衍生物的化学结构和存在形式,可以将其分为水溶性的肌醇多磷酸及其焦磷酸化衍生物和脂溶性的PI及其磷酸化衍生物[18]。其中,肌醇多磷酸还可以通过焦磷酸化生成肌醇焦磷酸[9],其焦磷酸基团能够对细胞内蛋白质进行焦磷酸化修饰,以此调节蛋白质的活性及生理功能。除此之外,PI及其磷酸化衍生物不仅是细胞内信号转导通路的关键介质,并且还在维持基因组稳定性、抗氧化及调节矿质代谢中发挥重要作用。
1.2.1 肌醇多磷酸及其衍生物
肌醇多磷酸是一类在肌醇环上连接多个磷酸基团的信号分子,是细胞代谢和信号传递所必需的富磷分子[19],其不仅调控着酵母细胞中糖类、脂质代谢过程中相关转运酶的表达,还是多种信号分子的组成部分[20]。其中肌醇七磷酸(diphosphoinositol pentakisphosphate,IP7)由肌醇六磷酸激酶(inositol hexaphosphate kinases,IP6Ks)催化肌醇六磷酸(inositol hexaphosphate,IP6)生成,可以与细胞周期蛋白依赖性激酶复合物结合,调节细胞内磷酸盐代谢。此外,肌醇多磷酸的焦磷酸化则是在其基础上进一步生成的衍生物。焦磷酸肌醇由2类激酶催化合成:IP6Ks[21]和焦磷酸肌醇五磷酸激酶类激酶[22],二者均具有遗传保守性。焦磷酸肌醇属于高能磷酸化合物,具有高能磷酸键[23],这是与其他磷酸肌醇分子完全不同的分子构象[24],在酵母细胞中也发挥着重要的作用,如5-二磷酸肌醇五磷酸(5-diphosphoinositol pentakisphosphate,5-InsP7)不仅能通过感知并传导细胞内ATP水平调控能量代谢,还广泛参与基因表达、物质运输、磷酸盐水平调控等多种细胞生物学过程[25]。在酵母中,另一重要的肌醇焦磷酸异构体1-二磷酸肌醇五磷酸(1-diphosphoinositol pentakisphosphate,1-InsP7)由肌醇多磷酸激酶Vip1催化合成,它不仅是5-InsP7进一步磷酸化生成肌醇八磷酸(inositol octakisphosphate,IP8)的关键前体,还与5-InsP7共同构成一个精细且动态的肌醇焦磷酸信号网络[26]。
1.2.2 PI及其衍生物
PI是肌醇环上某个特定的羟基与胞苷二磷酸-二酰基甘油(cytidine diphosphate-diacylglycerol,CDP-DAG)分子中已活化的磷酸基团结合后形成的脂溶性肌醇衍生物。肌醇上的多个羟基也为PI继续磷酸化(形成PIP)提供了基础。PI在酵母细胞中信号传导途径见图1。
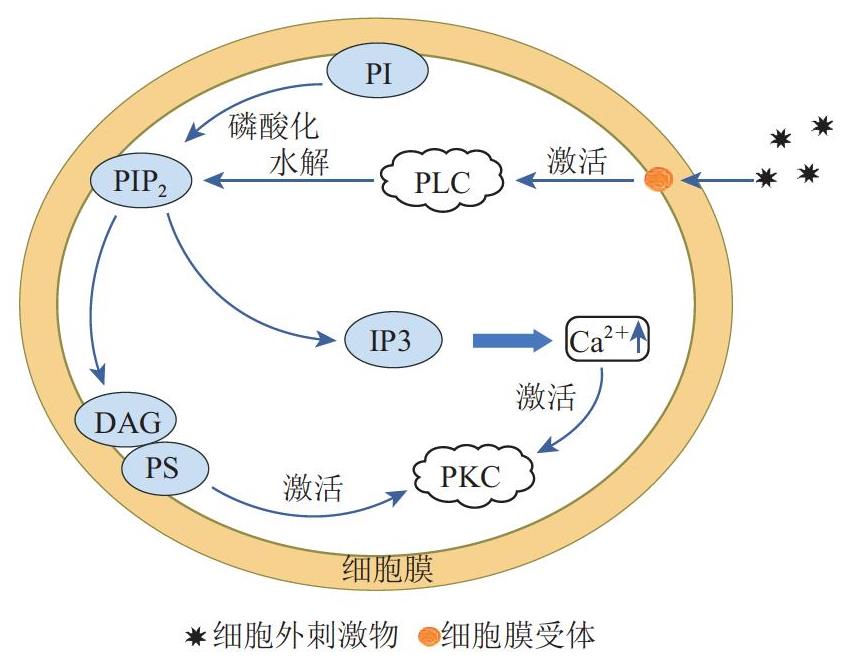
图1 PI在酵母中信号传导途径
Fig.1 Signal transduction pathway of phosphatidylinositol in yeast
在酵母乙醇发酵的相关研究中,PI含量与菌体发酵性能及胁迫耐受性密切相关[27]。在相同遗传背景下,酵母细胞在含肌醇培养基中培养至24 h时,其PI含量较不含肌醇的对照组显著升高。该条件下,PI含量较高的细胞表现出更高的乙醇产量与更快的产乙醇速率。在酵母细胞中,PI在磷脂酰肌醇-4-激酶和磷脂酰肌醇-4-磷酸-5-激酶催化下通过ATP水解驱动肌醇分子的第4位和第5位上发生磷酸化反应[28],即形成PIP2。当细胞外信号分子与细胞表面的受体结合并激活了受体膜上的磷脂 酶C(phospholipase C,PLC),活化的PLC水解PIP2并产生2个关键的第二信使:IP3和DAG[29]。IP3具有水溶性,会迅速扩散到细胞质中,被快速转换成多磷酸盐进而重新合成为肌醇,使细胞内不会再有过多的IP3积累。尽管酵母细胞中未发现有类似于哺乳动物细胞中的IP3受体通道,但有研究表明IP3在酵母细胞中的缺失却能够增强Ca2+信号,继而引起细胞内Ca2+库的释放[30],活化细胞中的多种酶,如蛋白激酶C(protein kinase C,PKC)[31]。DAG具有亲脂性,会继续留在细胞质膜上,并与聚集在膜上的磷脂酰丝氨酸(phosphatidylserine,PS)及因IP3分解而升高的Ca2+发挥协同作用,完全激活PKC[32]。PKC与DAG、PS、Ca2+形成活化的PKC·PS·DAG·Ca2+复合物。活化的PKC会引起pH值和细胞膜的变化[33],最终引发一系列的细胞反应,如调控细胞周期、基因表达改变等[34]。
2 酵母胞内肌醇的代谢与调控
2.1 酵母胞内肌醇的合成途径
酵母细胞内肌醇的合成途径如图2所示。酵母摄入的葡萄糖在己糖激酶(hexokinase,HK)的催化下磷酸化为葡萄糖-6-磷酸(glucose-6-phosphate,G6P),再由肌醇-1-磷酸合成酶(inositol-1-phosphate synthase,MIPS)催化环化生成肌醇-1-磷酸(inositol-1-phosphate,Ins1P),最后经肌醇单磷酸酶(inositol monophosphatase,IMP)催化形成肌醇。该内源合成路径在葡萄糖充足条件下可维持酵母细胞基本需求。值得注意的是,当酵母细胞感知肌醇不足或内质网应激时,肌醇需求酶1(inositol requiring enzyme 1,Ire1)被激活,通过触发未折叠蛋白反应(unfolded protein response,UPR)上调众多相关基因(如编码MIPS的INO1基因)的表达,间接促进肌醇的合成[35]。尽管Ire1未直接参与酵母细胞中肌醇的合成,但它在转录水平上对肌醇合成起到了间接调控作用。
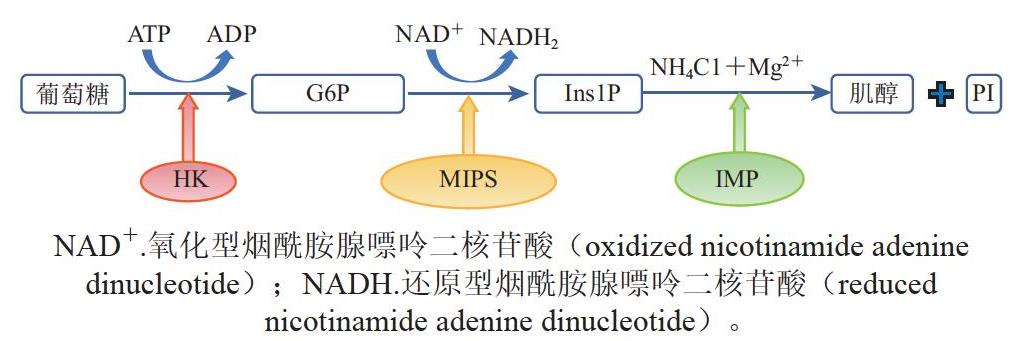
图2 酵母中肌醇的合成途径
Fig.2 Biosynthetic pathway of inositol in yeast
在不同酵母细胞中,肌醇合成能力存在显著分化,其根本原因在于基因组是否能够编码完整的肌醇合成通路,尤其是由INO1基因编码的关键酶MIPS是否能够发挥作用。据此,酵母细胞可分为2种基本类型:肌醇自养型酵母和肌醇营养缺陷型酵母[36]。肌醇自养型酵母保有完整的肌醇合成途径,能够自主地将G6P转化为肌醇,无需外源供给。酿酒酵母(Saccharomyces cerevisiae)是此类别的典型模式生物。此外,巴斯德毕赤酵母(Pichia pastoris)、乳酸克鲁维酵母(Kluyveromyces lactis)等常见酵母也属于这一代谢类型,在自然界中分布广泛[37]。肌醇营养缺陷型酵母在进化过程中丢失了肌醇合成的关键酶—MIPS,其生长严格依赖外源肌醇摄取。这会导致细胞膜磷脂组成异常、信号传导缺陷及内质网稳态失衡等一系列生理障碍。粟酒裂殖酵母(Schizosaccharomyces pombe)是目前研究最为深入的天然肌醇缺陷型菌株[38]。
2.1.1 HK对葡萄糖的激活
HK是催化葡萄糖磷酸化为G6P的关键酶,该反应消耗ATP且不可逆,是肌醇内源合成途径的起点。在酿酒酵母中,主要存在己糖激酶1(hexokinase 1,Hxk1)与Hxk2 2种同工酶[39],它们同时作用并协调葡萄糖的磷酸化进程,确保碳源能够被高效转化为下游代谢所需的前体物质。研究表明,胞内肌醇的合成通量严格依赖于HK所催化的产物—G6P的供给水平[40]。因此,HK的活性直接制约了MIPS的催化效率。
2.1.2 Ire1介导的应激响应
Ire1是酵母细胞自身合成肌醇所必需的。细胞内肌醇水平下降或不足时会破坏内质网稳态,引发内质网应激,从而激活UPR。与哺乳动物有3种内质网应激传感器不同,酵母细胞中UPR的激活完全依赖于Ire1传感器[41]。当感知到腔内折叠蛋白的累积时,Ire1通过激活胞质激酶(丝氨酸蛋白激酶和苏氨酸蛋白激酶)和核糖核酸酶结构域转导信号[42],通过产生UPR的关键转录因子Hac1p,Hac1p启动下游基因(包括INO1)的转录,促进MIPS大量合成,从而恢复细胞的肌醇合成能力[43]。
2.1.3 MIPS的催化与限速作用
MIPS是以G6P为底物生物合成肌醇的关键限速酶,其编码基因INO1已在多种酵母中被克隆和测序。张厚程等[44]发现将编码MIPS的巴斯德毕赤酵母INO1基因转化到野生型粟酒裂殖酵母中,所获得的携带INO1基因的粟酒裂殖酵母不仅可以在缺乏肌醇的合成培养基中生长,还能向培养基中分泌大量的肌醇。Krause等[45]研究发现肌醇缺陷型酿酒酵母缺乏MIPS活性,对比其他酿酒酵母,该酵母的生长机能明显衰退,但在培养基中补充适量肌醇后,其生长情况得以逐渐恢复。王昕[46]研究表明,过表达INO1基因可显著提高胞内肌醇含量,在复合抑制剂条件下可使酿酒酵母发酵速率提高约2倍,说明增强肌醇合成路径INO1的表达可有效提高菌株对抑制剂的耐受性。此外,当酵母细胞所处环境中含有充足的外源肌醇时,细胞会自发抑制INO1的表达。这一转录抑制主要由阻遏蛋白肌醇调控覆盖蛋白1(override protein of inositol regulation 1, Opi1)介导[7]。Opi1通过感知内质网膜上磷脂酸和磷脂酰肌醇-4-磷酸水平[47],动态调控自身在内质网膜与细胞核之间的定位,从而控制INO1及其他磷脂合成基因的表达,避免酵母细胞内能量和代谢前体消耗过多。
2.1.4 IMP的去磷酸化释放
IMP催化Ins1P去磷酸化,生成游离的肌醇,从而完成肌醇的最终合成步骤。张齐全[48]以野生巴斯德毕赤酵母为宿主,改造获得GS115型菌株,通过过表达来源于大肠杆菌的外源IMP基因EcIMP,结合碳代谢途径的优化,肌醇产量可达30.71 g/L。Tang Hongting等[49]在其构建的重组巴斯德毕赤酵母中同步过表达了内源IMP基因与大肠杆菌来源的外源基因suhB(编码IMP),分别可以甘油、甲醇、乙醇等为唯一碳源生产肌醇,产量分别达40.00、129.67、228.17 mg/L。
2.2 酵母对于肌醇的转运与利用
肌醇转运蛋白(inositol transporter,Itr)1和Itr2可转运酵母细胞内外源肌醇。Itr1在肌醇转运过程中起主导作用,对肌醇表现出高亲和力,是肌醇转运的主要蛋白;而Itr2是一个肌醇低亲和力转运蛋白,Nikawa等[50]在靶向基因破坏实验中发现Itr1是酿酒酵母中肌醇摄取的主要转运蛋白,而Itr2对酵母细胞肌醇总转运能力的贡献仅占0.4%~3.0%,在常规Northern印迹中很难检测到Itr2转录物,其中Itr1转录物发出强烈的杂交信号。Itr1的转运效率主要受到外源肌醇介导的转录抑制以及泛素化降解途径的共同影响。
2.2.1 外源肌醇对Itr1蛋白的转录抑制
Itr1蛋白定位于酵母细胞质膜,是一种由584个氨基酸残基组成的跨膜蛋白,其跨膜示意图如图3所示,共包含12个跨膜区域,其N末端(第1~81位氨基酸)和C末端(第532~584位氨基酸)均位于细胞内[51]。当培养环境中添加肌醇时,Itr1基因的转录会被抑制[52],外源肌醇的转运效率也会因此而大大减弱。这种反馈抑制机制与内源合成途径的关键酶基因INO1的转录抑制(通过Opi1调控因子)同步发生[53]。此外,在肌醇的特异性诱导下,Itr1蛋白的降解速率也会逐渐加快,在酵母生长对数期时,该蛋白被内吞到液泡中进行降解。由于Itr1基因在酵母摄取外源肌醇过程中具有关键作用,通过提高其表达水平以增强肌醇利用效率已被报道。李杰等[54]将其启动子更换为组成型启动子Ptdh3,使外源肌醇转运效率和葡萄糖二酸(glucaric acid,GA)产量分别提高10%和26%。此外,Itr1蛋白在肌醇诱导下的降解也是限制其转运功能的重要因素。Miyashita等[55]构建了Itr1与绿色荧光蛋白(green fluorescent protein,GFP)的融合蛋白,利用荧光显微镜观察发现,在无肌醇条件下融合蛋白会定位于细胞质膜,而延长培养时间或添加肌醇则会使荧光从膜上消失并发生细胞内重新分布,这也是导致肌醇转运活性下降的主要原因。
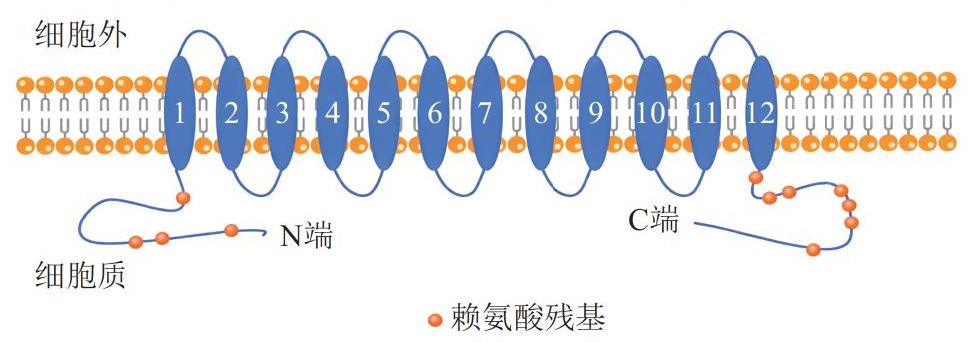
图3 Itr1跨膜示意图
Fig.3 Schematic representation of the transmembrane topology of Itr1
2.2.2 泛素化介导的Itr1蛋白降解
Itr1蛋白不仅受到肌醇的抑制,并且在对数期时还会被肌醇诱导发生泛素化降解,降低外源肌醇向胞内转运的效率。泛素化是一个涉及E1泛素激活酶、E2泛素结合酶和E3泛素连接酶的三步酶促反应[56],该反应过程能够识别并标记靶蛋白,并将其送往蛋白酶体降解,这是细胞调控关键蛋白水平的核心机制[57]。在酵母中,许多细胞质膜转运蛋白的内吞降解是泛素化途径控制[58],Itr1的降解同样依赖泛素化过程。有研究对Itr1内吞降解机制进行了深入探讨,结果表明该过程需要泛素依赖性蛋白降解系统的参与。在正常条件下(尤其是胞外肌醇充足时),Itr1能够迅速被Arrestin相关运输接头蛋白5(arrestin-related trafficking adaptor 5,Art5)与E3泛素连接酶识别并进行泛素化标记,酵母细胞的内吞体系进而将Itr1内吞并送达液泡。在液泡中,Itr1被蛋白酶彻底降解。Santos等[59]利用Itr1-GFP融合蛋白探究H2O2处理条件下Itr1的膜定位变化,发现在该应激条件下其降解受到一定抑制。这表明H2O2可能通过氧化这些蛋白的半胱氨酸残基改变其构象或相互作用,从而阻止Itr1被泛素化标记和内吞。为探究Itr1的N端和C端潜在的泛素化位点(赖氨酸残基)突变对该蛋白降解的影响,左方雨等[53]通过分别构建表达Itr1突变蛋白和Itr1-GFP融合蛋白的工程菌发现,C端突变对Itr1蛋白降解产生了明显的弱化作用;而N端突变菌株中INO1、INM1基因表达上调,磷脂酰肌醇合成酶1的编码基因PIS1表达下调,进而提高了胞内肌醇的积累水平,增强了对外源肌醇的利用 效率。
3 外源添加肌醇对不同酵母发酵性能的影响
大多数酵母在生长过程中可以自行合成生长所需的肌醇,尽管酵母具备内源合成肌醇的能力,但在工业发酵的胁迫环境下(如高渗、抑制剂、产物毒性),内源合成的肌醇往往不足以支撑酵母自身的正常生长。大量研究表明,外源添加肌醇是一种有效的发酵强化途径,能通过提升细胞膜稳定性、提供关键前体、激活保护性信号通路等多种分子机制,增强酵母的胁迫耐受性、产物合成能力与细胞活力[60]。
3.1 酿酒酵母
酿酒酵母是面包、酵母抽提物、啤酒等发酵食品中使用的典型酵母。在酿酒酵母中,外源肌醇通过提升细胞膜PI水平增强细胞膜的完整性[61],从而缓解乙醇等抑制剂导致的细胞膜损伤与内容物泄漏。Furukawa等[62]研究表明,与添加16.2 g/L肌醇相比,添加1.8 g/L肌醇会增加乙醇中泄漏的核苷酸含量,可直接证明肌醇对膜完整性的保护作用。此外,肌醇可能通过PI-PLC信号通路调节抗氧化基因表达[63],降低活性氧积累,从而延缓酵母细胞老化并提高其对复合抑制剂的耐受性。王昕[46]在含抑制剂的培养基中添加20~140 mg/L肌醇,通过点板法观察菌株的生长恢复情况。结果表明,外源肌醇的添加均能显著增强菌株的抑制剂耐受性,明显提升菌落生长密度和存活率。通过基因工程对酿酒酵母INO1进行过表达,结果表明,对照菌在复合抑制剂中需约125 h进入稳定期,而过表达INO1的菌株在约60 h即进入稳定期,发酵速率提高约2倍,显著缩短了酵母的生长延滞期并增强了其抗氧化能力。这除了与肌醇直接作为膜脂关键前体物质有关外,也可能涉及其磷酸化产物(如IP3、IP6)作为信号分子或抗氧化剂[64],调控氧化应激响应基因的表达。在发酵过程中,适量肌醇优化了酵母细胞的膜脂调控功能,促进木糖利用与乙醇产出。
3.2 乳酸克鲁维酵母
乳酸克鲁维酵母可高效利用乳糖,并作为蛋白高效表达宿主菌,应用于食品酶制剂和医用蛋白等工业领域[65]。该酵母中的肌醇可作为冷冻保护剂,通过维持膜脂有序性减少冰晶损伤。Péter等[66]分别配制含8%脱脂奶粉和4%肌醇的Cr1、含100%灭活马血清和5%肌醇的Cr2这2种冷冻保护剂,其中Cr2使酵母冷冻存活率达75%,这表明肌醇在冷冻过程中可能部分替代水分子与磷脂极性头部相互作用[67],抑制冰晶形成对膜结构的机械损伤。肌醇可快速抑制磷脂酰甘油磷酸合成酶(phosphatidyl glycerin phosphate synthase,PGPS)的活性,但不影响其转录。Tichá等[68]在培养基中添加13.5 g/L肌醇,使PGPS活性下降30%,而mRNA水平不变,说明肌醇不通过转录水平调控PGS1基因表达,但能快速抑制PGPS的活性。这可能是肌醇或其代谢物能够作为变构效应物结合到PGPS的变构位点上,改变其构象,从而抑制该酶活性[69],此外,肌醇还可能通过重塑细胞整体的脂质代谢平衡,促进不饱和脂肪酸等具有抗冻保护功能的脂质合成,从而提升细胞在冷冻胁迫下的存活率。
3.3 红法夫酵母(Phaffia rhodozyma)
红法夫酵母是一种红色的嗜冷酵母,生长温度范围为0~27 ℃。该酵母可合成虾青素,产量为0.2~0.4 mg/g[70]。外源添加肌醇能够促进虾青素合成,主要因其作为PI的关键前体,为虾青素的合成与积累提供了必要的脂质环境支持。王宝贝等[71]研究表明,在基础培养基中添加0.50 mg/L肌醇,红法夫酵母UV3-721的总类胡萝卜素和虾青素产量达到最高值,分别为4.7 g/L和4.1 g/L。同时,肌醇及其磷酸盐衍生物可能协助缓解类胡萝卜素、虾青素合成过程中的氧化压力,并间接通过信号通路调节类胡萝卜素代谢基因。朱薿[72]研究发现,肌醇添加量为1 mg/L时,虾青素产量达到最高值,为7.00 mg/L。当质量浓度继续提高至50、100 mg/L时,虾青素积累进一步受到抑制,产量分别下降至6.6 mg/L和6.2 mg/L,说明过量肌醇不利于虾青素合成。虾青素合成途径高度依赖氧化步骤,易产生活性氧,肌醇衍生物如IP6已被证实具有抗氧化功能[73],可能有助于保护氧化过程中的关键酶系。
3.4 巴斯德毕赤酵母
巴斯德毕赤酵母主要用于生产GA、类胡萝卜素、洛伐他汀和诺卡酮等高附加值化学物质[74]。巴斯德毕赤酵母自身缺乏完整的GA合成途径,于构建的GA生产工程菌中添加肌醇可提升GA产量。Krishna等[75]在摇瓶发酵中补充10.8 g/L肌醇,巴斯德毕赤酵母工程菌的生物量提高25.5%,GA产量提升73%。王毳[76]研究表明,在培养巴斯德毕赤酵母时,向培养基中添加10 g/L肌醇,可以使工程菌的GA产量从0.34 g/L明显提高至1.6 g/L。在10 g/L肌醇存在的条件下,细胞可能通过上调Itr1等肌醇转运蛋白的活性增强摄取肌醇的能力,协调中心代谢流,将更多外源肌醇导向细胞内肌醇衍生物的合成途径。然而,仍需根据具体菌株情况和培养条件优化确定外源肌醇的最佳浓度,以避免可能的前体抑制或代谢失衡。
3.5 其他酵母
在嗜鞣管囊酵母(Pachysolen tannophilus)中,肌醇则通过增强膜稳定性,提升其对乙醇胁迫的抵抗能力。季冉[77]研究表明,添加0~0.2 g/L肌醇可明显提高该酵母在发酵中的耐乙醇能力。在肌醇质量浓度为0.15 g/L 时,其生物量最高,达45.20 g/L。这种保护作用可能源于肌醇对膜脂组成的调节作用,从而提高酵母细胞膜在乙醇中的稳定性,也可能通过信号途径诱导了应激蛋白的表达。对于肌醇缺陷型的粟酒裂殖酵母,外源肌醇通过提高PI含量保障分泌途径膜结构与功能,促进蔗糖酶等蛋白的分泌。Zhang Houcheng等[38]研究表明,添加8 mg/L肌醇可增强蔗糖酶活性,此时细胞内PI含量显著升高,表明肌醇不仅作为膜成分前体,还可能通过PI衍生物(如PIP2)参与囊泡形成与运输的调控。当肌醇添加量超过8 mg/L后,其对蔗糖酶分泌的促进效果显著减弱,这表明过量添加肌醇可能导致酵母生长受到抑制或提前进入平台期。
4 结 语
酵母的发酵性能与其生长代谢机制密切相关。肌醇不仅是合成PI的核心前体,其多种磷酸化衍生物(如IP3、PIP2等)深度参与酵母细胞的信号转导、膜运输及应激响应等重要生理过程。酵母通过内源合成与外源转运两条途径获取肌醇,高效的肌醇转运系统对维持细胞稳态与生长稳定性具有重要作用。虽然酿酒酵母的外源肌醇转运机制研究较为清晰,但转运蛋白Itr1表达受到细胞内多种因素的限制,还需系统解析Itr1在转录、翻译后修饰及蛋白降解水平所涉及的调控机制。优化肌醇补给策略是改善酵母工业发酵性能的有效手段,针对不同酵母菌种的生理特性,利用补充肌醇来提升其特色发酵工艺,从而显著提升酵母发酵性能和稳定性,促进酵母发酵工业的发展。
[1] Stindlova M, Peroutka V, Zdenkova K, et al. Assessing metabolic activity of yeast biofilm-forming cells on nanofibrous materials using MTT assay[J]. Folia Microbiologica, 2026, 71: 899-906. DOI:10.1007/s12223-025-01304-1.
[2] 黄贞杰, 陈由强, 陈丽霞, 等. 代谢工程改造酿酒酵母合成肌醇[J].微生物学通报, 2017, 44(10): 2289-2296. DOI:10.13344/j.microbiol.china.170461.
[3] 盘柳萍, 谢晓航. 发酵促进剂在酒精发酵过程中对酿酒酵母的影响[J]. 轻工科技, 2013, 29(5): 27-28; 62.
[4] Löser T, Bekbulat F, Behl C, et al. Phosphatidylinositol 3-phosphate metabolism impacts cellular α-synuclein localization in Saccharomyces cerevisiae[J]. Journal of Biological Chemistry, 2025, 301(10): 110666.DOI:10.1016/j.jbc.2025.110666.
[5] 杨熠辰. 代谢工程改造大肠杆菌生产肌醇与棉子糖[D]. 杨凌: 西北农林科技大学, 2025. DOI:10.27409/d.cnki.gxbnu.2025.001448.
[6] Nikawa J, Hosaka K, Yamashita S. Differential regulation of two myoinositol transporter genes of Saccharomyces cerevisiae[J]. Molecular Microbiology, 1993, 10(5): 955-961. DOI:10.1111/j.1365-2958.1993.tb00967.x.
[7] 吴琦璐, 王世琨, 甄玉国, 等. 肌醇的制备工艺及应用研究进展[J].黑龙江畜牧兽医, 2023(20): 41-46; 51.
[8] 陈安琪, 厉蝶, 王坤朋, 等. 基于海藻糖代谢及转运的酿酒酵母抗逆机制研究[J]. 食品研究与开发, 2024, 45(15): 189-195. DOI:10.12161/j.issn.1005-6521.2024.15.025.
[9] Schwer B, Prucker I, Sanchez A M, et al. Tandem inactivation of inositol pyrophosphatases Asp1, Siw14, and Aps1 illuminates functional redundancies in inositol pyrophosphate catabolism in fission yeast[J]. mBio, 2025, 16(5): e0038925. DOI:10.1128/mbio.00389-25.
[10] 高健, 郭忠武. 糖基磷脂酰肌醇及其锚定蛋白的合成研究进展[J].中国科学: 化学, 2013, 43(8): 964-983.
[11] Scherer. Ueber eine neue, aus dem Muskelfleische gewonnene Zuckerart[J]. Justus Liebigs Annalen der Chemie, 1850, 73(3): 322-328. DOI:10.1002/jlac.18500730303.
[12] Maquenne. Préparation, proprietés et constitution se l’inosite[J].Comptes Rendus Hebdomadaires des Séances de l’Académie des Sciences, 1887, 104: 225-227.
[13] Dinicola S, Unfer V, Facchinetti F, et al. Inositols: from established knowledge to novel approaches[J]. International Journal of Molecular Sciences, 2021, 22(19): 10575. DOI:10.3390/ijms221910575.
[14] Michell R H. Inositol derivatives: evolution and functions[J]. Nature Reviews Molecular Cell Biology, 2008, 9(2): 151-161. DOI:10.1038/nrm2334.
[15] Saiardi A. How inositol pyrophosphates control cellular phosphate homeostasis?[J]. Advances in Biological Regulation, 2012, 52(2): 351-359. DOI:10.1016/j.jbior.2012.03.002.
[16] 梁晨, 张萌, 喻其林, 等. 巴斯德毕赤酵母Orm1蛋白在细胞生长和内质网功能维持方面的功能[J]. 微生物学通报, 2017, 44(4): 755-765.DOI:10.13344/j.microbiol.china.160737.
[17] 吴琦璐. 高产肌醇酿酒酵母工程菌的构建及应用研究[D]. 长春:吉林农业大学, 2024. DOI:0.27163/d.cnki.gjlnu.2024.000436.
[18] 吴俐, 王若仲, 徐文忠. 拟南芥中myo-肌醇-多磷酸合成与代谢及其信号[J]. 植物学报, 2013, 48(1): 94-106.
[19] Hale A T, Clarke B P, York J D. Metabolic labeling of inositol phosphates and phosphatidylinositols in yeast and mammalian cells[M]//Miller G J. Inositol phosphates: methods and protocols. New York: Springer US, 2020: 83-92. DOI:10.1007/978-1-0716-0167-9_7.
[20] 程维维, 陈媛媛, 付成来. 焦磷酸肌醇的功能及其在疾病中的 作用[J]. 生理科学进展, 2022, 53(5): 379-384. DOI:10.3969/j.issn.0559-7765.2022.05.015.
[21] Saiardi A, Erdjument-Bromage H, Snowman A M, et al. Synthesis of diphosphoinositol pentakisphosphate by a newly identified family of higher inositol polyphosphate kinases[J]. Current Biology, 1999, 9(22): 1323-1326. DOI:10.1016/S0960-9822(00)80055-X.
[22] Mulugu S, Bai W, Fridy P C, et al. A conserved family of enzymes that phosphorylate inositol hexakisphosphate[J]. Science, 2007, 316: 106-109. DOI:10.1126/science.1139099.
[23] Dasgupta D, Ghosh D, Bandhu S, et al. Purification, characterization and molecular docking study of NADPH dependent xylose reductase from thermotolerant Kluyveromyces sp. IIPE453[J]. Process Biochemistry, 2016, 51(1): 124-133. DOI:10.1016/j.procbio.2015.11.007.
[24] Bennett M, Onnebo S M N, Azevedo C, et al. Inositol pyrophosphates:metabolism and signaling[J]. Cellular and Molecular Life Sciences,2006, 63(5): 552-564. DOI:10.1007/s00018-005-5446-z.
[25] Qin Ning, Li Lingyun, Ji Xu, et al. Flux regulation through glycolysis and respiration is balanced by inositol pyrophosphates in yeast[J]. Cell,2023, 186(4): 748-763. DOI:10.1016/j.cell.2023.01.014.
[26] Steidle E A, Chong L S, Wu Mingxuan, et al. A novel inositol pyrophosphate phosphatase in Saccharomyces cerevisiae[J]. Journal of Biological Chemistry, 2016, 291(13): 6772-6783. DOI:10.1074/jbc.m116.714907.
[27] 季冉, 袁兴中, 曾光明, 等. 外加肌醇对嗜鞣管囊酵母发酵的酒精产量及其耐酒精能力的影响[J]. 生物技术通报, 2008(2): 163-167; 171.
[28] 冉茂双, 包佳玲, 潘国庆. 胞内寄生病原调控宿主细胞凋亡研究进展[J]. 微生物学报, 2025(11): 4827-4841. DOI:10.13343/j.cnki.wsxb.20250357.
[29] Sanchez A, Winebrenner C T, Garcia N, et al. G-protein-coupled receptor kinase 2 limits CCL21-induced T cell migration via phospholipase Cγ1[J]. Receptors, 2025, 4(3): 17. DOI:10.3390/receptors4030017.
[30] 马天禹. 肌醇多磷酸激酶Vip1在白念珠菌自噬过程中的功能研究[D]. 天津: 南开大学, 2020. DOI:10.27254/d.cnki.gnkau.2020.000055.
[31] De Ridder I, Kerkhofs M, Lemos F O, et al. The ER-mitochondria interface, where Ca2+ and cell death meet[J]. Cell Calcium, 2023, 112:102743. DOI:10.1016/j.ceca.2023.102743.
[32] 刘珮瑶, 王琨, 梁杉, 等. 茯苓多糖组成结构及生物活性研究进展[J]. 食品科学, 2023, 44(1): 380-391. DOI:10.7506/spkx1002-6630-20220207-020.
[33] 池振明, 张厚程, 赵双枝. 酵母菌磷脂酰肌醇(PI)的生物合成及其重要的生理学功能[J]. 生物工程进展, 2002(2): 40-43.
[34] Lee S, Gaspar M L, Aregullin M A, et al. Activation of protein kinase C-mitogen-activated protein kinase signaling in response to inositol starvation triggers Sir2p-dependent telomeric silencing in yeast[J].Journal of Biological Chemistry, 2013, 288(39): 27861-27871.DOI:10.1074/jbc.M113.493072.
[35] Swift C L, Malinov N G, Mondo S J, et al. A genomic catalog of stress response genes in anaerobic fungi for applications in bioproduction[J].Frontiers in Fungal Biology, 2021, 2: 708358. DOI:10.3389/ffunb.2021.708358.
[36] 黄贞杰, 陈由强. 微生物法生产肌醇研究进展[J]. 食品工业科技,2015, 36(16): 384-389; 400.
[37] 蒋可. 肌醇稳定高产菌株的设计构建[D]. 北京: 北京化工大学,2024. DOI:10.26939/d.cnki.gbhgu.2024.001176.
[38] Zhang Houcheng, Chi Zhenming. Inositol and phosphatidylinositolmediated invertase secretion in Schizosaccharomyces pombe[J].Enzyme and Microbial Technology, 2004, 34(3/4): 213-218.DOI:10.1016/j.enzmictec.2003.06.003.
[39] 白振敏, 郭姝媛, 杨一群, 等. 微生物利用CO2及其低碳衍生物为原料制备粮食类产物的研究进展[J]. 生物工程学报, 2024, 40(8):2731-2746. DOI:10.13345/j.cjb.240164.
[40] 闫学娇. 粟酒裂殖酵母Asp1p影响乙酸耐受性的研究[D]. 天津:天津科技大学, 2023. DOI:10.27359/d.cnki.gtqgu.2023.000562.
[41] Zhang Lingrui, Zhang Changwei, Wang Aiming. Divergence and conservation of the major UPR branch IRE1-bZIP signaling pathway across eukaryotes[J]. Scientific Reports, 2016, 6: 27362. DOI:10.1038/srep27362.
[42] Tran N, Carter S D, De Mazière A, et al. The stress-sensing domain of activated IRE1α forms helical filaments in narrow ER membrane tubes[J]. Science, 2021, 374: 52-57. DOI:10.1126/science.abh2474.
[43] 王海勇. UPR信号通路遗传操作提高酵母异源表达[D]. 天津: 天津大学, 2010.
[44] 张厚程, 池振明, 于典科, 等. INO1基因在粟酒裂殖酵母中的表达及对蔗糖酶分泌和磷脂合成的影响[J]. 山东大学学报(理学版),2002(6): 544-547.
[45] Krause E L, Villa-García M J, Henry S A, et al. Determining the effects of inositol supplementation and the opi1 mutation on ethanol tolerance of Saccharomyces cerevisiae[J]. Industrial Biotechnology, 2007, 3(3):260-268. DOI:10.1089/ind.2007.3.260.
[46] 王昕. 酿酒酵母耐受抑制剂的性能强化[D]. 天津: 天津大学, 2015.
[47] 尹雪萍. 肌肉肌醇对糖尿病大鼠糖代谢和胃肠动力的影响研究[D].青岛: 青岛大学, 2018. DOI:10.27262/d.cnki.gqdau.2018.000033.
[48] 张齐全. 代谢工程改造毕赤酵母生产肌醇[D]. 北京: 中国农业科学院, 2021. DOI:10.27630/d.cnki.gznky.2021.000187.
[49] Tang Hongting, Wu Lianghuan, Guo Shuyuan, et al. Metabolic engineering of yeast for the production of carbohydrate-derived foods and chemicals from C1-3 molecules[J]. Nature Catalysis, 2023, 7(1):21-34. DOI:10.1038/s41929-023-01063-7.
[50] Nikawa J, Tsukagoshi Y, Yamashita S. Isolation and characterization of two distinct myo-inositol transporter genes of Saccharomyces cerevisiae[J]. Journal of Biological Chemistry, 1991, 266(17): 11184-11191. DOI:10.1016/S0021-9258(18)99146-5.
[51] Johnson M E, Edlind T D. Topological and mutational analysis of Saccharomyces cerevisiae Fks1[J]. Eukaryotic Cell, 2012, 11(7): 952-960. DOI:10.1128/ec.00082-12.
[52] 李杰. 酿酒酵母高产葡萄糖二酸的代谢改造及发酵优化[D]. 无锡:江南大学, 2021. DOI:10.27169/d.cnki.gwqgu.2021.001460.
[53] 左方雨, 赵运英, 邓禹. 酿酒酵母肌醇转运蛋白突变体的构建及其在葡萄糖二酸合成中的应用[J]. 微生物学通报, 2024(11): 4429-4450. DOI:10.13344/j.microbiol.china.240185.
[54] 李杰, 赵运英, 邓禹. 高效合成葡萄糖二酸酿酒酵母工程菌的构建[J]. 生物工程学报, 2022, 38(2): 705-718. DOI:10.13345/j.cjb.210151.
[55] Miyashita M, Shugyo M, Nikawa J. Mutational analysis and localization of the inositol transporters of Saccharomyces cerevisiae[J].Journal of Bioscience and Bioengineering, 2003, 96(3): 291-297.DOI:10.1263/jbb.96.291.
[56] Bunce M W, Boronenkov I V, Anderson R A. Coordinated activation of the nuclear ubiquitin ligase Cul3-SPOP by the generation of phosphatidylinositol 5-phosphate[J]. Journal of Biological Chemistry, 2008, 283(13): 8678-8686. DOI:10.1074/jbc.M710222200.
[57] Damgaard R B. The ubiquitin system: from cell signalling to disease biology and new therapeutic opportunities[J]. Cell Death & Differentiation, 2021, 28(2): 423-426. DOI:10.1038/s41418-020-00703-w.
[58] Hicke L, Dunn R. Regulation of membrane protein transport by ubiquitin and ubiquitin-binding proteins[J]. Annual Review of Cell and Developmental Biology, 2003, 19(1): 141-172. DOI:10.1146/annurev.cellbio.19.110701.154617.
[59] Santos T, Marinho H S, Cyrne L. Regulation of the inositol transporter Itr1p by hydrogen peroxide in Saccharomyces cerevisiae[J]. Archives of Microbiology, 2018, 201(1): 123-134. DOI:10.1007/s00203-018-1584-1.
[60] Ishmayana S, Kennedy U J, Learmonth R P. Preliminary evidence of inositol supplementation effect on cell growth, viability and plasma membrane fluidity of the yeast Saccharomyces cerevisiae[J]. Procedia Chemistry, 2015, 17: 162-169. DOI:10.1016/j.proche.2015.12.106.
[61] 方燕. 肌醇和磷脂酰肌醇在酒精酵母解阻遏突变株蔗糖酶分泌调控中的作用[D]. 青岛: 中国海洋大学, 2005.
[62] Furukawa K, Kitano H, Mizoguchi H, et al. Effect of cellular inositol content on ethanol tolerance of Saccharomyces cerevisiae in sake brewing[J]. Journal of Bioscience and Bioengineering, 2004, 98(2):107-113. DOI:10.1263/jbb.98.107.
[63] 汤庆玲, 黄义德. 酵母糖基磷脂酰肌醇锚定蛋白的生物合成及其在表面展示中的应用[J]. 生物化工, 2024, 10(6): 195-200.DOI:10.3969/j.issn.2096-0387.2024.06.045.
[64] 袁冶. 酿酒酵母Sfh3和APT1的结构生物学研究[D]. 北京: 中国科学技术大学, 2012.
[65] Spohner S C, Schaum V, Quitmann H, et al. Kluyveromyces lactis:an emerging tool in biotechnology[J]. Journal of Biotechnology, 2016,222: 104-116. DOI:10.1016/j.jbiotec.2016.02.023.
[66] Péter G, Reichart O. The effect of growth phase, cryoprotectants and freezing rates on the survival of selected micro-organisms during freezing and thawing[J]. Acta Alimentaria, 2001, 30(1): 89-97.DOI:10.1556/aalim.30.2001.1.10.
[67] 黄斌. 水稻胚对玻璃化超低温保存处理胁迫的响应机制[D]. 福州:福建农林大学, 2018. DOI:10.27018/d.cnki.gfjnu.2018.000094.
[68] Tichá E, Polakovičová V, Obernauerová M. Regulation of phosphatidylglycerolphosphate synthase in aerobic yeast Kluyveromyces lactis[J]. Folia Microbiologica, 2008, 53(4): 319-324.DOI:10.1007/s12223-008-0050-x.
[69] Hamamatsu S S U U, Aiso T, Takagi M, et al. Regulation of phospholipid synthesis in response to nutritional environments in mitochondria of Saccharomyces cerevisiae[J]. Bioscience,Biotechnology, and Biochemistry, 1993, 57(11): 1849-1853.DOI:10.1271/bbb.57.1849.
[70] 张晶. 红法夫酵母菌株筛选及TiO2胁迫提高其虾青素产量的作用机制[D]. 长春: 吉林农业大学, 2022. DOI:10.27163/d.cnki.gjlnu.2022.000011.
[71] 王宝贝, 凌雪萍, 郑宗宇, 等. 维生素对红法夫酵母产虾青素的影响[J]. 厦门大学学报(自然科学版), 2011, 50(1): 111-116.
[72] 朱薿. 红法夫酵母发酵合成虾青素工艺研究[D]. 武汉: 华中科技大学, 2007.
[73] Foster S R, Dilworth L L, Thompson R K, et al. Effects of combined inositol hexakisphosphate and inositol supplement on antioxidant activity and metabolic enzymes in the liver of streptozotocin-induced type 2 diabetic rats[J]. Chemico-Biological Interactions, 2017, 275:108-115. DOI:10.1016/j.cbi.2017.07.024.
[74] Gao Jucan, Jiang Lihong, Lian Jiazhang. Development of synthetic biology tools to engineer Pichia pastoris as a chassis for the production of natural products[J]. Synthetic and Systems Biotechnology, 2021,6(2): 110-119. DOI:10.1016/j.synbio.2021.04.005.
[75] Krishna J, Bose K S C, Varadharaj S, et al. A metabolic-engineering framework approach via fed-batch fermentation for enhancing glucaric acid production in Komagataella phaffii[J]. Enzyme and Microbial Technology, 2025, 187: 110627. DOI:10.1016/j.enzmictec.2025.110627.
[76] 王毳. 重组毕赤酵母葡萄糖二酸合成途径的优化[D]. 无锡: 江南大学, 2018.
[77] 季冉. 氯化钠和外加肌醇对嗜鞣管囊酵母生长和产酒精能力及耐酒精能力的影响[D]. 长沙: 湖南大学, 2008.