酱香型白酒是我国纯粮固态发酵白酒的典型代表,其生产过程复杂、周期长,具有“12987”的典型工艺特征[1-3]。酱香型白酒风味的形成与环境、酿造工艺、微生物之间的协同作用等密不可分[4-5]。传统酱香型白酒生产发酵过程受车间环境、季节变化和人工经验影响较大,酒醅微生物群落演替的过程稳定性和可控性相对较弱[6]。随着白酒产业自动化和标准化水平提高,机械化输送、摊晾、入窖及温湿度调控等技术逐渐应用于制酒过程,有效提高了生产效率和发酵环境稳定性[7-9],但机械化与传统酿造方式的差异会造成酿造环境微生物群落结构差异[6,10-11]。因此,传统工艺与机械工艺的差异不仅体现在操作方式上,也进一步影响优势微生物演替及酸类物质形成[12]。
随着高通量测序、代谢组学及多组学关联分析技术的发展,酱香型白酒发酵过程中微生物群落演替及其风味形成机制成为国内外研究热点。已有研究表明,不同发酵轮次具有显著不同的微生态特征和风味形成规律,其中1、2轮次基酒风味相对粗涩,而3~5轮次基酒品质较优,因此2轮次是前期发酵向优质产酒轮次过渡的重要阶段,其微生物群落组成、理化环境及代谢特征对后续轮次风味形成具有重要影响[3,13-14]。酸度和温度是影响微生物群落结构及风味形成的关键环境因素。乳杆菌属(Lactobacillus)、毕赤酵母属(Pichia)、嗜热子囊菌属(Thermoascus)、伊萨酵母属(Issatchenkia)等优势菌群与有机酸等风味物质形成密切相关[15]。目前已在酱香型白酒中鉴定出60余种有机酸,其中乳酸、乙酸、甲酸、琥珀酸、柠檬酸等是2轮次酒醅中的主要有机酸,乳酸、乙酸这类短链有机酸的积累主要受Lactobacillus等核心菌群驱动[16-19]。此外,白酒生产中乳酸及乳酸乙酯含量过高会引起主体香比例失调,影响酒体品质[20]。因此,解析2轮次乳酸、乙酸等主要酸类物质积累规律及其微生物驱动机制,有助于明确机械工艺降酸调控的关键环节,并为后续轮次风味前体稳定形成提供依据。
本研究以传统工艺和机械工艺下酱香型白酒2轮次酒醅为研究对象,系统比较2种工艺下理化性质、微生物群落、有机酸组成及差异有机酸代谢通路特征,采用高通量测序技术解析酒醅微生物群落结构,结合高效液相色谱(high performance liquid chromatography,HPLC)法测定有机酸组成,使用正交偏最小二乘判别分析(orthogonal partial least squares-discriminant analysis,OPLS-DA),并基于PICRUSt2功能预测与京都基因与基因组百科全书(Kyoto Encyclopedia of Genes and Genomes,KEGG)代谢通路注释分析差异有机酸相关代谢途径,进一步揭示微生物功能与有机酸代谢的关联特征,旨在深入解析酱香型白酒2轮次发酵过程中传统与机械工艺在微生态调控路径上的差异机制,为机械化工艺的理化环境优化、酸度精准调控及品质定向提升提供理论支撑。
1 材料与方法
1.1 材料与试剂
酒醅样品取自贵州某酒企。
盐酸、氢氧化钠、酚酞指示液、无水乙醇(均为分析纯)、硫酸(色谱纯) 天津市江天化工技术股份有限公司;草酸、柠檬酸、酒石酸、琥珀酸、乳酸、甲酸、乙酸、丙酸、丁酸、己酸、葡萄糖标准品 阿拉丁试剂(上海)有限公司;斐林试剂A、斐林试剂B天津一方科技有限公司。
1.2 仪器与设备
MS204S电子分析天平 北京泽祥永兴科技公司;NanoDrop 2000超微量分光光度计 美国Thermo Fisher Scientific公司;1260 HPLC仪 美国Agilent公司;GL21-C高速冷冻离心机 上海安亭科学仪器厂;Aminex HPX-87H有机酸分析柱(300 mm×7.8 mm,9 μm) 美国Bio-Rad公司。
1.3 方法
1.3.1 样品采集
采用朱安然等[5]的方法,在贵州某酒企传统车间(T) 和机械车间(M)堆积发酵末期(第5天,SF)和窖池发酵末期(第30天,PF)采集酒醅样品。
1.3.2 基础理化指标检测
水分、淀粉的测定:参照T/CBJ 004—2018《固态发酵酒醅通用分析方法》;总酸、总酯的测定:NaOH标准溶液(0.1 mol/L)滴定法;还原糖的测定:采用斐林试剂滴定法;氨基酸态氮的测定:采用甲醛滴定法。
1.3.3 有机酸含量测定
采用HPLC法[21]测定酒醅有机酸(草酸、柠檬酸、酒石酸、琥珀酸、乳酸、甲酸、乙酸、丙酸、丁酸和己酸)含量。称取2 g酒醅置于盛有40 mL 5 mmol/L稀硫酸的100 mL锥形瓶中,浸泡2~4 h,每30 min振荡一次,随后将上清液转移至50 mL离心管内,4 ℃、10 000 r/min离心10 min, 经0.22 μm滤膜过滤后置于4 ℃冰箱保存,待检测。
HPLC条件:流动相为5 mmol/L稀硫酸;紫外检测器,检测波长为210 nm;色谱柱为Aminex HPX-87H有机酸分析柱(300 mm×7.8 mm,9 μm),柱温60 ℃;流速0.6 mL/min;进样量10 μL。
1.3.4 高通量测序
将30 g酒醅溶于100 mL 0.1 mol/L磷酸盐缓冲液 (pH 8.0)中,充分振荡混匀,采用布氏漏斗过滤去除高粱、麸皮等大颗粒谷物杂质,真空抽滤上述滤液约10 min使微生物富集于0.22 μm滤膜,用于总DNA提取。
采用引物对338F和806R对细菌16S rRNA基因V3~V4区进行扩增,采用引物对ITS5F和ITS2R扩增真菌内部转录间隔区,扩增条件参考Mu Yu等[22]的方法。扩增子纯化、定量后构建测序文库,在上海派森诺生物科技股份有限公司的Illumina NovaSeq平台上进行2×250 bp双端测序及后续数据处理。
1.4 数据处理
所有实验均重复3次,采用R 4.3.2软件进行统计分析与图形绘制;通过vegan包进行冗余分析(redundancy analysis,RDA);采用PICRUSt2软件预测细菌群落的功能基因组成,并依据KEGG数据库筛选与乳酸、乙酸和丙酸代谢相关的关键酶;通过ggplot2包绘制统计图。
2 结果与分析
2.1 传统工艺和机械工艺酱香型白酒2轮次酒醅理化指标
如图1A所示,各组酒醅水分质量分数为53.81%~55.76%,差异不大。堆积发酵末期,传统工艺和机械工艺酒醅水分质量分数分别为(55.76±1.12)%和(54.34±0.64)%;窖池发酵末期分别为(53.81±1.71)%和(54.82±1.38)%。水分可影响固态发酵体系中的物质传递、酶促反应和微生物生长[13,23]。本研究中各组水分含量接近,表明2种工艺均维持了较稳定的发酵水分条件。
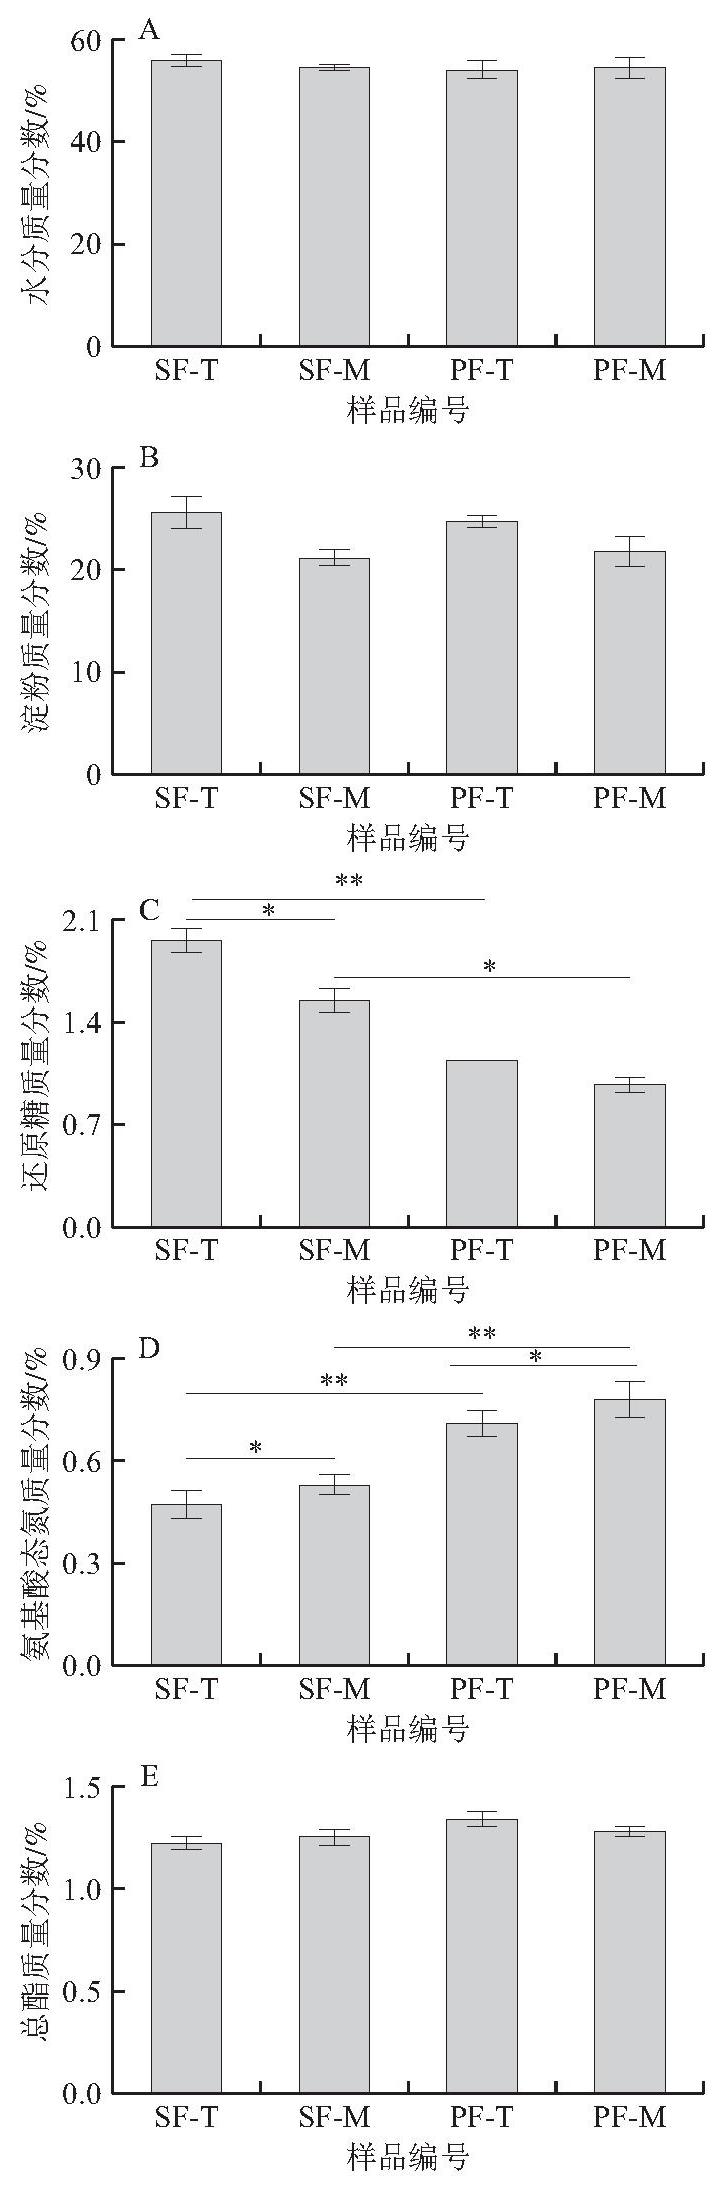
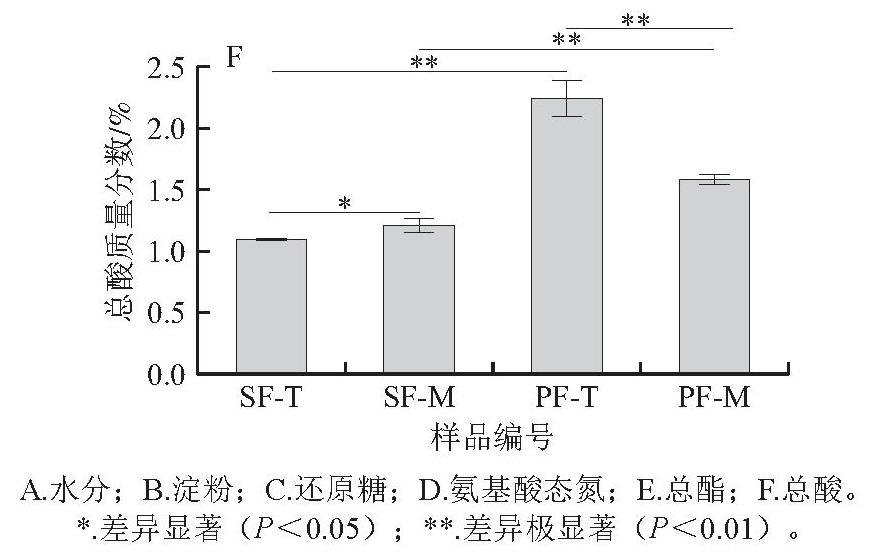
图1 传统工艺和机械工艺酱香型白酒2轮次酒醅理化指标
Fig.1 Physicochemical indicators of second-round fermented grains of sauce-flavor Baijiu by traditional and mechanical crafts
如图1B所示,传统工艺酒醅在2个发酵阶段的淀粉质量分数均高于机械工艺。堆积发酵末期,传统工艺和机械工艺酒醅淀粉质量分数分别为(25.56±1.39)%和(21.19±0.76)%,传统工艺为机械工艺的1.21倍;窖池发酵末期分别为(24.70±0.58)%和(21.84±1.29)%,传统工艺为机械工艺的1.13倍。该差异可能源于机械化酿造模式下物料混合均匀度更高,淀粉被微生物利用的效率提升。原料中碳水化合物的组分与消耗程度会进一步调控发酵体系微生物群落结构,进而改变风味物质代谢进程[24]。
如图1C所示,2种工艺酒醅还原糖质量分数均随发酵进行而下降。堆积发酵末期,传统工艺和机械工艺还原糖质量分数分别为(1.953±0.098)%和 (1.535±0.097)%;窖池发酵末期分别降至(1.130± 0.003)%和(0.970±0.052)%,仅为堆积发酵末期的 57.86%与63.19%。还原糖含量下降表明其在窖池发酵过程中被持续消耗。葡萄糖、麦芽糖等可发酵碳源可促进乳酸菌与酵母菌增殖,并强化两类微生物间的种间互 作[25],也是Pichia生长和风味代谢的重要碳源[24]。
如图1D所示,2种工艺酒醅氨基酸态氮质量分数均随发酵进行而增加,传统工艺酒醅由(0.470±0.037)%升至(0.708±0.034)%;机械工艺由(0.527±0.027)%升至(0.780±0.044)%。在2个发酵阶段,机械工艺酒醅氨基酸态氮含量均高于传统工艺。氨基酸态氮增加主要与微生物分泌蛋白酶并促进蛋白质和多肽水解有关[26]; 机械工艺较均一的物料和环境条件可能有利于蛋白质持续降解[7-8]。
如图1E所示,2种工艺酒醅总酯质量分数变化较小。传统工艺由堆积发酵末期的(1.279±0.137)%增至窖池发酵末期的(1.312±0.089)%;机械工艺由(1.253±0.049)%增至(1.280±0.023)%。总酯含量是微生物产酯、酸醇酯化和酯类水解共同作用的结果。Pichia等产香酵母参与酯类和芳香醇的形成[27-28],但本研究中总酯仅小幅增加,说明2轮次窖池发酵阶段酯类积累可能相对有限。
如图1F所示,总酸是2种工艺在窖池发酵阶段差异最明显的理化指标。堆积发酵末期,传统工艺和机械工艺酒醅总酸质量分数分别为(1.091±0.012)%和(1.203±0.051)%;窖池发酵末期分别升至(2.238±0.140)%和(1.571±0.063)%,较堆积发酵末期分别增加105.1%和30.6%。窖池发酵末期,传统工艺总酸含量较机械工艺高42.5%。乳酸和乙酸是酱香型白酒前2轮次酒醅中的主要酸类,其积累与乳酸菌、醋酸菌等产酸微生物的演替密切相关[18-19]。因此,传统工艺总酸的大幅增加可能与窖池阶段产酸菌的富集和产酸代谢增强有关。
以上结果表明,2种工艺酒醅的水分和总酯含量总体较为稳定,传统工艺酒醅的淀粉和还原糖含量较高,机械工艺酒醅的氨基酸态氮含量较高。窖池发酵过程中,传统工艺的总酸增幅及最终含量明显高于机械工艺,表明不同工艺形成的理化环境和微生物群落可能进一步影响2轮次酒醅产酸代谢。
2.2 传统工艺和机械工艺酱香型白酒2轮次酒醅微生物多样性
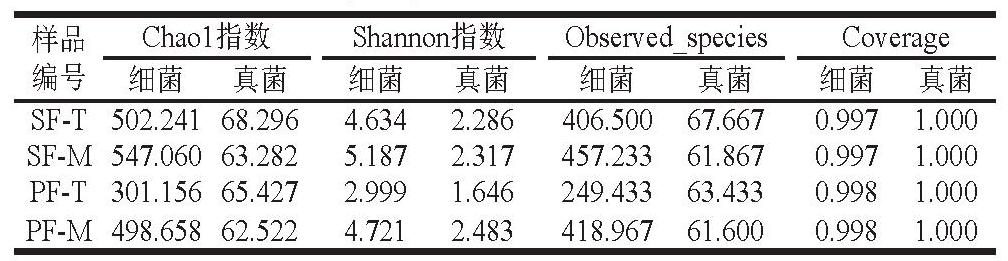
α-多样性可反映样品中微生物群落的丰富度和多样性。Chao1指数和Observed_species用于评价物种丰富度,Shannon指数用于评价群落多样性,数值越大表明丰富度或多样性越高;Coverage可反映测序覆盖程度[29-30]。由表1可知,细菌Coverage为0.997~0.998,真菌均为1.000,说明测序深度能够较好地反映样品中的微生物群落。
表1 传统与机械工艺酱香型白酒2轮次酒醅堆积、窖池发酵末期微生物群落α-多样性
Table1 α-Diversity of microbial communities in second-round fermented grains at the terminal stage of stacking and pit fermentation of sauce-flavor Baijiu by traditional and mechanical crafts
编号细菌真菌细菌真菌细菌真菌细菌真菌SF-T502.24168.2964.6342.286406.50067.6670.9971.000 PF-T301.15665.4272.9991.646249.43363.4330.9981.000样品Chao1指数Shannon指数Observed_speciesCoverage SF-M547.06063.2825.1872.317457.23361.8670.9971.000 PF-M498.65862.5224.7212.483418.96761.6000.9981.000
堆积发酵第5天,机械工艺酒醅细菌Chao1指数、Observed_species和Shannon指数分别为547.060、457.233和5.187,均高于传统工艺(502.241、406.500和4.634)。窖池发酵第30天,机械工艺酒醅Chao1指数、Observed_species和Shannon指数分别为498.658、418.967和4.721,也高于传统工艺(301.156、249.433和2.999)。机械工艺较高的细菌群落丰富度和多样性表明其未形成传统工艺中以少数菌优势化的群落结构。而传统工艺窖池阶段酸度升高易形成以Lactobacillus为优势均属的群落,从而可能增强环境筛选作用,使细菌群落趋于单一化[18,31]。
真菌方面,堆积发酵第5天,传统、机械工艺酒醅Chao1指数分别为68.296和63.282;窖池发酵第30天,其Chao1指数分别为65.427和62.522,差异较小。传统工艺酒醅Shannon指数由堆积发酵末期的2.286降至窖池发酵末期的1.646,机械工艺酒醅Shannon指数由2.317升至2.483,说明传统工艺窖池阶段真菌群落趋于少数优势菌主导,机械工艺则保持较高的群落多样性。以上结果表明,机械工艺中的细菌丰富度和多样性更高,而真菌丰富度变化较小,其差异主要体现在窖池阶段的群落均匀度上。
2.3 传统工艺和机械工艺酱香型白酒2轮次酒醅微生物群落结构
传统工艺和机械工艺酱香型白酒2轮次酒醅中共检出6个细菌门,其中相对丰度大于1%的优势菌门为变形菌门(Proteobacteria)、厚壁菌门(Firmicutes)和放线菌门(Actinobacteria),三者平均相对丰度之和超过99%,与酱香型白酒发酵体系的典型细菌组成[31-33]一致。 如图2A所示,堆积发酵末期,SF-T和SF-M均以Proteobacteria为主,其平均相对丰度分别为78.08%和85.88%;Firmicutes分别为19.00%和6.39%,Actinobacteria分别为2.20%和6.17%。进入窖池发酵后,PF-T中Firmicutes平均相对丰度升至79.13%,Proteobacteria降至17.54%;而PF-M仍以Proteobacteria占绝对优势,平均相对丰度为95.40%,Firmicutes平均相对丰度为2.33%。该结果表明,传统工艺窖池阶段发生由Proteobacteria向Firmicutes优势化的明显演替,而机械工艺始终维持以Proteobacteria为主的群落结构。这可能与传统工艺中Lactobacillus大量富集及酸度升高形成的环境筛选作用有关[18,31,34-36]。
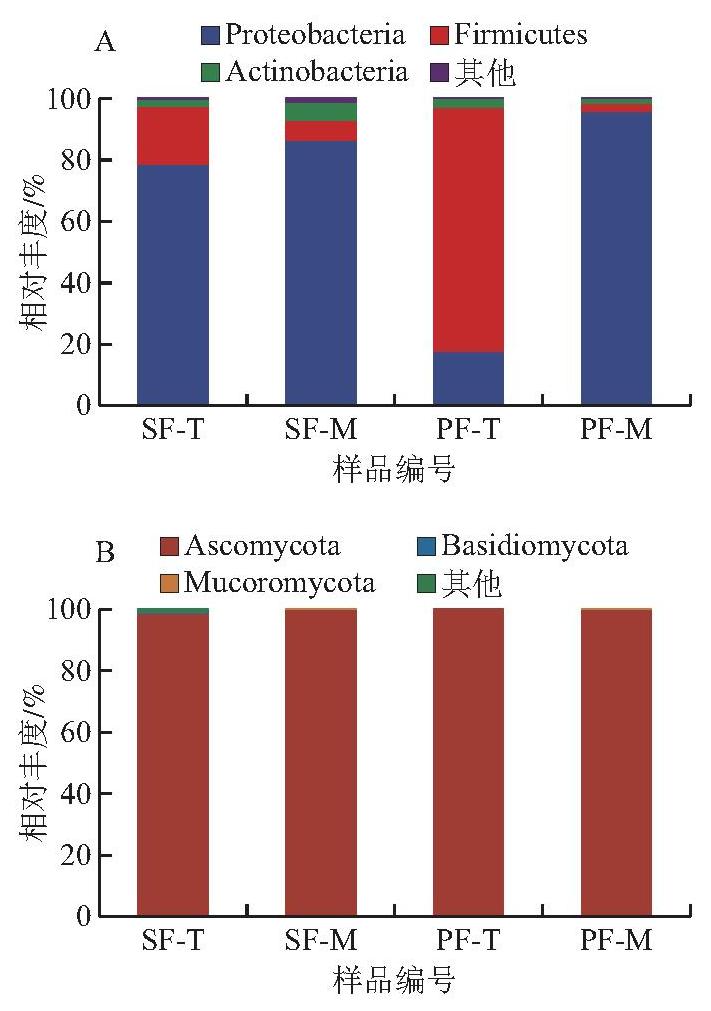
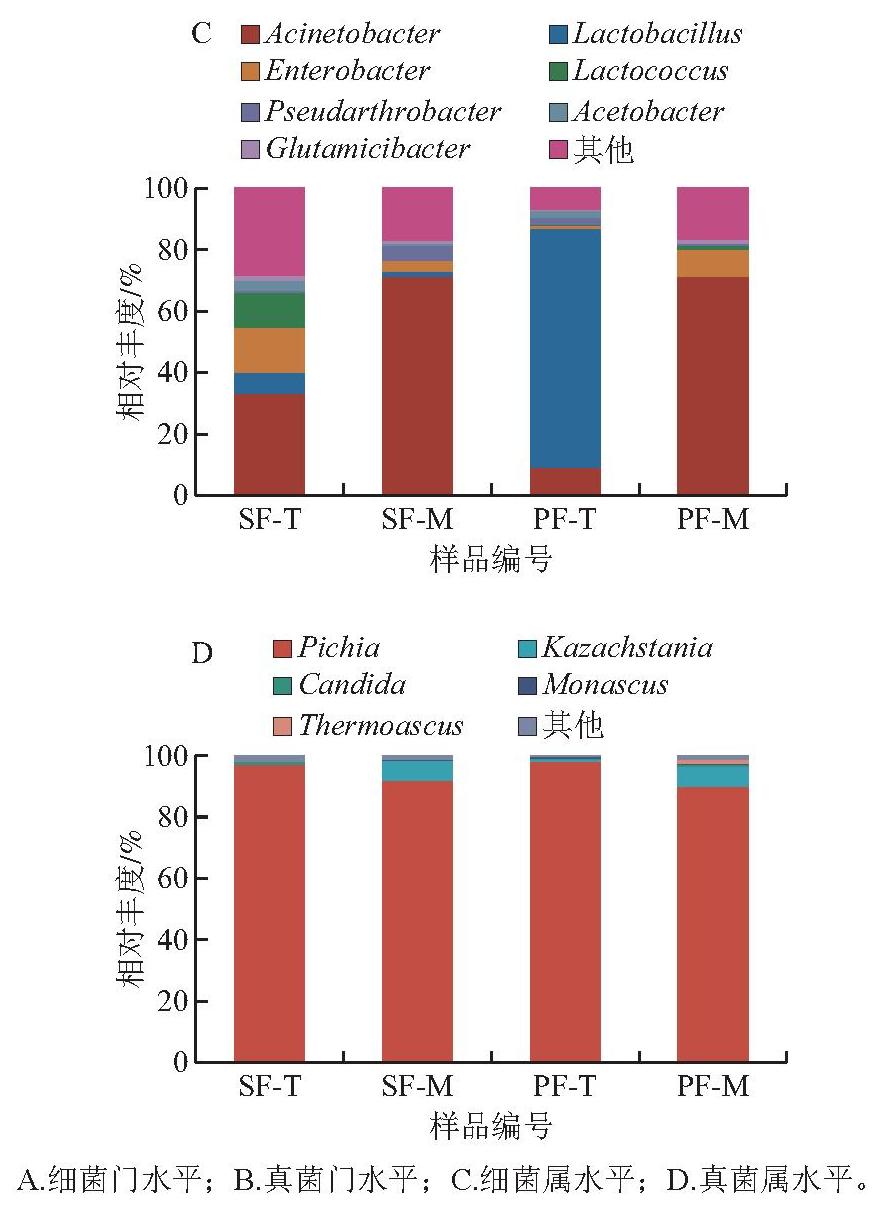
图2 传统工艺与机械工艺酱香型白酒2轮次酒醅堆积、窖池发酵末期微生物群落结构
Fig.2 Microbial community structures of second-round fermented grains collected at the terminal stage of stacking and pit fermentation of sauce-flavor Baijiu by traditional and mechanical crafts
真菌门水平共检出8个菌门,其中仅子囊菌门(Ascomycota)相对丰度大于1%。如图2B所示,Ascomycota在SF-T、SF-M、PF-T和PF-M中的平均相对丰度分别为98.37%、99.66%、99.68%和99.79%,表明2种工艺及不同发酵阶段的真菌群落在门水平上均高度集中于Ascomycota。
在传统工艺或机械工艺酒醅中共检测到271细菌属。由图2C可知,平均相对丰度大于1%的细菌属有7个,在堆积发酵第5天,传统、机械工艺酒醅中不动杆菌属(Acinetobacter)平均相对丰度较高(32.77%、71.03%)。在酱香型白酒糟醅中,Acinetobacter与正丙醇、2,3-丁二醇、醛类和酮类具有正相关性[37-38]。酱香型茅台大曲中Acinetobacter与大多数风味物质表现出较强的正相关性,尤其是2-呋喃甲醛、苯甲醛、乙酸、2-呋喃甲醇、苯乙醛、3-甲基丁醛等[39],Acinetobacter对酱香型白酒风味的产生有着重要影响。传统工艺酒醅中的肠杆菌属(Enterobacter)平均相对丰度由堆积发酵末期的14.51%降低至窖池发酵末期的0.82%,Enterobacter在机械工艺酒醅中由3.36%升至8.90%。研究表明,Enterobacter具有强有力的糖化能力,在白酒发酵过程中发挥重要作用[40-41]。在传统工艺下,乳球菌属(Lactococcus)与乳杆菌属(Lactobacillus)相对丰度明显高于机械工艺,Lactobacillus在窖池阶段成为传统工艺发酵中的最主要菌属,平均相对丰度达77.76%,该菌属在机械工艺下平均相对丰度不足0.2%。Lactobacillus是酱香型白酒发酵过程中的主要微生物 属[31,34,36],且由于Lactobacillus含有碳水化合物代谢的关键酶基因,并参与整个发酵过程[35],可能对2种工艺下微生物的代谢产生重要影响。传统工艺下的Acetobacter、假节杆菌属(Pseudarthrobacter)与谷氨酸杆菌属(Glutamicibacter)相对丰度在2个发酵阶段中也普遍高于机械工艺。
在传统工艺或机械工艺酒醅中共检测到116个真菌属。由图2D可知,平均相对丰度大于1%的真菌属有5个,在真菌群落中,Pichia占有主要地位,堆积发酵末期,传统工艺和机械工艺酒醅Pichia平均相对丰度分别为97.72%和90.83%。该酵母是酱香型白酒发酵中重要的“产香酵母”,主要贡献各种酯类、芳香醇等关键香味物质,并作为后期耐酸产香微生物参与风味塑造[27-28]。 在机械工艺中,哈萨克斯坦酵母属(Kazachstania)相对丰度较高,平均相对丰度为6.57%,远高于传统工艺(0.15%),Kazachstania是浓香型白酒酒醅微生态中的标志性酵母属之一[42],主要产异戊醇、乙酸异戊酯、糠醇、β-苯乙醇、高级脂肪酸乙酯等风味物质[43]。 Wang Bowen等[44]研究表明,Lactobacillus与Pichia的协同作用能够合成关键糖化酶,有利于呈现稳定的糖化效率。本研究中,传统工艺微生态体系由于存在较高丰度的Lactobacillus与Pichia,两类菌群协同完成体系内还原糖代谢转化,而机械工艺中富集Kazachstania可能意味着发酵环境的稳定性改变了酵母之间的生态位竞争,但其对糖化能力和风味形成的具体影响仍需进一步验证。
2.4 理化指标及优势微生物属的RDA
选取平均相对丰度大于1%的7个优势细菌属和5个优势真菌属,与水分、淀粉、还原糖、氨基酸态氮、总酯和总酸6项理化指标进行RDA。由图3可知,理化指标对细菌和真菌群落变异的第1、2轴累计解释率分别为78.2%和99.2%,表明所选理化指标能够较好地解释优势微生物群落的变化。
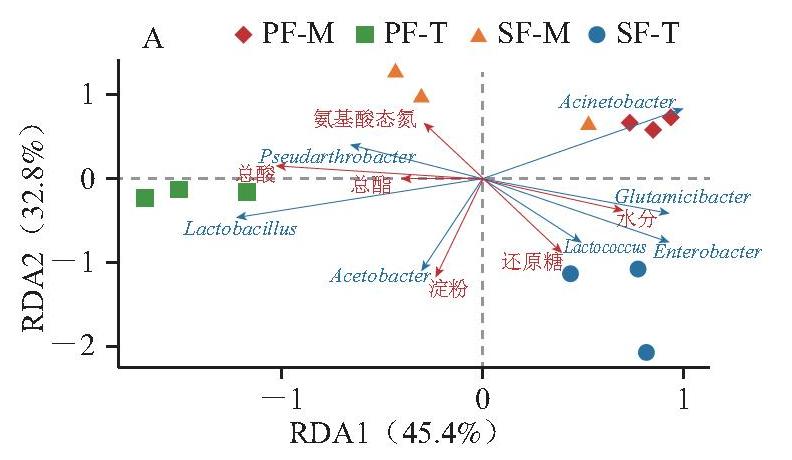
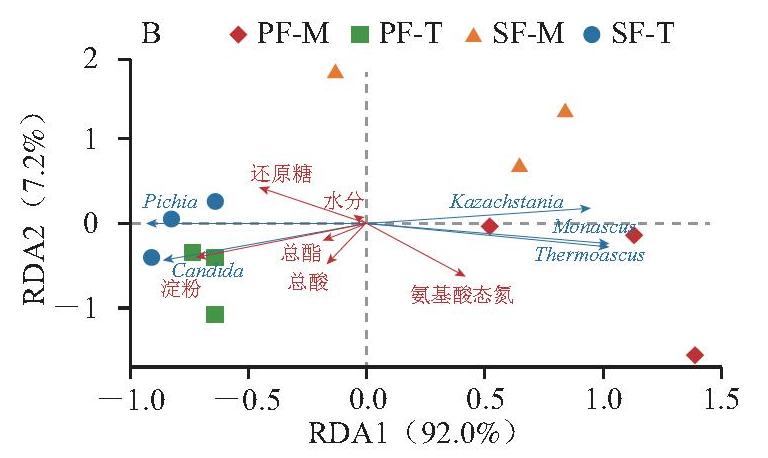
图3 酱香型白酒2轮次传统、机械工艺发酵酒醅优势细菌属(A)与优势真菌属(B)与理化指标的RDA双标图
Fig.3 RDA biplots of dominant bacterial (A), fungal (B) genera and physicochemical indicators in second-round fermented grains of sauce-flavor Baijiu by traditional and mechanical crafts
由图3A可知,机械工艺样品(SF-M与PF-M)主要分布在RDA2轴正向区域,传统工艺样品(SF-T与PF-T)则分布在RDA2轴负向区域,传统工艺堆积发酵末期样品(SF-T)与窖池发酵末期样品(PF-T)分离明显,说明不同工艺及不同发酵阶段的样品在细菌层面上有所差异。总酸、总酯与氨基酸态氮之间相互呈正相关关系,水分、还原糖与淀粉之间相互呈正相关关系,其中总酸和淀粉载荷较大,这表明总酸和淀粉对2轮次酒醅细菌群落演替影响较大。文方龄等[45]研究表明,淀粉是2轮次酒醅细菌群落的主要驱动因子之一,与本研究结果相一致。
由图3B可知,传统工艺堆积发酵末期样品(SF-T)和窖池发酵末期样品(PF-T)较为接近,机械工艺堆积发酵末期样品(SF-M)和窖池发酵末期样品(PF-M)较为分散,说明机械工艺发酵使真菌群出现更为复杂的演替情况。其中,总酸、淀粉、还原糖和总酯相互之间呈正相关关系,氨基酸态氮与总酸为正相关关系,与还原糖及淀粉为负相关关系。值得注意的是,Pichia与淀粉、还原糖、总酸和总酯均呈正相关,说明传统工艺中较高的碳源和酸酯水平与Pichia的富集密切相关;已有研究证实,糖类物质是Pichia生长代谢的重要底物[24]。
RDA结果表明,6项理化指标对细菌和真菌群落变化均具有较强解释力。细菌群落主要受酿造工艺和发酵阶段共同影响,其中总酸和淀粉的解释作用较强,是推动2轮次酒醅细菌群落演替的重要因子。真菌群落的工艺差异更为明显,机械工艺样品分布较分散,表明其群落演替更复杂。传统工艺中较高的碳源及酸酯水平有可能有利于Pichia富集。
2.5 传统工艺和机械工艺酱香型白酒2轮次酒醅差异有机酸含量
由表2可知,酒醅中乳酸含量最高,其次是丙酸、甲酸、乙酸和琥珀酸。堆积发酵末期,机械工艺酒醅中柠檬酸、酒石酸、乙酸和己酸含量分别较传统工艺降低12.1%、42.7%、14.6%和23.0%;乳酸、甲酸和丙酸则分别较传统工艺提高27.6%、23.8%和5.6%。窖池发酵末期,机械工艺酒醅中草酸、柠檬酸、酒石酸、乳酸、甲酸和乙酸含量分别较传统工艺降低36.9%、32.4%、53.3%、34.9%、18.3%和30.9%。其中,乳酸由传统工艺的2 687.62 mg/100 g降至机械工艺的1 750.43 mg/100 g,乙酸由627.10 mg/100 g降至433.37 mg/100 g,甲酸由835.64 mg/100 g降至682.96 mg/100 g。丙酸在机械工艺和传统工艺中的窖池阶段分别为1 052.39 mg/100 g和1 051.57 mg/100 g,差异较小。
表2 传统工艺和机械工艺酱香型白酒2轮次酒醅的有机酸含量
Table2 Organic acid contents in second-round fermented grains of sauce-flavor Baijiu by traditional and mechanical crafts
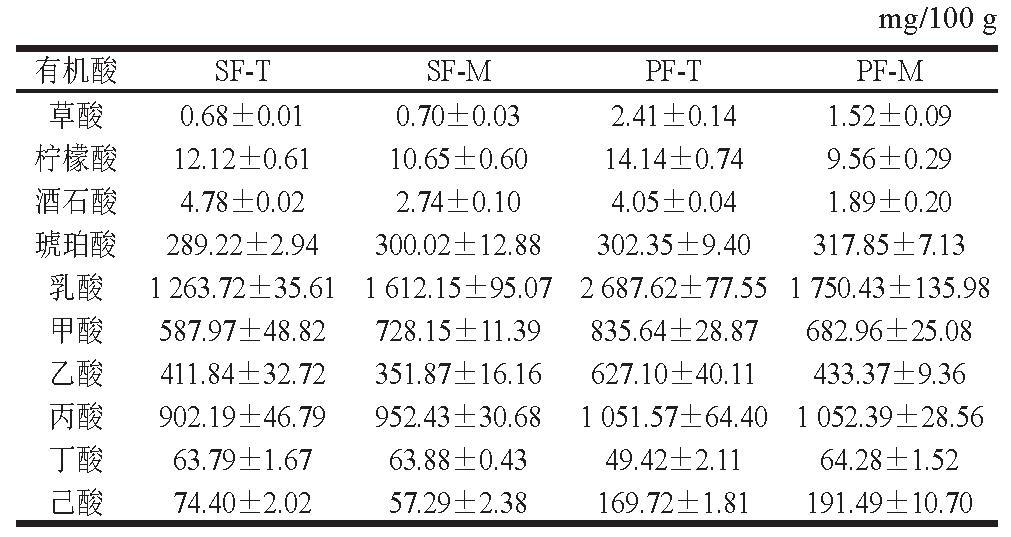
mg/100 g有机酸SF-TSF-MPF-TPF-M草酸0.68±0.010.70±0.032.41±0.141.52±0.09柠檬酸12.12±0.6110.65±0.6014.14±0.749.56±0.29酒石酸4.78±0.022.74±0.104.05±0.041.89±0.20琥珀酸289.22±2.94300.02±12.88302.35±9.40317.85±7.13乳酸1 263.72±35.611 612.15±95.072 687.62±77.551 750.43±135.98甲酸587.97±48.82728.15±11.39835.64±28.87682.96±25.08乙酸411.84±32.72351.87±16.16627.10±40.11433.37±9.36丙酸902.19±46.79952.43±30.681 051.57±64.401 052.39±28.56丁酸63.79±1.6763.88±0.4349.42±2.1164.28±1.52己酸74.40±2.0257.29±2.38169.72±1.81191.49±10.70
基于有机酸含量建立OPLS-DA模型,由图4A可知,模型自变量解释能力 为0.98,因变量解释能力
 为0.954,表明该模型具有较好的准确性和预测能力,机械和传统工艺酒醅样品在组间实现完全分离,说明不同工艺发酵酒醅中的有机酸存在明显差异。由图4B可知,经200次置换检验,模型的
 和Q2均低于原模型,且对应的P值均为0.005,表明原模型的拟合和预测能力显著优于随机分组模型,不存在过拟合现象。由图4C可知,以变量投影重要性(variable importance in projection,VIP)值>1筛选出甲酸、乙酸、乳酸与丙酸4种差异标志物。这些有机酸在区分传统工艺与机械工艺酒醅时具有较高的贡献度,也表明2种工艺产酸量存在显著差异,这与上述理化指标分析所呈现的酸类积累差异相一致。值得注意的是,丙酸虽然在不同工艺窖池发酵末期含量区别较小,但在堆积发酵末期有所差异,将其作为差异标志物是综合全发酵周期的整体代谢特征判断,而非仅依据单一发酵阶段的含量水平。
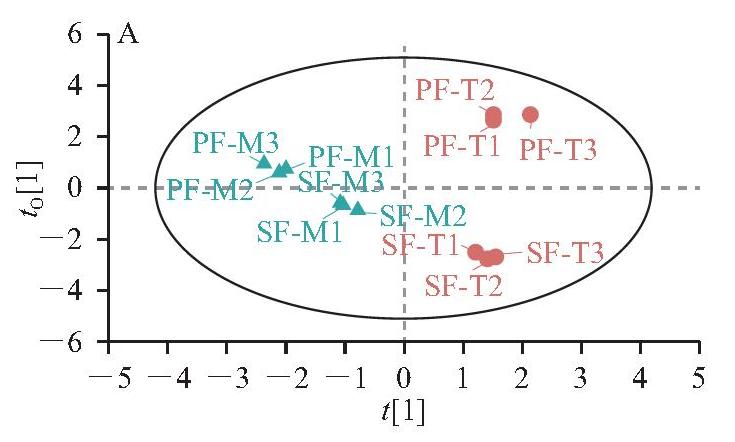
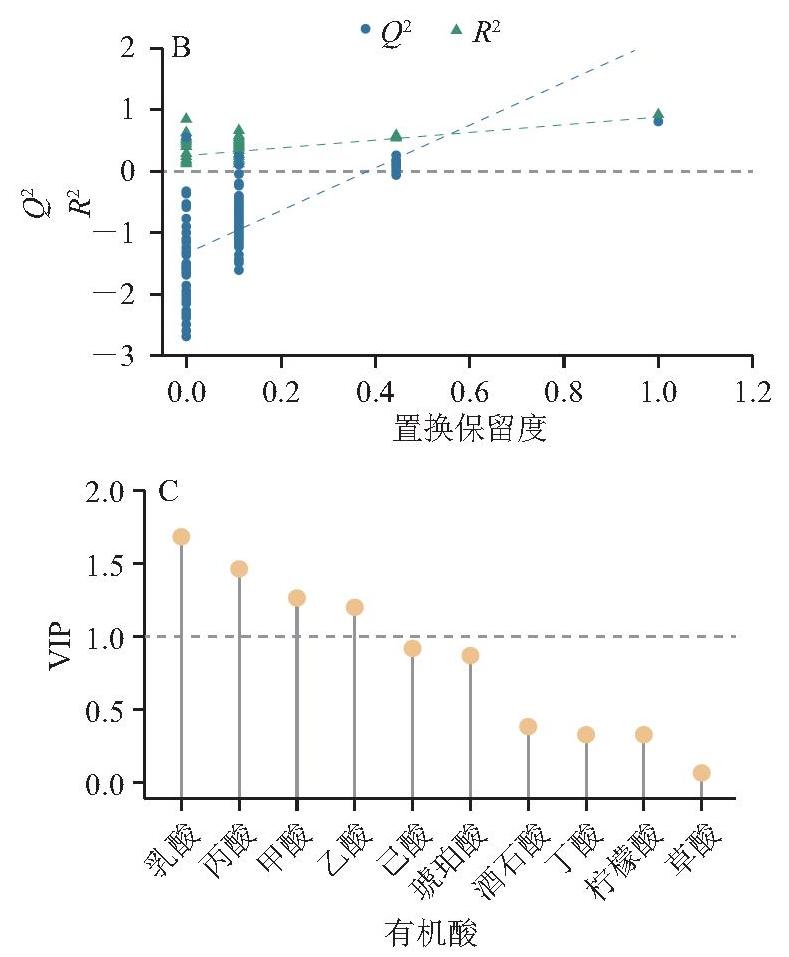
图4 传统与机械工艺酱香型白酒2轮次酒醅有机酸含量OPLS-DA 散点图(A)、200次置换检验结果(B)及VIP值(C)
Fig.4 OPLS-DA score scatter plot (A), 200 permutation test results (B) and variable importance in projection values (C) of organic acids contents in second-round fermented grains of sauc avor Baijiu by traditional and mechanical crafts
2.6 差异有机酸及优势微生物属的RDA
为探究差异有机酸与优势微生物群落之间的关系,本研究将甲酸、乙酸、乳酸和丙酸作为解释变量,与作为响应变量的平均丰度大于1%的7个优势细菌和5个真菌属进行RDA。由图5可知,差异有机酸对细菌和真菌群落变异的第1、2轴累计解释率分别达到85.5%和99.1%,表明基于有机酸构建的RDA模型可有效解释微生物群落大部分变异方差。
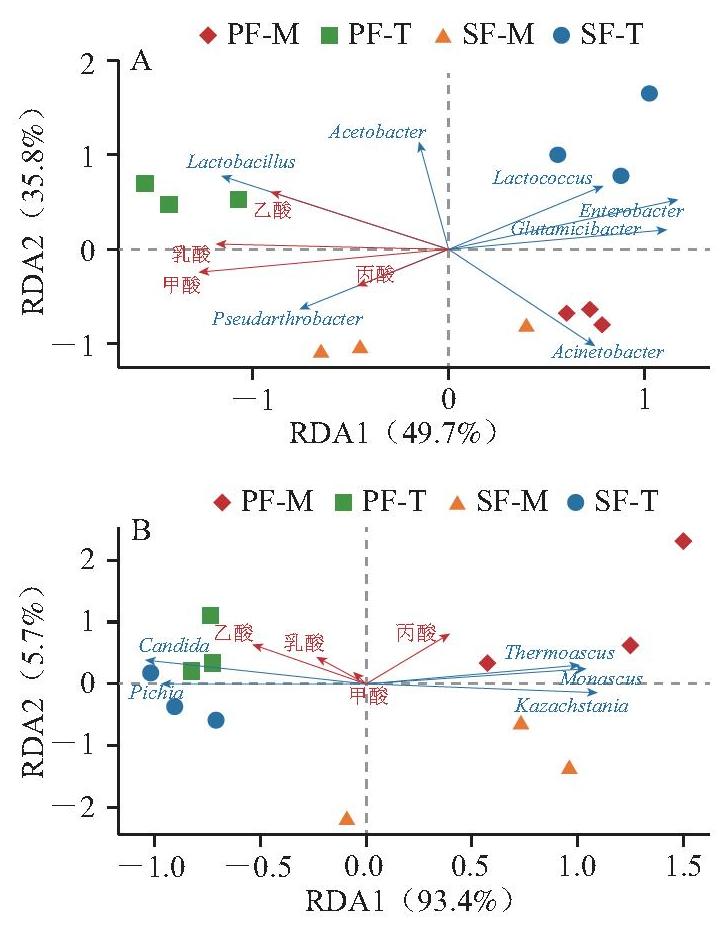
图5 酱香型白酒2轮次传统、机械工艺发酵酒醅优势细菌属(A)、真菌属(B)与差异有机酸的RDA双标图
Fig.5 RDA biplots of dominant bacterial (A), fungal (B) genera and differential organic acids in second-round fermented grains of sauce-flavor Baijiu by traditional and mechanical crafts
如图5A所示,甲酸、乙酸、乳酸和丙酸之间总体呈正相关关系。其中,乙酸与Lactobacillus和Acetobacter载荷方向较为一致,尤其与Lactobacillus几乎正向共线,说明二者与乙酸积累呈正相关;甲酸和丙酸与Pseudarthrobacter载荷方向也较为一致,表明该菌属可能与2种有机酸的形成或积累有关。乳酸与Lactobacillus也表现出较强的正相关关系。Lactococcus、Enterobacter和Glutamicibacter与4种差异有机酸载荷方向相反,呈负相关关系;Acinetobacter与甲酸、乙酸和乳酸总体呈负相关。
由图5B可知,乙酸和乳酸呈正相关,并与Candida和Pichia载荷方向一致,表明这2类酵母可能与乙酸和乳酸的代谢变化密切相关。丙酸与Thermoascus、Monascus和Kazachstania总体呈正相关;而上述菌属与乙酸和乳酸载荷方向相反,说明不同优势真菌可能参与不同有机酸的形成和转化。
RDA结果表明,4种差异有机酸与优势细菌和真菌群落之间存在明显的对应关系。细菌群落中,Lactobacillus和Acetobacter主要与乙酸和乳酸积累相关,Pseudarthrobacter与甲酸和丙酸关系较为密切;真菌群落中,Candida和Pichia与乙酸、乳酸呈正相关,而Thermoascus、Monascus和Kazachstania与丙酸关系较为密切。上述结果说明,不同酿造工艺可能通过改变优势微生物组成,进一步影响2轮次酒醅中有机酸的形成与积累。
2.7 传统工艺和机械工艺酱香型白酒2轮次酒醅差异有机酸代谢通路
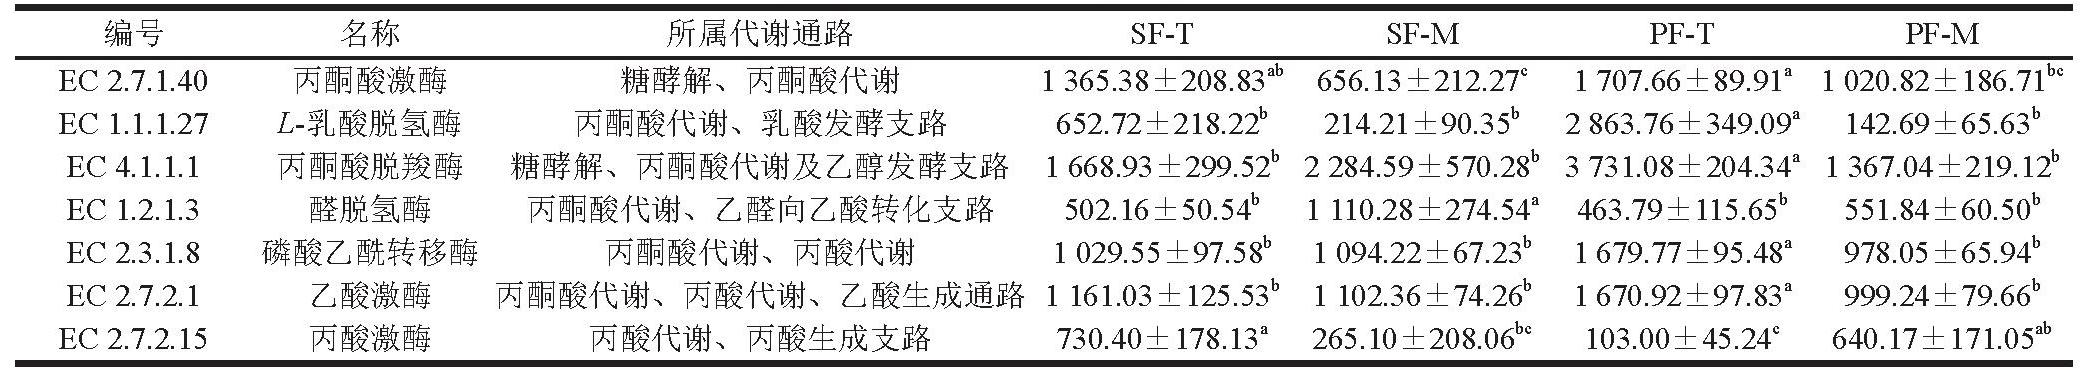
为从功能代谢层面阐明不同发酵工艺下酒醅有机酸含量差异的形成机制,本研究依托KEGG代谢通路数据库开展微生物群落功能谱预测,通过PICRUSt2工具推演菌群内关键催化酶编码基因的丰度变化,聚焦8种与酱香型白酒主体风味有机酸合成密切相关的限速酶展开解析,包括参与乙酸代谢、丙酸代谢和乳酸代谢的关键酶系(图6)。结合表3结果显示,2种工艺在这些核心代谢通路的酶基因丰度上存在显著差异,进一步论证了不同工艺所构建微生态体系的功能分化。
表3 传统与机械工艺酱香型白酒2轮次酒醅中乳酸、乙酸和丙酸代谢途径相关酶功能释义及其丰度
Table3 Functional annotations and abundance of enzymes related to lactic acid, acetic acid and propionic acid metabolic pathways in second-round fermented grains of sauce-flavor Baijiu by traditional and mechanical crafts
编号名称所属代谢通路SF-TSF-MPF-TPF-M EC 2.7.1.40丙酮酸激酶糖酵解、丙酮酸代谢1 365.38±208.83ab656.13±212.27c1 707.66±89.91a1 020.82±186.71bc EC 1.1.1.27L-乳酸脱氢酶丙酮酸代谢、乳酸发酵支路652.72±218.22b214.21±90.35b2 863.76±349.09a142.69±65.63b EC 4.1.1.1丙酮酸脱羧酶糖酵解、丙酮酸代谢及乙醇发酵支路1 668.93±299.52b2 284.59±570.28b3 731.08±204.34a1 367.04±219.12b EC 1.2.1.3醛脱氢酶丙酮酸代谢、乙醛向乙酸转化支路502.16±50.54b1 110.28±274.54a463.79±115.65b551.84±60.50b EC 2.3.1.8磷酸乙酰转移酶丙酮酸代谢、丙酸代谢1 029.55±97.58b1 094.22±67.23b1 679.77±95.48a978.05±65.94b EC 2.7.2.1乙酸激酶丙酮酸代谢、丙酸代谢、乙酸生成通路1 161.03±125.53b1 102.36±74.26b1 670.92±97.83a999.24±79.66b EC 2.7.2.15丙酸激酶丙酸代谢、丙酸生成支路730.40±178.13a265.10±208.06bc103.00±45.24c640.17±171.05ab
注:同行小写字母不同表示组间差异显著(P<0.05)。
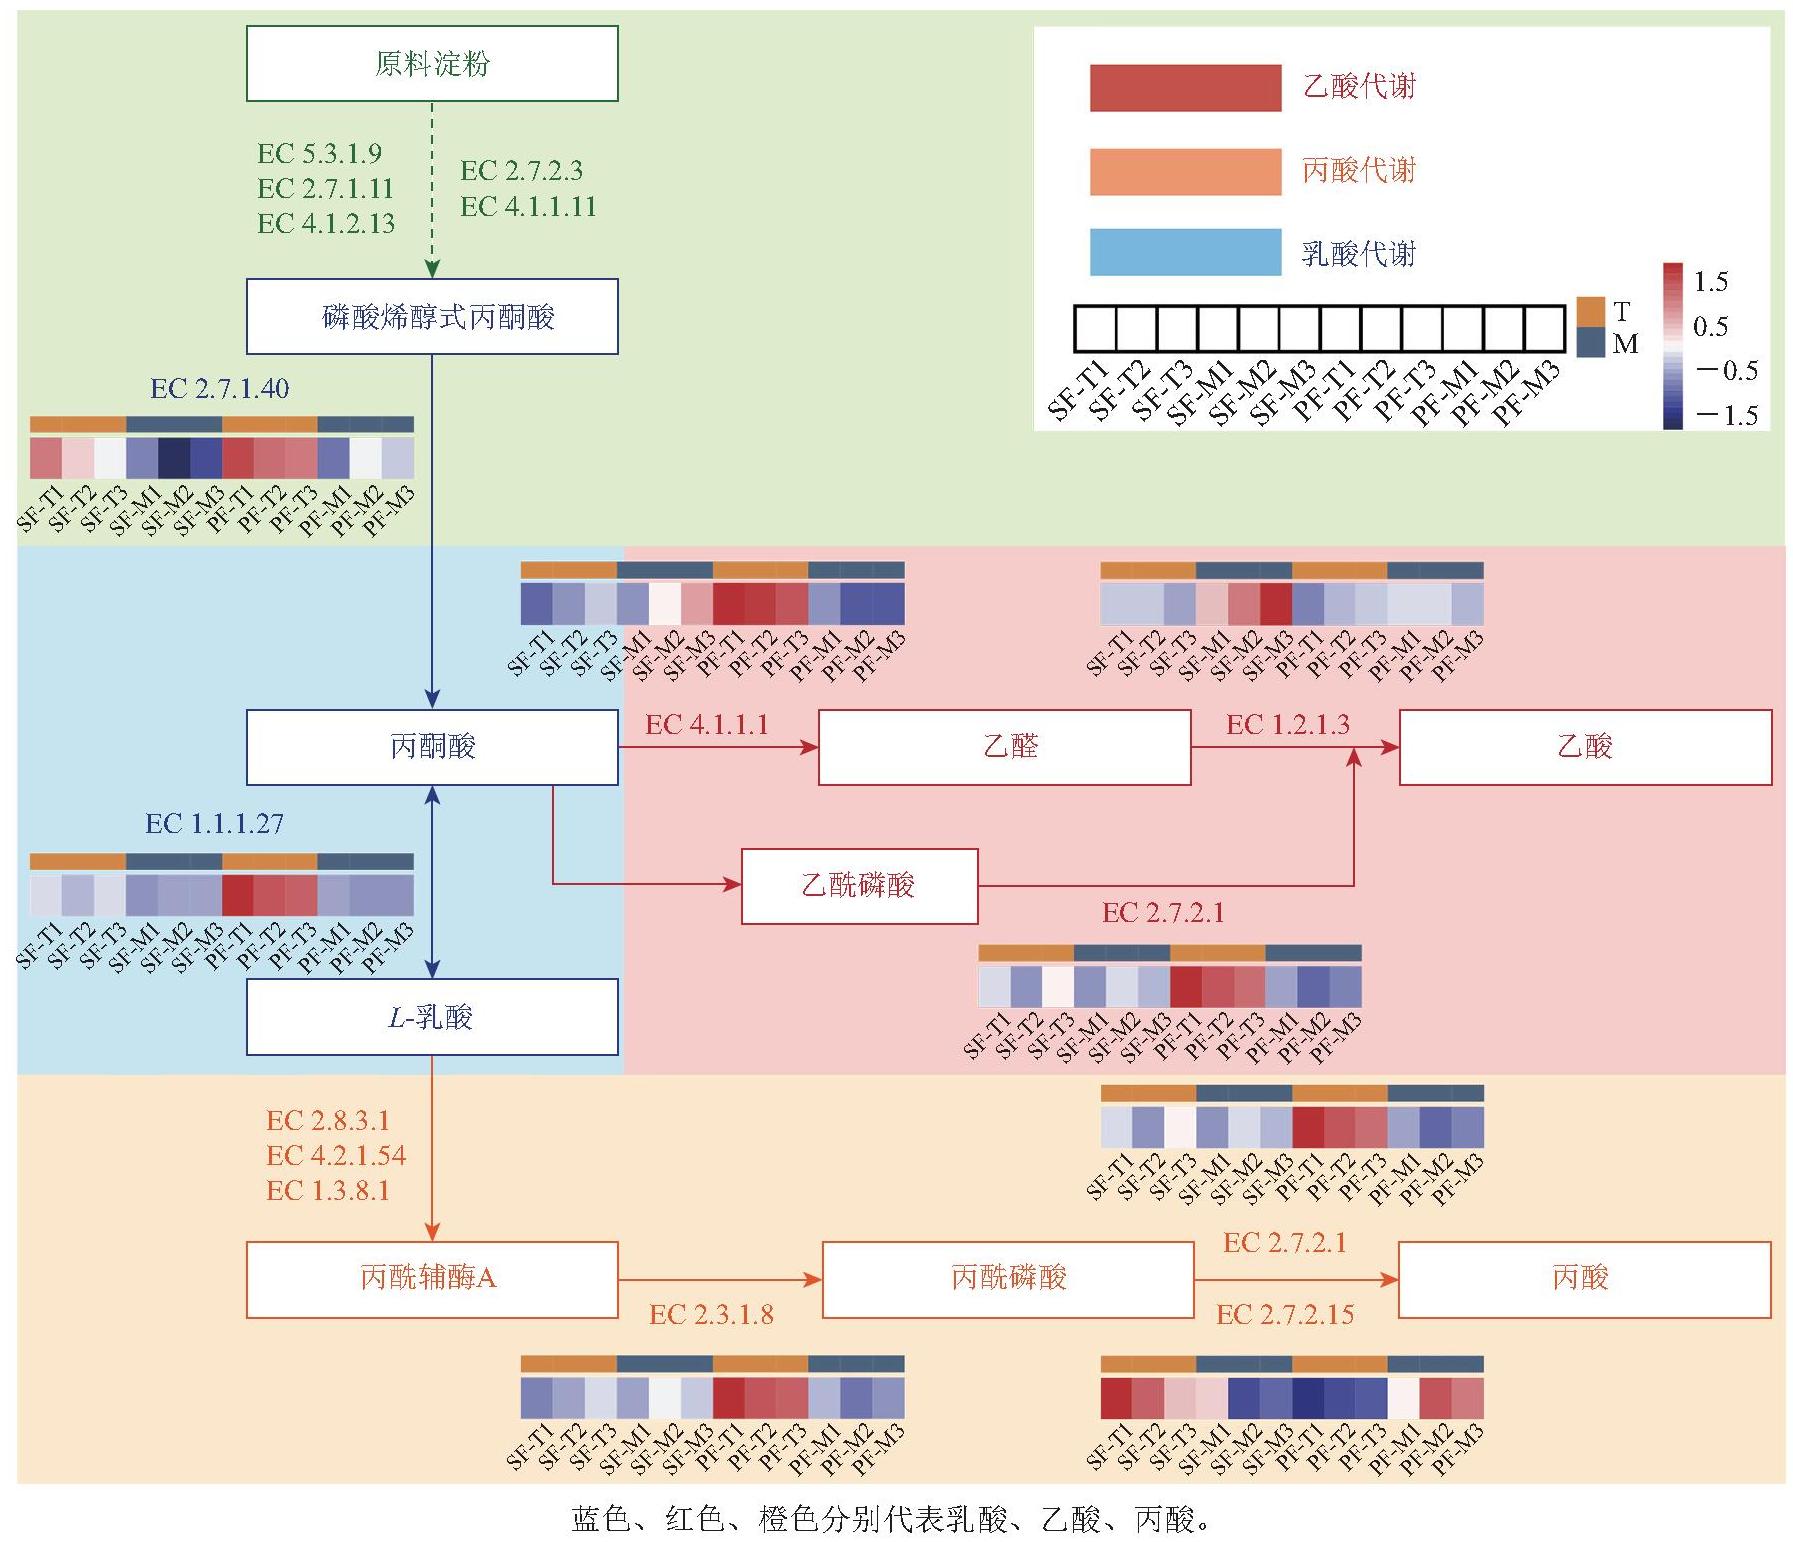
图6 传统与机械工艺酱香型白酒2轮次酒醅富集乳酸、乙酸和丙酸代谢途径示意图
Fig.6 Schematic diagram illustrating lactic acid, acetic acid and propionic acid metabolic pathways enriched in second-round fermented grains of sauce-flavor Baijiu by traditional and mechanical crafts
白酒酿造过程中,原料淀粉经EC 5.3.1.9(葡萄糖- 6-磷酸异构酶)、EC 2.7.1.11(磷酸果糖激酶1)、 EC 4.1.2.13(醛缩酶)等酶逐步降解生成磷酸烯醇式丙酮酸,最终形成丙酮酸。其中,磷酸果糖激酶基因在传统工艺中显著富集,表明传统发酵体系的糖代谢效率更高,为后续酸类物质的生成提供了充足碳源。 EC 2.7.1.40(丙酮酸激酶)催化糖酵解过程中的最后一步反应,生成丙酮酸,而丙酮酸经EC 1.1.1.27(L-乳酸脱氢酶)直接还原为L-乳酸。传统工艺中富集的丙酮酸激酶和L-乳酸脱氢酶反映出其微生物群落较强的乳酸生成能力,传统工艺在乳酸代谢路径上表现出明显优势。
丙酮酸在EC 4.1.1.1(丙酮酸脱羧酶)作用下可转化为乙醛,随后经EC 1.2.1.3(醛脱氢酶)氧化为乙酸,传统工艺的脱羧酶基因富集程度更高,使其能够提供更多乙醛作为前体物质用于乙酸生成;与此同时,EC 2.7.2.1(乙酸激酶,可催化乙酰磷酸→乙酸与丙酰磷酸→丙酸反应)在传统工艺窖池阶段富集程度更高,这2个代谢特征可能导致其乙酸含量更高。与上述传统工艺中乳酸、乙酸积累速率快、程度高的规律相一致。
丙酸合成则需L-乳酸首先经EC 2.8.3.1、EC 4.2.1.54、 EC 1.3.8.1等酶催化逐步转化为丙酰辅酶A,再经EC 2.3.1.8 (磷酸乙酰转移酶)在丙酸通路中催化丙酰辅酶A转化为丙酰磷酸,最终在EC 2.7.2.1/2.7.2.15催化下形成丙酸。在这一通路中,传统工艺不仅在前体乳酸含量上占优,相关酶基因的丰度也显著高于机械工艺,表明其在丙酸代谢路径中具有更强的功能潜力。
多项研究表明,在固态发酵体系中有机酸的生成依赖于碳代谢与丙酮酸代谢等关键KEGG通路,其中乳酸和乙酸是主要产物,Lactobacillus表达的乳酸脱氢酶与乳酸累积密切相关[46]。宏基因组与代谢组研究指出,碳代谢、糖代谢和丙酮酸通路是酸类生成的核心途径[46-47]。 Lactobacillus、Acetobacter和Pichia在碳代谢和丙酮酸代谢路径中展示出高丰度与活性,影响酸类物质的 形成[47-49]。PICRUSt2功能预测与KEGG代谢通路分析共同表明,传统工艺中Lactobacillus高度富集,并伴随乳酸、乙酸和丙酸代谢相关关键酶基因丰度升高,具有更强的产酸潜力;机械工艺中Lactobacillus优势化不足,乳酸、乙酸和丙酸代谢相关关键酶基因丰度较低,是其主要酸类物质积累较少的重要原因。由此可见,机械工艺降低2轮次酸类积累不仅与优势菌群变化有关,也与群落产酸功能代谢潜能减弱有关。这些结果从功能基因层面解释了2种工艺有机酸生成差异,并为酱香型白酒有机酸调控和功能菌群优化提供了依据。
3 结 论
本研究系统对比了传统与机械工艺酱香型白酒2轮次酒醅发酵中的微生态差异。结果表明,机械工艺酒醅氨基酸态氮含量更高,能够维持较高的细菌多样性。传统工艺窖池发酵阶段高度富集Lactobacillus及Pichia等菌群;而机械工艺窖池发酵阶段中Lactobacillus相对丰度不足0.2%,最终导致其窖池发酵末期乳酸、乙酸和甲酸含量较传统工艺分别显著降低34.9%、30.9%和18.3%。基于OPLS-DA与VIP值筛选的差异有机酸及其功能预测进一步证实,机械工艺酒醅中与酸类代谢相关的EC 1.1.1.27(L-乳酸脱氢酶)和EC 4.1.1.1(丙酮酸脱羧酶)等6个关键酶丰度普遍显著降低。
综上所述,理化参数差异重塑了微生物群落结构,并从功能层面削弱了体系的产酸代谢潜能,这是机械工艺降低酸类积累的核心机制。后续可围绕入窖酸度管理和功能菌群强化开展优化,并以Lactobacillus、Pichia及乳酸、乙酸代谢相关酶系作为重点调控对象。本研究可为酱香型白酒2轮次发酵有机酸调控和功能菌群优化提供理论依据。
[1] Wang Diqiang, Chen Liangqiang, Yang Fan, et al. Yeasts and their importance to the flavour of traditional Chinese liquor: a review:the importance of yeasts to Chinese liquor flavour[J]. Journal of the Institute of Brewing, 2019, 125(2): 214-221. DOI:10.1002/jib.552.
[2] Gan Shuheng, Yang Fan, Sahu S K, et al. Deciphering the composition and functional profile of the microbial communities in Chinese Moutai liquor starters[J]. Frontiers in Microbiology, 2019, 10: 1540.DOI:10.3389/fmicb.2019.01540.
[3] Dai Yijie, Tian Zhiqiang, Meng Wangni, et al. Microbial diversity and physicochemical characteristics of the Maotai-flavored liquor fermentation process[J]. Journal of Nanoscience and Nanotechnology, 2020, 20(7): 4097-4109. DOI:10.1166/jnn.2020.17522.
[4] Wang Mingyao, Yang Jiangang, Zhao Qingsong, et al. Research progress on flavor compounds and microorganisms of Maotai flavor Baijiu[J]. Journal of Food Science, 2019, 84(1): 6-18. DOI:10.1111/1750-3841.14409.
[5] 朱安然, 汪地强, 胡建锋, 等. 酱香型白酒一轮次糟醅微生物群落结构及溯源分析[J]. 食品科学, 2025, 46(4): 117-125. DOI:10.7506/spkx1002-6630-20240625-183.
[6] 符长彪, 明红梅, 张宿义, 等. 机械化与传统酿造方式下浓香型白酒酿造环境微生物群落结构对比分析[J]. 食品与发酵工业, 2023, 49(4): 145-153. DOI:10.13995/j.cnki.11-1802/ts.031691.
[7] 任婷婷, 晏培, 山其木格, 等. 控温控湿高温大曲在制酒生产过程中的应用[J]. 食品科学, 2025, 46(7): 151-161. DOI:10.7506/spkx1002-6630-20240809-080.
[8] 于子涵, 李清亮, 卢延想, 等. 白酒自动化、数字化酿造工艺研究进展[J]. 中国酿造, 2025, 44(11): 7-14. DOI:10.11882/j.issn.0254-5071.2025.11.002.
[9] 刘选成, 张东跃, 赵德义, 等. 数字化酿造工艺管理系统在浓香型白酒机械化、自动化和智能化酿造生产中的应用[J]. 酿酒科技,2018(11): 70-74; 79. DOI:10.13746/j.njkj.2018245.
[10] 王欢, 席德州, 黄永光, 等. 酱香型白酒机械化酿造不同轮次堆积发酵细菌菌群结构多样性分析[J]. 食品科学, 2020, 41(2): 188-195.DOI:10.7506/spkx1002-6630-20181218-202.
[11] 张瀚之, 席德州, 王欢, 等. 酱香型白酒机械化酿造不同轮次堆积发酵酒醅真菌群落结构多样性研究[J]. 中国酿造, 2021, 40(12): 64-69.DOI:10.11882/j.issn.0254-5071.2021.12.012.
[12] 张健, 李波, 程平言, 等. 酱香型白酒制酒机械化生产试验的研究[J]. 中国酿造, 2018, 37(12): 148-153. DOI:10.11882/j.issn.0254-5071.2018.12.029.
[13] 张春林, 杨亮, 李喆, 等. 酱香型白酒二轮次堆积酒醅微生物群落与理化指标相关性研究[J]. 中国酿造, 2021, 40(11): 31-36.DOI:10.11882/j.issn.0254-5071.2021.11.006.
[14] 黄蕴利, 黄永光, 胡建峰, 等. 酱香型白酒第二轮次酒发酵过程微生物多样性研究[J]. 中国酿造, 2017, 36(9): 30-35. DOI:10.11882/j.issn.0254-5071.2017.09.007.
[15] Chen Xi, Du Binghao, Liu Jianing, et al. Exploring the significance of the 2nd and 4th round fermentations in the brewing process of sauceflavor Baijiu[J]. Food Bioscience, 2024, 59: 104114. DOI:10.1016/j.fbio.2024.104114.
[16] 余松柏, 吴奇霄, 黄张君, 等. 基于HPLC结合多元统计方法分析不同种类酒中有机酸的差异[J]. 中国酿造, 2023, 42(2): 46-52. DOI:10.11882/j.issn.0254-5071.2023.02.008.
[17] Wu Yashuai, Hou Yaxin, Chen Hao, et al. K“ey factor” for Baijiu quality: research progress on acid substances in Baijiu[J]. Foods, 2022,11(19): 2959. DOI:10.3390/foods11192959.
[18] 万旗钰, 程玉鑫, 黄永光, 等. 酱酒1、2轮次窖池不同醅层微生态结构与酸性化合物组成解析及其相关性预测[J]. 食品科学, 2024,45(4): 88-95. DOI:10.7506/spkx1002-6630-20230613-099.
[19] 黄廷财, 柴丽娟, 时伟, 等. 酱香型白酒第2、3轮次堆积发酵有机酸代谢规律与菌群结构及其相关性解析[J]. 食品科学, 2024, 45(18):106-115. DOI:10.7506/spkx1002-6630-20231215-130.
[20] 王新叶, 李芳香, 张依香, 等. 乳酸降解菌在白酒酿造中的研究进展[J]. 中国酿造, 2021, 40(6): 7-10. DOI:10.11882/j.issn.0254-5071.2021.06.002.
[21] Shi Gailing, Fang Chao, Xing Shuang, et al. Heterogenetic mechanism in high-temperature Daqu fermentation by traditional craft and mechanical craft: from microbial assembly patterns to metabolism phenotypes[J]. Food Research International, 2024, 187: 114327.DOI:10.1016/j.foodres.2024.114327.
[22] Mu Yu, Huang Jun, Zhou Rongqing, et al. Comprehensive analysis for the bioturbation effect of space mutation and biofortification on strongflavor Daqu by high-throughput sequencing, volatile analysis and metabolomics[J]. Food Chemistry, 2023, 403: 134440. DOI:10.1016/j.foodchem.2022.134440.
[23] 李潮云, 卢君, 冯海燕, 等. 酱香型白酒二轮次堆积酒醅酵母菌数量与理化指标变化分析[J]. 中国酿造, 2024, 43(2): 48-52.DOI:10.11882/j.issn.0254-5071.2024.02.008.
[24] Liu Chongchong, Feng Shengbao, Wu Qun, et al. Raw material regulates flavor formation via driving microbiota in Chinese liquor fermentation[J]. Frontiers in Microbiology, 2019, 10: 1520.DOI:10.3389/fmicb.2019.01520.
[25] Wang Bowen, Wu Qun, Xu Yan, et al. Multiple sugars promote microbial interactions in Chinese Baijiu fermentation[J]. LWT-Food Science and Technology, 2021, 138: 110631. DOI:10.1016/j.lwt.2020.110631.
[26] Wang Li. Research trends in Jiang-flavor Baijiu fermentation: from fermentation microecology to environmental ecology[J]. Journal of Food Science, 2022, 87(4): 1362-1374. DOI:10.1111/1750-3841.16092.
[27] Li Weiwei, Zhang Hui, Wang Runnan, et al. Temporal profile of the microbial community and volatile compounds in the third-round fermentation of sauce-flavor Baijiu in the Beijing Region[J]. Foods,2024, 13(5): 670. DOI:10.3390/foods13050670.
[28] Lu Yuhan, Zhang Chengnan, Zhao He, et al. Effect of environmental microorganisms on fermentation microbial community of sauce-flavor Baijiu[J]. Foods, 2023, 12(1): 10. DOI:10.3390/foods12010010.
[29] Gihring T M, Green S J, Schadt C W. Massively parallel rRNA gene sequencing exacerbates the potential for biased community diversity comparisons due to variable library sizes[J]. Environmental Microbiology, 2012, 14(2): 285-290. DOI:10.1111/j.1462-2920.2011.02550.x.
[30] 康稀, 张正杰, 邓波, 等. 机械与手工酿造酱香型白酒3轮次堆积发酵酒醅微生物群落及有机酸差异分析[J]. 中国酿造, 2026, 45(5):111-119. DOI:10.11882/j.issn.0254-5071.2026.05.014.
[31] Wang Huan, Huang Yongguang, Huang Yunli. Microbiome diversity and evolution in stacking fermentation during different rounds of Jiang-flavoured Baijiu brewing[J]. LWT-Food Science and Technology,2021, 143: 111119. DOI:10.1016/j.lwt.2021.111119.
[32] Zhu Qi, Chen Liangqiang, Peng Zheng, et al. The differences in carbohydrate utilization ability between six rounds of sauceflavor Daqu[J]. Food Research International, 2023, 163: 112184.DOI:10.1016/j.foodres.2022.112184.
[33] Jiang Qianer, Wu Xianyu, Xu Youqiang, et al. Microbial composition and dynamic succession during the Daqu production process of Northern Jiang-flavored liquor in China[J]. 3 Biotech, 2021, 11(5):224. DOI:10.1007/s13205-021-02779-8.
[34] Wang Li, Liu Yanfeng, Yang Fan, et al. Microbiome analysis and random forest algorithm-aided identification of the diacetyl-producing microorganisms in the stacking fermentation stage of Maotai-flavor liquor production[J]. Food Biotechnology, 2019, 33(4): 338-352. DOI:10.1080/08905436.2019.1673770.
[35] Huang Xiaoning, Fan Yi, Lu Ting, et al. Composition and metabolic functions of the microbiome in fermented grain during lightflavor Baijiu fermentation[J]. Microorganisms, 2020, 8(9): 1281.DOI:10.3390/microorganisms8091281.
[36] Xu Youqiang, Wu Mengqin, Niu Jialiang, et al. Characteristics and correlation of the microbial communities and flavor compounds during the first three rounds of fermentation in Chinese sauce-flavor Baijiu[J]. Foods, 2023, 12(1): 207. DOI:10.3390/foods12010207.
[37] Shen Shiming, Liu Jinlong, Luo Ruiqi, et al. Analysis of the influence of microbial community structure on flavor composition of Jiang-flavor liquor in different batches of pre-pit fermented grains[J]. Fermentation, 2022, 8(12): 671. DOI:10.3390/fermentation8120671.
[38] Liu Yanbo, Sun Mengxiao, Hou Pei, et al. Analysis of microbial community structure and volatile compounds in pit mud used for manufacturing Taorong-type Baijiu based on high-throughput sequencing[J]. Scientific Reports, 2022, 12: 7347. DOI:10.1038/s41598-022-10412-8.
[39] Zhu Qi, Chen Liangqiang, Peng Zheng, et al. Analysis of environmental driving factors on core functional community during Daqu fermentation[J]. Food Research International, 2022, 157: 111286. DOI:10.1016/j.foodres.2022.111286.
[40] Zhao Wenhong, Liang Zhen, Qian Min, et al. Evolution of microbial communities during fermentation of Chi-flavor type Baijiu as determined by high-throughput sequencing[J]. LWT-Food Science and Technology, 2022, 170: 114102. DOI:10.1016/j.lwt.2022.114102.
[41] Kang Jiamu, Zheng Xiaowei, Yang Xin, et al. Contrasting summer versus winter dynamic microbial communities and their environmental driving factors in the solid-state saccharification process of Fuyuflavor Baijiu[J]. Food Research International, 2022, 154: 111008.DOI:10.1016/j.foodres.2022.111008.
[42] Yuan Shukun, Du Hai, Zhao Dong, et al. Stochastic processes drive the assembly and metabolite profiles of keystone taxa during Chinese strong-flavor Baijiu fermentation[J]. Microbiology Spectrum, 2023,11(2): e05103-22. DOI:10.1128/spectrum.05103-22.
[43] 游玲, 周荣清, 谭壹, 等. Kazachstania属酵母在浓香型白酒糟醅中的分布特征及发酵功能[J]. 生物技术通报, 2021, 37(6): 108-116.DOI:10.13560/j.cnki.biotech.bull.1985.2020-1159.
[44] Wang Bowen, Wu Qun, Xu Yan, et al. Specific volumetric weightdriven shift in microbiota compositions with saccharifying activity change in starter for Chinese Baijiu fermentation[J]. Frontiers in Microbiology, 2018, 9: 2349. DOI:10.3389/fmicb.2018.02349.
[45] 文方龄, 赵毓, 李生锋, 等. 酱香型白酒第2–4轮次发酵中微生物群落演替的理化驱动机制[J]. 食品科学, 2026, 47(12): 141-152.DOI:10.7506/spkx1002-6630-20251117-125.
[46] Yang Lingling, Yan Yufeng, Shen Jin, et al. Metagenomic insights into microbial community succession and its functional changes during the stage of acetic acid fermentation of Shanxi aged vinegar[J]. BMC Microbiology, 2025, 25(1): 374. DOI:10.1186/s12866-025-04053-w.
[47] Wu Yanfang, Xia Menglei, Zhao Nan, et al. Metabolic profile of main organic acids and its regulatory mechanism in solid-state fermentation of Chinese cereal vinegar[J]. Food Research International, 2021, 145:110400. DOI:10.1016/j.foodres.2021.110400.
[48] Xia Menglei, Zhang Xiaofeng, Xiao Yun, et al. Interaction of acetic acid bacteria and lactic acid bacteria in multispecies solid-state fermentation of traditional Chinese cereal vinegar[J]. Frontiers in Microbiology, 2022, 13: 964855. DOI:10.3389/fmicb.2022.964855.
[49] Song Zhewei, Du Hai, Zhang Yan, et al. Unraveling core functional microbiota in traditional solid-state fermentation by high-throughput amplicons and meta transcriptomics sequencing[J]. Frontiers in Microbiology, 2017, 8: 1294. DOI:10.3389/fmicb.2017.01294.