浓香型白酒作为我国12大香型蒸馏酒(浓香、酱香、清香、凤香、董香、豉香、米香、芝麻香、老白干、兼香、特香、馥郁香)之一,以“窖香浓郁、绵甜醇厚、香味协调、回味悠长”为典型风格,在白酒市场中占据主导地位,市场份额超70%[1-2]。其独特的风味并非来源于单一成分,而是发酵过程中产生的数百种微量化合物(酯类、酸类、醇类、醛类、酮类以及一些活性短肽等,约占白酒含量2%)协同作用的结果。在这数百种微量化合物中,4大酯(己酸乙酯、丁酸乙酯、乙酸乙酯、乳酸乙酯)的含量和比例对浓香型白酒的最终品质影响最大。其中,己酸乙酯的含量占比最高,约62%,乳酸乙酯的含量占比最少,约12%[3-4]。作为浓香型白酒中的主体香味物质,这些风味物质通过复杂的代谢网络相互作用,共同塑造浓香型白酒复杂的感官体验。这种独特感官特征的形成,本质上根植于浓香型白酒开放、动态、多菌群协同的固态发酵体系。因此,系统解析主体风味物质的生物合成途径、调控机制与菌群互作规律,不仅是当前亟需解决的核心问题,更是浓香型白酒品质精准提升、工艺智能化优化的关键。浓香型白酒酿造依托开放式、多菌种协同固态发酵体系,群落结构高度复杂,涵盖细菌、酵母、霉菌、古菌等多类微生物,共同构成动态代谢网络[1,5]。依据代谢特征差异,整个发酵过程可划分为2个关键阶段:发酵前期以乙醇合成为主,微生物代谢生成包括水、醇、酸、酯等为主的各种成分的液态混合物“黄水”,为后期风味物质的形成奠定基础;发酵后期以风味富集为核心,厌氧菌如己酸菌等由窖泥迁移至酒醅-黄水固液混合物体系中进行厌氧代谢,驱动己酸、己酸乙酯等主体风味物质大量生成和积累[6]。发酵体系内微生物广泛分布于大曲、糟醅及窖泥等微生态环境中,通过复杂的代谢互作与物质交换,将高粱、大米、糯米等原料中的淀粉、蛋白质、脂类等大分子物质逐级降解代谢,转化为浓香型白酒中多样化的风味物质[7-9]。
受制于传统研究手段的局限性,长期以来难以系统阐明固态发酵过程中群落动态演替、代谢通路调控与风味物质形成之间的内在关联。近年来,随着高通量测序、多组学联用与合成生物学技术的快速发展,风味物质生物合成机制与微生物调控机理得到逐步解析。本文以代谢通路调控与多组学技术应用为切入点,系统综述浓香型白酒主体风味物质的生物合成途径、功能微生物代谢特征及菌群互作机制,旨在为风味精准调控、工艺优化升级与智能化酿造提供理论依据与创新思路。
1 浓香型白酒主体风味物质的代谢通路
1.1 己酸的合成代谢
己酸乙酯是浓香型白酒的主体香成分,具有典型的菠萝香味,其含量是衡量浓香型白酒质量等级的重要理化指标。己酸(C6)作为己酸乙酯生物合成的前体,其合成通量将直接决定主体香强度,整个生物合成过程可划分为底物积累代谢期与己酸合成2个阶段。发酵初期,葡萄糖、乙醇、乙酸、丁酸等可用于己酸合成代谢的底物,并随着黄水聚集,为从窖泥迁移至黄水的厌氧己酸菌进行己酸合成代谢创造理想环境[6]。随后,己酸菌(Caproiciproducens、Clostridium、Caproicibacterium等)利用逆β-氧化(reverse β-oxidation,RBO)及脂肪酸生物合成(fatty acid biosynthesis,FAB)途径实现己酸的生物合成[10-13]。
在RBO途径中,乙醇和乳酸作为主要电子供体,分别在乙醇脱氢酶和乳酸脱氢酶作用下形成中间代谢物乙酰辅酶A,然后与电子受体短链脂肪酸(如丁酸等)结合,增加2个碳原子,完成一次RBO链延长反应。该过程包括乙酰辅酶A缩合、还原、脱水及再次还原等连续反应循环,最终生成己酰辅酶A并转化为己酸[14-15]。其具体代谢通路如下:首先,电子供体(如乙醇或乳酸)被氧化生成乙酰辅酶A。乙酰辅酶A在硫解酶(EC 2.3.1.9)作用下自缩合生成乙酰乙酰辅酶A;随后,酮酰辅酶A还原酶(EC 1.1.1.36)利用还原型辅酶I将其还原为3-羟丁酰辅酶A;接着,羟基酰辅酶A脱水酶(EC 4.2.1.17)脱去一分子水生成2-丁烯酰辅酶A;最后,烯酰辅酶A还原酶(EC 1.3.1.44)将其还原为丁酰辅酶A。完成一次循环后,碳链延长2个碳原子[15]。丁酰辅酶A可以继续与乙酰辅酶A结合,重复上述循环,生成己酰辅酶A,最终在硫酯酶(EC 3.1.2.2)的作用下释放为己酸[16]。
在FAB途径中,乙酰辅酶A作为生物合成前体,首先在羧化酶的作用下形成丙二酰辅酶A,其作为C2供体在转移酶作用下连接到酰基转运蛋白(acyl carrier protein,ACP)上,紧接着进入FAB循环,与酰基-ACP在酮乙酰-ACP合成酶作用下形成β-酮酰-ACP,紧接着β-酮酰-ACP在酮乙酰-ACP还原酶作用下生成β-羟酰-ACP,β-羟酰-ACP在羟酰基-ACP脱水酶作用下形成烯酰-ACP,烯酰-ACP在烯醇基ACP还原酶作用下形成酰基-ACP,完成FAB循环,最后生成己酸[17]。相较于RBO途径,FAB途径需消耗更多ATP,能量利用效率更低。值得注意的是,不同己酸菌对底物的偏好性存在差异,如Clostridium主要以乙醇为底物和电子供体进行丁酸合成,为己酸合成提供电子受体丁酸[18];而Caproiciproducens主要以乳酸为底物和电子供体生成己酸,造成这种差异的原因可能是不同菌株编码的关键酶种类及代谢通路存在差异,致使菌株对底物表现出不同的选择偏好[18]。这种因菌株不同造成的己酸产量不稳定问题,有望采用合成生物学技术和手段解决。目前关于己酸菌代谢工程改造的研究报道还相对较少。仅杨娇[19]鉴定了克氏梭菌己酸合成关键酶和基因并尝试构建克氏梭菌遗传操作系统。产己酸菌株(如克氏梭菌、解乳酸己小杆菌及其近缘菌株)代谢工程发展滞后,主要原因在于成熟的遗传操作体系较为匮乏;同时,转化效率低、缺乏稳定的质粒复制子与筛选标记,且丙酮丁醇梭菌等近缘模式菌株的遗传操作工具难以迁移等。因此,后续研究重点可围绕以下方向开展:筛选适配Caproicibacterium的接合供体菌和接合条件、优化质粒骨架;借鉴乳酸菌CRISPR-Cas9/CRISPR-Cas12a系统开发经验设计适配的遗传操作系统;参考丙酮丁醇梭菌尿苷磷酸化酶/5-氟尿嘧啶(5-fluorouracil,5FU)反筛选系统改进策略(如引入pyrR基因以增加5FU敏感度、优化5FU工作浓度等)。上述研究工作将推动产己酸菌株代谢工程技术发展,助力实现己酸增产[19-21]。
根据电子供体的不同,产己酸菌可分为两类:以乙醇为电子供体的Clostridium[22]和以乳酸为电子供体的部分Oscillospiraceae(如Caproicibacterium、Caproiciproducens)[23-25]。其中,Clostridium kluyveri需要以乙醇和乙酸作为共同底物进行己酸合成;Caproicibacterium lactatifermentans则主要利用乳酸进行己酸合成[26-27]。此外,部分己酸菌还具有利用葡萄糖、淀粉等复杂碳源的能力,体现出代谢的灵活性[28]。
除RBO外,在部分厌氧细菌和古菌中普遍存在的Wood-Ljungdahl途径通过促进乙酸生成也可为己酸合成提供底物[29],这在共培养体系中尤为重要。Huang Xin等[30] 研究发现,在共培养体系中,Clostridium fermenticellae JN500901产生的甲酸可被Novisyntrophococcus fermenticellae JN500902通过Wood-Ljungdahl途径利用,从而促进乙酸生成,进而通过RBO转化为丁酸和己酸。
1.2 丁酸及其他短链脂肪酸的合成
丁酸是己酸合成的重要中间产物,同时也是浓香型白酒中主体香成分丁酸乙酯的前体物质。丁酸的合成同样主要依赖RBO,其代谢过程与己酸合成的前半部分相同,后通过丁酰辅酶A转化生成[15]。丁酰辅酶A主要通过2条途径转化为丁酸:一是由磷酸丁酰转移酶(EC 2.3.1.19)和丁酸激酶(EC 2.7.2.7)催化的丁酸激酶途径;二是由丁酰辅酶A/乙酸辅酶A转移酶(EC 2.8.3.8)催化的丁酸激酶途径[31]。不同菌群对2种途径的利用存在差异,其中芽孢杆菌纲和拟杆菌纲菌株主要依托丁酸激酶途径合成丁酸,而梭菌纲菌株可选择性利用2种途径完成丁酸生成[31]。
除上述2种主要短链脂肪酸外,乙酸和乳酸也是浓香型白酒中的重要短链脂肪酸。其中乙酸主要通过3种途径产生。醋酸菌途径:醋酸菌在厌氧条件下通过醇脱氢酶和全脱氢酶将乙醇转化为乙酸;酵母途径:酵母通过糖酵解途径代谢葡萄糖产生丙酮酸,丙酮酸被丙酮酸脱氢酶及乙醛脱氢酶转化为乙酰辅酶A,最后乙酰辅酶A被磷酸转乙酰酶及乙酸激酶转化为乙酸;乳酸菌途径:葡萄糖在无氧条件下被乳酸菌通过磷酸戊糖途径转化为乙酸和乳酸。此外,有研究表明,在糟醅发酵过程中,在一些厌氧菌和古菌(甲烷菌、硫酸盐还原菌、醋酸菌)中存在Wood-Ljungdahl通路,该通路中磷酸转乙酰酶可转化乙酰辅酶A生成乙酰磷酸,然后,乙酰磷酸在乙酸激酶作用下转化为乙酸盐[32-36]。Sun Hong等[37]发现共培养C. fermenticellae JN500901与N. fermenticellae JN500902可激活Wood-Ljungdahl通路,从而增加乙酸产量,提示在工业化发酵体系中可通过激活Wood-Ljungdahl通路增加乙酸含量,进而为RBO途径提供电子受体。
乳酸主要由乳酸菌通过糖酵解途径生成[14]。首先,原料中的葡萄糖经过糖酵解途径被转化为丙酮酸,丙酮酸在乳酸脱氢酶的作用下转化为乳酸。乳酸作为己酸合成过程中的重要电子供体,在参与RBO循环的代谢中首先被乳酸脱氢酶氧化为丙酮酸,之后与辅酶A结合生成乙酰辅酶A。因此,其代谢通量对己酸含量具有重要影响。在乳酸厌氧发酵过程中存在竞争途径—乳酸-丙烯酸酯途径。当浓度过高时,乳酸被转化为丙烯酰辅酶A,进行奇数碳的碳链延长,此时无法生成偶数碳的己酸[38]。由于发酵体系中微生物种类的多样性及设备的复杂性,很难确定乳酸-丙烯酸酯途径的乳酸浓度阈值。Prabhu等[39]研究表明,当乳酸质量浓度达到3.15 g/L 时,乳酸-丙烯酸酯途径将占主导地位;Kucek等[38]通过升流式厌氧连续反应器研究发现,乳酸容积负荷为8.5 g/(L·d)时,偶数碳己酸合成占主导地位,而当乳酸容积负荷提升至15.14 g/(L·d)时,乳酸-丙烯酸酯途径占主导地位。因此,在以乳酸为电子供体时,为避免乳酸-丙烯酸酯途径竞争,可适当降低乳酸浓度,或通过乳酸降解菌等措施提高其利用率,进而促进偶数碳己酸等的合成。
1.3 酯类的合成代谢
酯类物质作为浓香型白酒风味的重要组成成分,其生物合成主要由有机酸和乙醇通过酯化反应生成。其中主体香气物质己酸乙酯的生物合成可表示为:己酸+乙醇→己酸乙酯+水。该反应主要由酯化酶/醇酰基转移酶催化[40]。酯化酶是一类催化合成脂肪酸酯的酶类的总称,拥有该活性的酶类可催化酯的水解反应以及在非水相体系中催化脂肪酸和醇发生酯化反应[41]。在固态发酵体系中,酯化酶能够催化乙酸、乳酸、己酸等小分子酸与乙醇反应,形成乙酸乙酯、乳酸乙酯、己酸乙酯等风味物质。依托该酶促反应特性,发酵体系能够积累丰富的具有特征性香气的各种酯类物质。产酯化酶微生物主要有真菌、细菌及个别放线菌。真菌中的红曲霉属、异常威克汉姆酵母(Wickerhamomyces anomalus)等具有较高的酯化能力[42-43]。目前,对酵母菌中酯化酶的研究报道较多。Kruis等[44-45]从异常威克汉姆酵母中鉴定出乙酸乙酯合成关键酶—醇乙酰转移酶1(ethanol acetyltransferase 1, Eat1),该酶以乙醇和乙酰辅酶A为底物,表现出醇乙酰基转移酶活性;此外,通过亚细胞定位实验发现,Eat1定位于酵母的线粒体中,该发现打破了传统认为酵母中的酯合成发生在细胞质中的观点。Yoo等[46]对 W. anomalus近缘种Wickerhamomyces subpelliculosus进行全基因组测序,鉴定出7个醇乙酰基转移酶家族基因,包括编码乙酸酯合成的醇-O-乙酰转移酶(alcohol O-acetyltransferase,ATFs)的ATF同源基因和Eat1,以及编码乙醇己酰转移酶1的基因。在5个ATFs同系物中,WsATF5所编码的蛋白对多球壳菌素表现出乙酰转移酶催化活性,WsEHT1、WsEat1所编码的蛋白分别表现出促进癸酸乙酯、乙酸乙酯生成作用。酶活性分析进一步表明,WsEat1具有醇解活性、WsEHT1具有硫酯酶活性。
在浓香型白酒固态发酵体系中,酯化反应既可由微生物胞内酶催化,也可在发酵后期由酒醅中的非生物因素(如温度、酸度等)驱动缓慢进行,这也是延长发酵周期有利于己酸乙酯积累的原因[28]。与此同时,酯化代谢与酸代谢之间存在密切的耦合关系。酸作为酯的前体物质,其代谢通量直接影响酯的生成速率和总量。研究表明,在发酵后期(60~120 d),随着窖泥中己酸菌等厌氧微生物的持续迁移,酒醅中的己酸含量不断积累,为己酸乙酯的合成提供了充足的前体物质[47-50]。这一发现进一步揭示了延长发酵周期对提升浓香型白酒品质的微生物学机制(图1)。
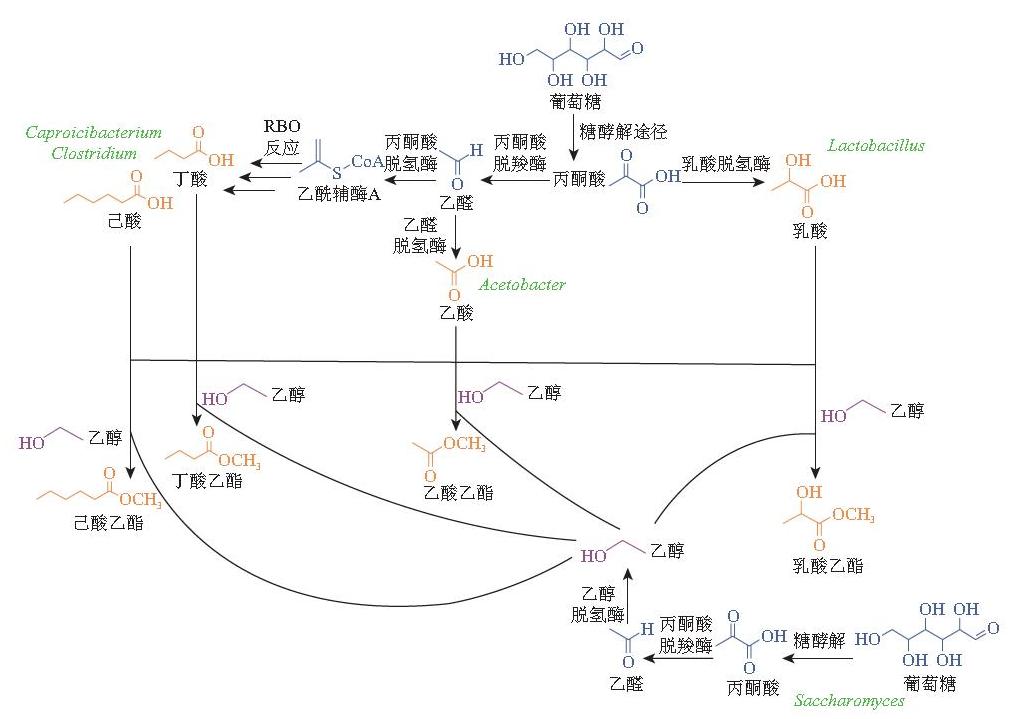
图1 浓香型白酒中主体风味物质酸-酯代谢耦合关系
Fig.1 Coupling relationships between acid and ester metabolism of dominant flavor compounds in strong-flavor Baijiu
2 主体风味物质形成的代谢调控机制
2.1 微生物菌群互作与代谢协同效应
2.1.1 参与主体风味物质代谢的核心微生物类群
Lactobacillus在糟醅发酵前期和中期占据优势地位[51]。通过乳酸脱氢酶在糖酵解过程中产生乳酸,对发酵环境的pH值和乳酸乙酯形成至关重要[1,37,47]。其他功能菌如Acetobacter,主要通过乙醇氧化途径产生乙酸[52]。Bacillus在发酵前期具有较高丰度,能够产生淀粉酶和蛋白酶,分解大分子物质,同时参与乙酸、丁酸、己酸等短链脂肪酸的代谢[29,52]。Saccharomyces cerevisiae、Kazachstania、Wickerhamomyces、Candida等通过糖酵解、Ehrlich等途径生成乙醇,同时产生高级醇和酯化酶,参与酯类物质的形成[5,23]。Rhizopus、Aspergillus、Penicillium等霉菌可产生大量的淀粉酶、蛋白酶和纤维素酶,将高粱中的淀粉和蛋白质分解为小分子糖和氨基酸,为其他微生物提供碳源和氮源[1,5,47]。Methanobrevibacter、Methanobacterium、Methanosarcina等产甲烷古菌能够利用己酸菌和梭菌产生的H2和CO2,通过氢营养型产甲烷途径生成甲烷,从而降低发酵体系中的H2分压,有利于己酸菌的碳链延长反应[1,47,53]。此外,参与主体风味物质代谢的微生物类群还包括稀有菌群,尽管稀有菌群在数量上不占优势,但它们作为微生物生态系统的“种子库”,在维持生态平衡和系统功能完整性方面发挥着不可或缺的作用,并影响特定的代谢途径[3]。
2.1.2 协同作用
微生物中协同作用表现为不同微生物通过生境改造、资源供给、功能互补等分工协作,共同完成单一菌株无法独立实现的整体代谢效能,该过程不要求严格依赖双向必需代谢物互换,一方可仅提供环境条件、底物或酶系支撑(图2)。在浓香型白酒固液双发酵体系中,与黄水共存的的酒醅菌群与窖泥菌群已被证实在己酸代谢中存在协同作用[54],酒醅菌群提供乙酸、乳酸等底物[51],窖泥菌群利用酒醅菌群提供的底物进行丁酸和己酸等的合成[55],如Clostridium以乙醇为底物为己酸菌的己酸合成提供电子受体丁酸[56];在发酵早期和中期,Lactobacillus spp.通过代谢糖类等物质产生大量乳酸,不仅作为重要的风味物质,也可为倾向于以乳酸为底物通过RBO途径合成己酸的己酸菌(如Caproiciproducens)提供底物。菌群的协同作用还存在于酵母菌与其他菌群之间,如酵母菌不仅可产生乙醇,为酯化反应和己酸菌提供底物[23,57],还可在发酵初期消耗氧气,为厌氧己酸菌创造有利的厌氧环境。除此之外,霉菌产生的糖化酶和蛋白酶可分解大分子物质,为其他微生物提供可利用底物等。
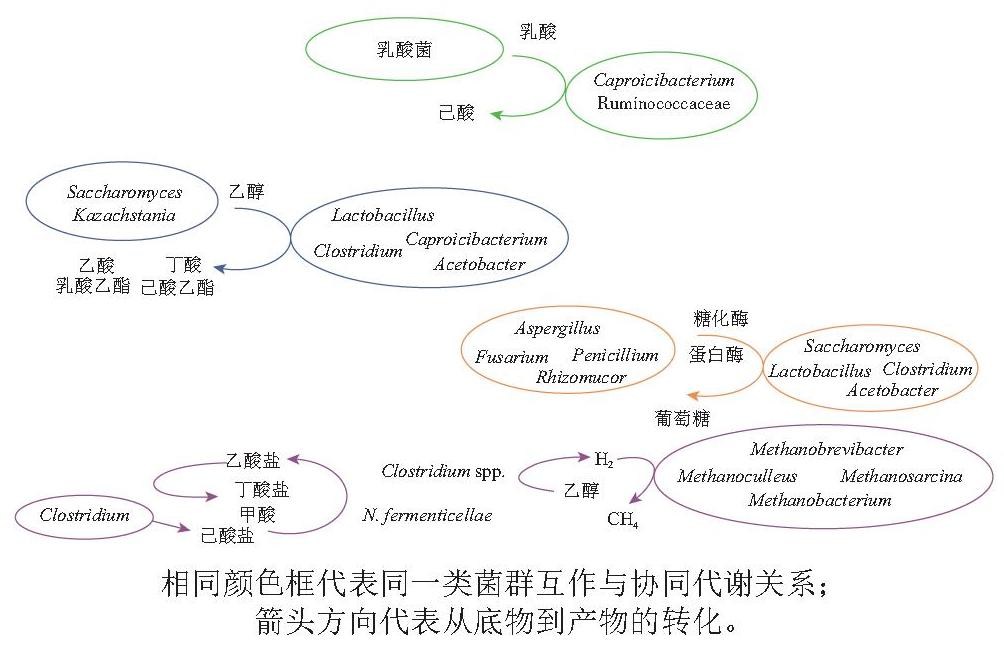
图2 浓香型白酒固态发酵过程中菌群互作与协同代谢
Fig.2 Microbial interactions and synergistic metabolism during solid-state fermentation of strong-flavor Baijiu
2.1.3 互养作用
互养作用需要两种及以上微生物开展严格的代谢产物双向交换,彼此代谢过程相互依存、缺一不可,单独一方无法完成关键代谢通路,属于高度专一化的互利共生亚型。在浓香型白酒发酵体系中,最典型的互养关系发生在梭菌与产甲烷菌之间。例如,己酸菌和梭菌产生的H2和CO2可被产甲烷菌利用,形成“氢转移”的互养关系,降低H2分压,有利于己酸菌的碳链延长反应[1,52]。 Zhu Kaixian等[58]研究表明,窖泥中Hydrogenispora与Methanobacterium的互养关系促进了己酸及其前体物质的生成,且随着窖龄的增加,这种互养关系更加成熟,使得功能菌群的相对丰度和代谢效率增加。此外, Xu Pengxiang等[51]研究表明,窖泥中的梭菌属(Clostridia) 与互养球菌(N. fermenticellae)之间存在基于甲酸/乙酸交换的互养关系,其中C. fermenticellae JN500901产生的甲酸可被N. fermenticellae JN500902通过Wood-Ljungdahl途径利用,促进乙酸生成;随后乙酸又被梭菌通过RBO途径转化为丁酸和己酸。这一双向代谢交换形成正向循环,显著提升了短链脂肪酸的产量,也促进了丁酸和己酸的积累[59]。
2.1.4 竞争与抑制作用
竞争与抑制作用是指不同微生物通过不同方式对生存空间、营养物质及氧气等进行争夺的现象。在浓香型白酒生产过程中主要表现为:Lactobacillus在发酵初期迅速繁殖,通过代谢产生大量乳酸,导致pH值下降。高浓度未解离态乳酸可穿透微生物细胞膜,对己酸菌等敏感菌株产生抑制效应[60]。Zhu Kaixian等[58]研究表明,在新窖池或功能退化窖池中,Lactobacillus相对丰度过高将抑制Caproiciproducens生长,导致己酸合成受阻。此外,Caproiciproducens与Lactobacillus之间还存在竞争乳酸的现象,具体表现为:当乳酸菌过度消耗乳酸时,Caproiciproducens的底物供应不足,导致己酸产量下降;当Caproiciproducens占优势时,其将更多乳酸转化为己酸,进而提升环境pH值,间接抑制乳酸菌的过度增殖,形成动态平衡。
除以上竞争与抑制作用外,浓香型白酒发酵体系中还存在葡萄糖代谢抑制效应,如焦凯瑞等[60]研究表明,在含有葡萄糖和乙醇的共培养体系中,微生物将优先利用葡萄糖生成乳酸,导致环境酸化,进而抑制乙醇的利用及己酸的形成。该研究进一步表明,只有在葡萄糖被消耗、乳酸被代谢之后,菌群才开始重新利用乙醇合成己酸,这一发现也揭示了碳源优先级对代谢通路的调控作用。
2.2 发酵环境因子调控
2.2.1 pH值与温度
pH值是影响微生物生长和代谢的关键因素。一方面,其会影响微生物细胞膜通透性、对营养物质的利用程度及胞内酶活性;另一方面,其会影响培养基中不同营养物质的解离程度[61-62],如己酸菌普遍适合在中性偏酸(pH 5.0~7.0)的环境中生长,过高或过低的pH值均会抑制己酸的合成[23]。晋湘宜等[24]研究表明,当pH<4时,己酸生成被完全抑制,其原因在于此时酸多为未解离态,脂溶性较强,易于穿透细胞膜,对酸敏感菌株毒性较强[63]。当pH>8.0时,己酸菌转而分解蛋白质[64]。San-Valero等[63]研究发现,在恒定pH 6.8时,Clostridium kluyveri的己酸产量为自然不调控pH值时的1.7倍。
温度直接影响微生物生长速率、酶活性,从而差异化调控微生物代谢通路。浓香型白酒发酵普遍采用“前缓、中挺、后缓落”温控模式,形成的温度梯度能够适配不同微生物的生长与代谢需求[3]。
2.2.2 底物组成、水分含量及乙醇含量
浓香型白酒利用高粱等谷物进行糖化发酵,随着发酵的进行,酒醅中的淀粉、葡萄糖、有机酸等随着黄水进入窖泥,为窖泥中的微生物补充生长所需的各种营养物质[65-68]。淀粉、葡萄糖、乳酸、乙醇、乙酸等底物的种类和比例直接影响风味物质的含量和比例。王耀等[67]发现葡萄糖的存在可能抑制己酸菌对乳酸的利用,进而影响己酸的产量。此外,不同糖类(木糖、蔗糖、葡萄糖)的添加对己酸等短链脂肪酸的产量也有不同影响。
水分是微生物生长和酶发挥活性的必需条件。糟醅中的水分含量变化会影响微生物的生长和代谢,进而影响风味物质的形成[1,47,69]。乙醇作为酯类合成的关键底物,浓度低时将影响碳链延长效率,浓度高时则对微生物的生长产生抑制作用[70-73]。崔世亮[70]、Lonkar[74]等的研究均证实,适宜的乙醇体积分数(通常为2%~3%)有利于短链脂肪酸的合成,但浓度过高则会对微生物产生抑制作用,影响碳链延长效率。
2.2.3 窖龄、空间异质性及季节
窖龄对窖泥微生物群落结构、理化性质以及最终酒体风味具有显著影响。老窖泥通常具有更高的pH值、铵态氮和乙酸含量,且己酸菌等产风味物质微生物丰度更高。此外,老窖泥中更稳定、复杂的微生物群落结构有利于己酸等风味物质的积累[1,5,25,75]。
窖池内的不同空间层次(上、中、下层)或不同位置(中心、窖边)糟醅的理化指标和微生物群落结构存在显著差异,这导致风味物质的分布和含量呈现出空间异质性[5,47,69,76],如底层糟醅的己酸和正丁醇含量明显高于中、上层,而中、上层乳酸乙酯增幅远大于底层[69,77-79]。
酿造季节的气候环境(如湿度和温度)变化也会对微生物群落结构和代谢活动产生显著影响,如冬季己酸菌属、甲烷短杆菌属等相对丰度较高,夏季盐单胞菌属、克雷伯氏菌属等相对丰富[80-81],这些差异将导致风味物质呈现出季节性变化。
3 多组学技术在关键风味物质代谢通路解析中的应用
3.1 宏基因组学与宏转录组学
宏基因组学技术通过对样本中全部微生物DNA进行高通量测序,在功能基因鉴定、代谢潜能预测、代谢通路构建等方面发挥着重要的作用[82]。Fu Jingxia等[83] 利用宏基因组学技术对不同产区窖泥的微生物组成和代谢潜力进行分析,发现糖苷水解酶和糖基转移酶是窖泥中主要的碳水化合物活性酶家族,参与淀粉、纤维素等多糖降解。Chen Cong等[54]利用宏基因组技术从窖泥微生物群落中重构了38个高质量基因组,并对这些微生物的代谢潜力进行预测,结果表明Methanobacterium、Sphaerochaeta、Muricomes intestini等作为核心功能菌,在维持厌氧环境的氧化还原平衡、碳水化合物分解、短链脂肪酸生成等方面发挥着重要作用。
宏转录组学通过分析微生物在不同发酵阶段的基因表达水平揭示关键代谢通路中酶的活性,在代谢通路解析中发挥着不可替代的作用。然而,目前宏转录组学在浓香型白酒研究中的应用尚不充分[5]。主要原因在于:1)RNA提取难度大。浓香型白酒发酵体系复杂,原料经多种不同微生物代谢,富含多糖、多酚及各类高浓度代谢产物(如乙醇及各种风味化合物等),这些物质易与RNA共沉淀或导致RNA降解,使得RNA纯度、完整性受到较大影响[84]。2)参考基因组数据库不完整。浓香型白酒窖泥及酒醅中存在大量未培养及未鉴定微生物,对于这些微生物缺乏高质量参考基因组,这导致宏基因组数据组装、基因注释及物种归类分析存在较高的不确定性[85]。3)rRNA去除效率低。在提取的总RNA中,rRNA通常占90%及以上,去除rRNA是获取功能性mRNA的关键步骤,现有的商业化rRNA去除探针主要针对模式微生物设计,对浓香型白酒体系中微生物类群的rRNA捕获效率较差,导致大量测序数据不准确[86]。此外,测序读长较短、不同生信算法差异较大、低丰度基因检测困难等均限制了宏转录组在浓香型白酒中的应用。随着高通量测序技术的持续发展、微生物基因组数据库不断完善,以及蛋白质组学、代谢组学等多组学技术的交叉应用,将有助于进一步明晰浓香型白酒发酵体系内微生物群落演替规律、菌群相互作用机制,同时助力新型功能基因的挖掘[85]。
3.2 代谢组学
代谢组学技术(如气相色谱-质谱、液相色谱-质谱等)通过对样本中的代谢物进行定性和定量分析,完成对相关代谢通路的解析。高江婧等[48]利用代谢组学技术对浓香型白酒为期156 d发酵过程中酒醅风味物质的动态变化进行跟踪,发现乳酸和乙酸在发酵初期迅速增加,己酸和丁酸在发酵50 d后持续增加,己酸乙酯在发酵后期迅速积累。王乐等[69]研究北方浓香型白酒不同空间层次糟醅的风味物质变化发现,底层己酸和正丁醇含量明显高于中、上层,己酸乙酯和丁酸乙酯主要依靠底层和中层窖边点的糟醅在发酵中后期生成。
3.3 基因组尺度代谢模型(genome-scale metabolic models,GSMMs)
GSMMs作为近年来新兴的系统生物学研究方法,在预测微生物个体和群落的代谢能力方面具有较大的应用前景。Chen Cong等[54]将GSMMs应用于浓香型白酒窖泥微生物研究,基于38个宏基因组组装基因组分别构建GSMMs,共预测出598种代谢物,并筛选出12个靶向亚群落。其中,Methanobacterium、Sphaerochaeta、M. intestini、Synergistaceae和Caloramator是各亚群落中的核心微生物,在维持厌氧环境的氧化还原平衡、碳水化合物分解、短链脂肪酸生成等方面发挥着重要的作用。这一新兴方法为预测微生物-代谢物关联、指导合成菌群设计提供了新思路。
不同组学方法的应用优势及局限性如表1所示。
表1 不同组学方法的应用优势及局限性
Table1 Advantages and limitations of various omics analytical technologies
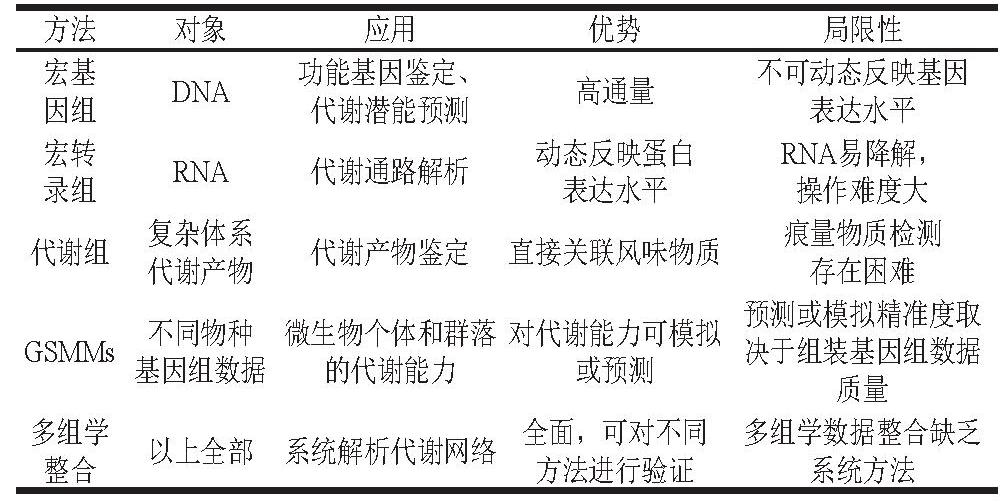
方法对象应用优势局限性宏基因组DNA功能基因鉴定、代谢潜能预测高通量不可动态反映基因表达水平宏转录组RNA代谢通路解析动态反映蛋白RNA易降解,表达水平操作难度大代谢组复杂体系代谢产物代谢产物鉴定直接关联风味物质痕量物质检测存在困难GSMMs不同物种微生物个体和群落对代谢能力可模拟预测或模拟精准度取基因组数据的代谢能力或预测决于组装基因组数据质量多组学整合以上全部系统解析代谢网络全面,可对不同多组学数据整合缺乏方法进行验证系统方法
4 结 语
浓香型白酒风味的形成涉及复杂的多尺度代谢网络,其发酵过程中存在多种营养物质及庞大的微生物群落,给特征风味物质合成代谢通路的系统解析带来极大挑战。本文从关键风味物质的代谢通路(己酸、丁酸、酯类等)、参与特征风味物质代谢的关键微生物类群及其分子机制、特征风味物质代谢的调控机制以及多组学技术在特征风味物质代谢通路解析中的应用等方面系统综述了浓香型白酒特征风味物质的生物合成机制与代谢调控。全面梳理了近年来各种新兴技术在浓香型白酒特征风味物质代谢通路解析中的应用。由于酿造环境的复杂性与不确定性,仍存在关键问题亟待解决。例如,对特征风味物质代谢通路解析不够精细:RBO中关键酶的调控机制尚不清晰,尤其是不同碳源条件下的代谢流分配规律有待深入研究。Wood-Ljungdahl途径在浓香型白酒发酵体系中的贡献度也需要进一步量化。因此,通过多手段结合对代谢通路进一步精细解析。
4.1 GSMMs与机器学习的结合驱动智能调控
GSMMs能够系统刻画微生物体内代谢网络分布,但在复杂固态发酵体系中,对环境扰动、菌群互作的动态响应预测能力有限,且随着发酵的进行,其预测精度会发生下降,难以实现真正意义上的动态智能调控;机器学习方法虽具备强大的数据挖掘与趋势预测能力,却缺乏生物学参数限制,难以直接指导代谢层面的工艺调控。未来研究重点应将GSMMs的代谢通路知识与机器学习算法深度耦合,以代谢网络拓扑结构、热力学参数约束和组学数据为训练模型,实现对发酵过程中代谢流迁移、关键中间产物积累及风味物质合成的动态预测,进而建立基于代谢通路的精准化、智能化发酵调控策略,最终实现酿造过程从“经验控制”向“精准调控”的 转变[87-89]。
4.2 基于代谢通路设计的最小合成功能菌群构建与定向调控
传统酿造体系面临着天然微生物群落结构复杂、功能冗余、酿造批次稳定性差等劣势,难以实现对特征风味物质的精准调控。而基于代谢通路设计的最小合成功能菌群,通过筛选核心功能微生物并明确其代谢分工与协同关系,可有效规避天然菌群的复杂性与不确定性。未来的重点可围绕己酸、己酸乙酯等浓香型白酒中关键风味物质的生物合成通路,理性设计菌群结构与底物交换模式,构建组成明确、代谢稳定、可复制的合成微生物群落,实现关键风味物质合成效率与积累水平的高效提升,为高品质白酒标准化、智能化生产提供核心支撑[90-91]。
4.3 特征风味物质产生菌株的遗传操作体系开发与代谢工程改造
以Caproicibacterium、Clostridium为例,二者等作为浓香型白酒风味形成的核心功能菌,在己酸生成方面扮演着重要的作用。然而目前此类厌氧菌株缺乏成熟、高效的遗传操作工具,面临着菌株转化效率低、基因编辑系统适用性差等缺点,严重限制该菌株性能的提升和利用。未来研究重点应针对Caproicibacterium等重要功能菌开发高效接合转移方法,或通过借鉴亲缘模式菌株构建适配Caproicibacterium的CRISPR-Cas9/CRISPR-Cas12a基因编辑系统,进而建立稳定遗传操作体系;在此基础上,通过强化RBO途径、提升底物利用效率、阻断副产物支路等代谢工程策略,系统提升关键风味物质的生物合成能力,为浓香型白酒酿造微生物的代谢通路改造与性能强化提供技术突破[92-93]。
4.4 单细胞原位检测技术解析空间异质性
传统宏基因组与代谢组分析多基于“混合样品、异位检测”,无法真实反映窖泥、酒醅、黄水等微区内微生物的空间分布、原位代谢活性及空间异质性。单细胞拉曼光谱、荧光原位杂交-纳米二次离子质谱等原位分析技术可在不破坏微生态结构的前提下,实现物种定位、代谢表型表征与物质交换的原位示踪,能够精准解析界面代谢、微区互作及空间结构对风味合成的影响。未来应将此类高分辨原位技术大力应用于白酒发酵体系,这将为揭示微生态机制、优化菌群结构与精准调控发酵微环境提供关键技术支撑等[94-96],其作为未来的研究重点在提升浓香型白酒品质及智能化酿造等方面,具有广阔的应用前景。
此外,还可通过结合工艺优化如低温入窖、控制发酵升温过快、减少辅料用量、控制合理的粮糠比(多粮浓香20%~25%,淡季20%~22%,旺季23%~25%)、控制酒醅酸度(入窖温度20 ℃以下,酸度为1.5~1.8 mL/g 时,酵母可较大程度利用糟醅中的淀粉)、中温流酒(25~30 ℃,流酒速度2.5~3 kg/m3)及沸点打量水等措施进一步提升浓香型白酒品质[97]。
[1] 文悦, 贾俊杰, 敖宗华, 等. 浓香型白酒糟醅发酵过程微生物群落演替研究进展[J]. 中国酿造, 2025, 44(4): 20-26. DOI:10.11882/j.issn.0254-5071.2025.04.004.
[2] 文悦, 张宿义, 宋攀, 等. 浓香型白酒酒醅发酵过程中微生物群落阶段性演替规律及形成机理[J]. 食品科学, 2025, 46(19): 144-157.DOI:10.7506/spkx1002-6630-20250417-141.
[3] Wei Yang, Zou Wei, Shen Caihong, et al. Basic flavor types and component characteristics of Chinese traditional liquors: a review[J]. Journal of Food Science, 2020, 85(12): 4096-4107. DOI:10.1111/1750-3841.15536.
[4] Xu Youqiang, Zhao Jingrong, Liu Xiao, et al. Flavor mystery of Chinese traditional fermented Baijiu: the great contribution of ester compounds[J]. Food Chemistry, 2022, 369: 130920. DOI:10.1016/j.foodchem.2021.130920.
[5] Mei Junlan, Chai Lijuan, Lu Zhenming, et al. Strong-flavor Baijiu pit mud microbiome in the context of modern industry: from a black box under empiricism to the gradual revelation of microbial ecosystems[J]. Comprehensive Reviews in Food Science and Food Safety, 2025, 24(4): e70224. DOI:10.1111/1541-4337.70224.
[6] Gao Jiangjing, Liu Guoying, Li Anjun, et al. Domination of pit mud microbes in the formation of diverse flavour compounds during Chinese strong aroma-type Baijiu fermentation[J]. LWT-Food Science and Technology, 2021, 137: 110442. DOI:10.1016/j.lwt.2020.110442.
[7] Zhang Wenxue, Qiao Zongwei, Shigematsu T, et al. Analysis of the bacterial community in Zaopei during production of Chinese Luzhou-flavor liquor[J]. Journal of the Institute of Brewing, 2005, 111(2): 215-222. DOI:10.1002/j.2050-0416.2005.tb00669.x.
[8] Zhao Jinsong, Zheng Jia, Zhou Rongqing, et al. Microbial community structure of pit mud in a Chinese strong aromatic liquor fermentation pit[J]. Journal of the Institute of Brewing, 2012, 118(4): 356-360. DOI:10.1002/jib.52.
[9] Zheng Xiaowei, Tabrizi M R, Robert Nout M J, et al. Daqu:a traditional Chinese liquor fermentation starter[J]. Journal of the Institute of Brewing, 2011, 117(1): 82-90. DOI:10.1002/j.2050-0416.2011.tb00447.x.
[10] Scarborough M J, Lawson C E, Hamilton J J, et al. Metatranscriptomic and thermodynamic insights into medium-chain fatty acid production using an anaerobic microbiome[J]. mSystems, 2018, 3(6): e00221-18. DOI:10.1128/mSystems.00221-18.
[11] Han Wenhao, He Pinjing, Shao Liming, et al. Metabolic interactions of a chain elongation microbiome[J]. Applied and Environmental Microbiology, 2018, 84(22): e01614-18. DOI:10.1128/aem.01614-18.
[12] Tao Yong, Wang Xiang, Li Xiangzhen, et al. The functional potential and active populations of the pit mud microbiome for the production of Chinese strong-flavour liquor[J]. Microbial Biotechnology, 2017, 10(6): 1603-1615. DOI:10.1111/1751-7915.12729.
[13] Wang Han, Li Xiangzhen, Wang Yi, et al. Improvement of n-caproic acid production with Ruminococcaceae bacterium CPB6: selection of electron acceptors and carbon sources and optimization of the culture medium[J]. Microbial Cell Factories, 2018, 17(1): 99. DOI:10.1186/s12934-018-0946-3.
[14] 马鸿志, 武文宇, 于子强, 等. 微生物合成己酸的基本原理: 能量代谢及影响因素[J]. 工程科学学报, 2023, 45(4): 681-692. DOI:10.13374/j.issn2095-9389.2022.01.04.001.
[15] Spirito C M, Richter H, Rabaey K, et al. Chain elongation in anaerobic reactor microbiomes to recover resources from waste[J]. Current Opinion in Biotechnology, 2014, 27: 115-122. DOI:10.1016/j.copbio.2014.01.003.
[16] Gonzalez-Cabaleiro R, Lema J M, Rodríguez J, et al. Metabolic modelling of the chain elongation process: a key to understand the production of medium-chain fatty acids[J]. Water Research, 2013,47(12): 4187-4198. DOI: 10.1016/j.jece.2024.112070.
[17] Wang Huilin, Zhou Weicheng, Gao Jiangjing, et al. Revealing the characteristics of glucose- and lactate-based chain elongation for caproate production by Caproicibacterium lactatifermentans through transcriptomic, bioenergetic, and regulatory analyses[J]. mSystems,2022, 7(5): e00534-22. DOI:10.1128/msystems.00534-22.
[18] Chai Lijuan, Lu Zhenming, Zhang Xiaojuan, et al. Zooming in on butyrate-producing clostridial consortia in the fermented grains of Baijiu via gene sequence-guided microbial isolation[J]. Frontiers in Microbiology, 2019, 10: 1397. DOI:10.3389/fmicb.2019.01397.
[19] 杨娇. 克氏梭菌己酸合成途径基因的鉴定及该菌遗传操作工具的构建[D]. 无锡: 江南大学, 2018.
[20] Shaposhnikov L A, Rozanov A S, Sazonov A E. Genome-editing tools for lactic acid bacteria: past achievements, current platforms, and future directions[J]. International Journal of Molecular Sciences, 2025,26(15): 7483. DOI:10.3390/ijms26157483.
[21] Boudignon E, Foulquier C, Soucaille P. Improvement of the genome editing tools based on 5FC/5FU counter selection in Clostridium acetobutylicum[J]. Microorganisms, 2023, 11(11): 2696. DOI:10.3390/microorganisms11112696.
[22] Shi Xingdong, Wu Lan, Wei Wei, et al. Insights into the microbiomes for medium-chain carboxylic acids production from biowastes through chain elongation[J]. Critical Reviews in Environmental Science and Technology,2022, 52(21): 3787-3812. DOI:10.1080/10643389.2021.1957342.
[23] Zhu Xiaoyu, Huang Huanhuan, He Yong, et al. A preliminary study on the feasibility of industrialization for n-caproic acid recovery from food wastewater: from lab to pilot[J]. Bioresource Technology, 2022,366: 128154. DOI:10.1016/j.biortech.2022.128154.
[24] 晋湘宜, 胡咏梅, 彭楠, 等. 浓香型白酒窖泥己酸菌的研究进展[J].华中农业大学学报, 2024, 43(4): 121-132. DOI:10.13300/j.cnki.hnlkxb.2024.04.014.
[25] Wang Huilin, Gu Yang, Zhou Weicheng, et al. Adaptability of a caproateproducing bacterium contributes to its dominance in an anaerobic fermentation system[J]. Applied and Environmental Microbiology, 2021,87(20): e01203-21. DOI:10.1128/aem.01203-21.
[26] 张会敏, 邢新会, 王越, 等. 浓香型白酒发酵体系中己酸菌的研究进展[J]. 食品科学, 2024, 45(9): 314-321. DOI:10.7506/spkx1002-6630-20230620-162.
[27] Hu Xiaolong, Du Hai, Xu Yan. Identification and quantification of the caproic acid-producing bacterium Clostridium kluyveri in the fermentation of pit mud used for Chinese strong-aroma type liquor production[J]. International Journal of Food Microbiology, 2015, 214:116-122. DOI:10.1016/j.ijfoodmicro.2015.07.032.
[28] Wang Huilin, Gu Yang, Zhao Dong, et al. Caproicibacterium lactatifermentans sp. nov., isolated from pit clay used for the production of Chinese strong aroma-type liquor[J]. International Journal of Systematic and Evolutionary Microbiology, 2022, 72(1):5206. DOI:10.1099/ijsem.0.005206.
[29] Gu Yang, Zhu Xiaojun, Lin Feng, et al. Caproicibacterium amylolyticum gen. nov., sp. nov., a novel member of the family Oscillospiraceae isolated from pit clay used for making Chinese strong aroma-type liquor[J]. International Journal of Systematic and Evolutionary Microbiology, 2021, 71(4): 4789. DOI:10.1099/ijsem.0.004789.
[30] Huang Xin, Zheng Jia, Zhang Kaizheng, et al. Short-chain fatty acids and their producing microorganisms in the Nongxiangxing Baijiu ecosystem: status and perspectives[J]. Food Bioscience, 2024, 61:104701. DOI:10.1016/j.fbio.2024.104701.
[31] Marius V, Adina C H, James M T et al. Revealing the bacterial butytare synthesis pathway by analyzing (Meta) genomic date[J]. mBio, 2014, 5(2): e00889-14. DOI: 10.1128/mbio.00889-14.
[32] Du R, Wu Q, Xu, Y. Chinese liquor fermentation: identification of key flavor producing Lactobacillus spp. by quantitative profiling with indigenous internal standards[J]. Applied and Environmental Microbiology, 2020, 86(12): e00456-20. DOI: 10.1128/AEM.00456-20.
[33] Wu Linhuan, Lu Zhenming, Zhang Xiaojuan, et al. Metagenomics reveals flavour metabolic network of cereal vinegar microbiota[J]. Food Microbiology, 2017, 62: 23-31. DOI:10.1016/j.fm.2016.09.010.
[34] De Araújo Cavalcante W, Leitão R C, Gehring T A, et al. Anaerobic fermentation for n-caproic acid production: a review[J]. Process Biochemistry, 2017, 54: 106-119. DOI:10.1016/j.procbio.2016.12.024.
[35] Ragsdale S W, Pierce E. Acetogenesis and the wood-ljungdahl pathway of CO2 fixation[J]. Biochimica et Biophysica Acta (BBA): Proteins and Proteomics, 2008, 1784(12): 1873-1898. DOI:10.1016/j.bbapap.2008.08.012.
[36] Vidra A, Németh Á. Bio-produced acetic acid: a review[J]. Periodica Polytechnica Chemical Engineering, 2018, 62(3): 245-256.DOI:10.3311/ppch.11004.
[37] Sun Hong, Chai Lijuan, Fang Guanyu, et al. Metabolite-based mutualistic interaction between two novel clostridial species from pit mud enhances butyrate and caproate production[J]. Applied and Environmental Microbiology, 2022, 88(13): e00484-22. DOI:10.1128/aem.00484-22.
[38] Kucek L A, Nguyen M, Angenent L T. Conversion of L-lactate into n-caproate by a continuously fed reactor microbiome[J]. Water Research, 2016, 93: 163-171. DOI:10.1016/j.watres.2016.02.018.
[39] Prabhu R, Altman E, Eiteman M A. Lactate and acrylate metabolism by Megasphaera elsdenii under batch and steady-state conditions[J].Applied and Environmental Microbiology, 2012, 78(24): 8564-8570.DOI:10.1128/aem.02443-12.
[40] 王旭, 刘眉伶, 郑柳艳, 等. 浓香型白酒中主要酸酯相互作用及机理解析[J]. 食品科学, 2025, 46(5): 75-84. DOI:10.7506/spkx1002-6630-20240726-260.
[41] Chatonnet A, Perochon M, Velluet E, et al. The ESTHER database on α/β hydrolase fold proteins: an overview of recent developments[J]. Chemico-Biological Interactions, 2023, 383: 110671. DOI:10.1016/j.cbi.2023.110671.
[42] Löser C, Urit T, Bley T. Perspectives for the biotechnological production of ethyl acetate by yeasts[J]. Applied Microbiology and Biotechnology, 2014, 98(12): 5397-5415. DOI:10.1007/s00253-014-5765-9.
[43] Van Irma M H, Wolkers-Rooijackers Judith C M, Tjakko A, et al. Performance of non-conventional yeasts in co-culture with brewers’ yeast for steering ethanol and aroma production[J]. Microbial Biotechnology, 2017, 10(6): 1591-1602. DOI:10.1111/1751-7915.12717.
[44] Kruis A J, Levisson M, Mars A E, et al. Ethyl acetate production by the elusive alcohol acetyltransferase from yeast[J]. Metabolic Engineering, 2017, 41: 92-101. DOI:10.1016/j.ymben.2017.03.004.
[45] Kruis A J, Mars A E, Kengen S W M, et al. Alcohol acetyltransferase Eat1 is located in yeast mitochondria[J]. Applied and Environmental Microbiology, 2018, 84(19): e01640-18. DOI:10.1128/aem.01640-18.
[46] Yoo S J, Kim H J, Moon H Y, et al. Genome-wide identification and biochemical characterization of alcohol acyltransferases for aroma generation in Wickerhamomyces subpelliculosus isolates from fermented food[J]. Journal of Agricultural and Food Chemistry, 2024, 72(50): 28194-28208. DOI:10.1021/acs.jafc.4c08103.
[47] 宋建阳, 梁莉莹, 岑定运, 等. 浓香型白酒发酵过程中酒醅微生物群落结构解析及其与风味物质的相关性[J]. 食品研究与开发, 2023,44(14): 86-92. DOI:10.12161/j.issn.1005-6521.2023.14.013.
[48] 高江婧, 任聪, 刘国英, 等. 浓香型白酒酒醅风味物质和微生物菌群结构随发酵时间的变化规律[J]. 食品与发酵工业, 2019, 45(20): 1-6.DOI:10.13995/j.cnki.11-1802/ts.021271.
[49] 卫春会, 郑自强, 李浩, 等. 浓香型白酒酒醅发酵过程中风味物质时空差异分析[J]. 食品与发酵工业, 2022, 48(5): 240-246.DOI:10.13995/j.cnki.11-1802/ts.027617.
[50] Wang Yansheng, Li Bin, Dong Hong, et al. Complete genome sequence of Clostridium kluyveri JZZ applied in Chinese strong-flavor liquor production[J]. Current Microbiology, 2018, 75(11): 1429-1433.DOI:10.1007/s00284-018-1539-4.
[51] Xu Pengxiang, Chai Lijuan, Qiu Ting, et al. Clostridium fermenticellae sp. nov., isolated from the mud in a fermentation cellar for the production of the Chinese liquor, Baijiu[J]. International Journal of Systematic and Evolutionary Microbiology, 2019, 69(3): 859-865.DOI:10.1099/ijsem.0.003254.
[52] Zhang Mingzhu, Wu Xuefeng, Mu Dongdong, et al. Profiling the influence of physicochemical parameters on the microbial community and flavor substances of Zaopei[J]. Journal of the Science of Food and Agriculture, 2021, 101(15): 6300-6310. DOI:10.1002/jsfa.11299.
[53] 曾波, 饶家权, 邹永芳, 等. 浓香型白酒酒醅发酵过程中微生物群落结构演替及其与理化指标相关性[J]. 食品科学, 2024, 45(7): 111-118. DOI:10.7506/spkx1002-6630-20230804-030.
[54] Chen Cong, Yang Haiquan, Zhang Kaizheng, et al. Revealing microbiota characteristics and predicting flavor-producing sub-communities in Nongxiangxing Baijiu pit mud through metagenomic analysis and metabolic modeling[J]. Food Research International, 2024, 188: 114507. DOI:10.1016/j.foodres.2024.114507.
[55] 张会敏, 孟雅静, 王艳丽, 等. 新老窖池黄水的差异性及静置培养对其影响[J]. 生物工程, 2020, 41(2): 215-222. DOI:10.7506/spkx1002-6630-20190531-382.
[56] Qian Wei, Lu Zhenming, Chai Lijuan, et al. Cooperation within the microbial consortia of fermented grains and pit mud drives organic acid synthesis in strong-flavor Baijiu production[J]. Food Research International, 2021, 147: 110449. DOI:10.1016/j.foodres.2021.110449.
[57] Chai Lijuan, Xu Pengxiang, Qian Wei, et al. Profiling the Clostridia with butyrate-producing potential in the mud of Chinese liquor fermentation cellar[J]. International Journal of Food Microbiology,2019, 297: 41-50. DOI:10.1016/j.ijfoodmicro.2019.02.023.
[58] Zhu Kaixian, Xiao Qin, Yuan Siqi, et al. The relationship between microbial diversity and the physicochemical characteristics of pit mud of strong-flavor Baijiu[J]. Scientific Reports, 2025, 15: 29454.DOI:10.1038/s41598-025-15108-3.
[59] 孙红, 柴丽娟, 方冠宇, 等. 窖泥中梭菌和互养球菌交互作用对生长和短链脂肪酸代谢的影响[J]. 食品与发酵工业, 2022, 48(15): 24-32.DOI:10.13995/j.cnki.11-1802/ts.032308.
[60] 焦凯瑞, 邓波, 宋萍, 等. 浓香型白酒生产中的功能微生物及其协同作用研究进展[J]. 南京师大学报, 2024, 47(4): 68-76. DOI:10.3969/j.issn.1001-4616.2024.04.008.
[61] 高小朋, 何猛超, 许可, 等. 工业微生物发酵过程中pH调控研究进展[J]. 中国生物工程杂志, 2020, 40(6): 93-99. DOI:10.13523/j.cb.2002046.
[62] Krulwich T A, Sachs G, Padan E. Molecular aspects of bacterial pH sensing and homeostasis[J]. Nature Reviews Microbiology, 2011, 9(5):330-343. DOI:10.1038/nrmicro2549.
[63] San-Valero P, Abubackar H N, Veiga M C, et al. Effect of pH, yeast extract and inorganic carbon on chain elongation for hexanoic acid production[J]. Bioresource Technology, 2020, 300: 122659.DOI:10.1016/j.biortech.2019.122659.
[64] 张宗奇, 姚继承. 己酸菌生长代谢因素与培养应用[J]. 中国食品添加剂, 2008(增刊1): 268-272. DOI:10.3969/j.issn.1006-2513.2008.z1.052.
[65] 张会敏, 王艳丽, 孟雅静, 等. 浓香型白酒新、老窖池池壁泥与池底泥原核菌群结构分析[J]. 食品科学, 2020, 41(18): 180-187. DOI:10.7506/spkx1002-6630-20190723-307.
[66] Wang Bowen, Wu Qun, Xu Yan, et al. Multiple sugars promote microbial interactions in Chinese Baijiu fermentation[J]. LWT-Food Science and Technology, 2021, 138: 110631. DOI:10.1016/j.lwt.2020.110631.
[67] 王耀, 李喆, 甘广东, 等. 窖泥中产酸功能菌筛选及发酵条件初探[J].酿酒, 2015, 42(1): 52-56. DOI:10.3969/j.issn.1002-8110.2015.01.013.
[68] Kang Jiamu, Sun Yuting, Huang Xiaoning, et al. Unraveling the microbial compositions, metabolic functions, and antibacterial properties of Huangshui, a byproduct of Baijiu fermentation[J]. Food Research International, 2022, 157: 111320. DOI:10.1016/j.foodres.2022.111320.
[69] 王乐, 魏功, 郭逸臻, 等. 北方浓香型白酒发酵过程中不同空间层次糟醅理化指标及风味物质的变化[J]. 中国酿造, 2024, 43(3): 63-71.DOI:10.11882/j.issn.0254-5071.2024.03.010.
[70] 崔世亮, 杨玉珍, 节秀娟. 己酸菌的选育与应用研究[J]. 酿酒科技,2003(4): 38-39; 42. DOI:10.3969/j.issn.1001-9286.2003.04.009.
[71] 赵晨婕, 刘念, 王超凯, 等. 窖泥高产己酸菌的分离筛选及发酵性能测试[J]. 中国酿造, 2020, 39(1): 114-118. DOI:10.11882/j.issn.0254-5071.2020.01.022.
[72] 吴根福, 陈佩华. 己酸菌的自然选育及其生物学特性的初步 研究[J]. 杭州大学学报, 1996, 23(3): 269-274. DOI:10.3785/0253-3618.1996.03.0269.
[73] 刘宏媛, 李春旭, 张锦涛, 等. 津酒老窖泥己酸菌的筛选及培养条件的优化[J]. 酿酒科技, 2020(1): 42-45. DOI:10.13746/j.njkj.2019223.
[74] Lonkar S, Fu Zhihong, Holtzapple M. Optimum alcohol concentration for chain elongation in mixed-culture fermentation of cellulosic substrate[J]. Biotechnology and Bioengineering, 2016, 113(12): 2597-2604. DOI:10.1002/bit.26024.
[75] Ding Xiaofei, Wu Chongde, Huang Jun, et al. Interphase microbial community characteristics in the fermentation cellar of Chinese Luzhou-flavor liquor determined by PLFA and DGGE profiles[J]. Food Research International, 2015, 72: 16-24. DOI:10.1016/j.foodres.2015.03.018.
[76] 张大凤, 李可, 刘森, 等. 中国浓香型白酒窖池糟醅中微生物群落演替分析[J]. 食品科学, 2012, 33(15): 183-187.
[77] 汪慧慧, 高俊杰, 李庆腾, 等. 浓香型酒醅发酵过程中真核微生物群落的研究[J]. 食品科技, 2022, 47(8): 14-20. DOI:10.13684/j.cnki.spkj.2022.08.013.
[78] Chen Cong, Yang Haiquan, Liu Jie, et al. Systematic review of actinomycetes in the Baijiu fermentation microbiome[J]. Foods, 2022, 11(22): 3551. DOI:10.3390/foods11223551.
[79] 毛凤娇, 黄均, 周荣清, 等. 人工窖泥微生物群落对浓香型白酒发酵过程风味代谢物形成的影响[J]. 食品科学, 2024, 45(4): 125-134.DOI:10.7506/spkx1002-6630-20230517-164.
[80] Jiang Xinyi, Peng Zheng, Zhu Qi, et al. Exploration of seasonal fermentation differences and the possibility of flavor substances as regulatory factors in Daqu[J]. Food Research International, 2023, 168: 112686. DOI:10.1016/j.foodres.2023.112686.
[81] 王依文, 田瑶瑶, 张克粉, 等. 不同季节及层级浓香型白酒窖泥微生物群落多样性与风味物质的比较及相关性分析[J]. 食品科学, 2025,46(4): 100-109. DOI:10.7506/spkx1002-6630-20240605-023.
[82] Li Changrun, Wang Yansheng, Xie Guopai, et al. Complete genome sequence of Clostridium butyricum JKY6D1 isolated from the pit mud of a Chinese flavor liquor-making factory[J]. Journal of Biotechnology,2016, 220: 23-24. DOI:10.1016/j.jbiotec.2016.01.003.
[83] Fu Jingxia, Chen Li, Yang Shengzhi, et al. Metagenome and analysis of metabolic potential of the microbial community in pit mud used for Chinese strong-flavor liquor production[J]. Food Research International, 2021, 143: 110294. DOI:10.1016/j.foodres.2021.110294.
[84] 雷忠华, 陈聪聪, 陈谷. 基于宏基因组和宏转录组的发酵食品微生物研究进展[J]. 食品科学, 2018, 39(3): 330-337. DOI:10.7506/spkx1002-6630-201803049.
[85] 胡晓龙, 田瑞杰, 李保坤, 等. 基于宏转录组学技术解析浓香型酒醅活性微生物群落结构及功能变化特征[J]. 食品科学, 2022, 43(10):124-132. DOI:10.7506/spkx1002-6630-20210324-293.
[86] He Shaomei. An update and review of ribosomal RNA depletion methods for microbial transcriptomics[M]//Izard J, Rivera M C.Metagenomics for microbiology. 2nd ed. New York: Academic Press,2025: 109-142. https://www.sciencedirect.com/science/chapter/editedvolume/abs/pii/B9780443223761000027.
[87] Oyetunde T, Bao F S, Chen J W, et al. Leveraging knowledge engineering and machine learning for microbial bio-manufacturing[J].Biotechnology Advances, 2018, 36(4): 1308-1315. DOI:10.1016/j.biotechadv.2018.04.008.
[88] Merzbacher C, Mac Aodha O, Oyarzún D A. Modeling host-pathway dynamics at the genome scale with machine learning[J]. Metabolic Engineering, 2025, 91: 480-491. DOI:10.1016/j.ymben.2025.05.008.
[89] Cheng Yang, Bi Xinyu, Xu Yameng, et al. Machine learning for metabolic pathway optimization: a review[J]. Computational and Structural Biotechnology Journal, 2023, 21: 2381-2393. DOI:10.1016/j.csbj.2023.03.045.
[90] Nikoloudaki O, Aheto F, Di Cagno R, et al. Synthetic microbial communities: a gateway to understanding resistance, resilience,and functionality in spontaneously fermented food microbiomes[J].Food Research International, 2024, 192: 114780. DOI:10.1016/j.foodres.2024.114780.
[91] Jin Ritian, Song Jing, Liu Chang, et al. Synthetic microbial communities: novel strategies to enhance the quality of traditional fermented foods[J]. Comprehensive Reviews in Food Science and Food Safety, 2024, 23(4): e13388. DOI:10.1111/1541-4337.13388.
[92] Pyne M E, Bruder M R, Moo-Young M, et al. Harnessing heterologous and endogenous CRISPR-Cas machineries for efficient markerless genome editing in Clostridium[J]. Scientific Reports, 2016, 6: 25666.DOI:10.1038/srep25666.
[93] Heap J T, Kuehne S A, Ehsaan M, et al. The ClosTron: mutagenesis in Clostridium refined and streamlined[J]. Journal of Microbiological Methods, 2010, 80(1): 49-55. DOI:10.1016/j.mimet.2009.10.018.
[94] He Yang, He Yuehui, Zhou Yuanyuan, et al. Tracking production and interconversion of extra- and intra-cellular metabolites during beer fermentation by ramanomics[J]. Bioresource Technology, 2026, 443:133788. DOI:10.1016/j.biortech.2025.133788.
[95] Musat N, Foster R, Vagner T, et al. Detecting metabolic activities in single cells, with emphasis on nanoSIMS[J]. FEMS Microbiology Reviews, 2012, 36(2): 486-511. DOI:10.1111/j.1574-6976.2011.00303.x.
[96] 陈晨, 柏耀辉, 梁金松, 等. FISH-NanoSIMS技术在环境微生物生态学上的应用研究[J]. 环境科学, 2015, 36(1): 244-251. DOI:10.13227/j.hjkx.2015.01.032.
[97] 赖登燡, 林东, 王久明, 等. 浓香型白酒“增己降乙”与酿酒工艺的关联性研究[J]. 酿酒, 2021, 48(1): 3-11. DOI:10.3969/j.issn.1002-8110.2021.01.002.