果酒是以新鲜水果为原料,通过破碎、压榨等工艺,再经酵母发酵酿制而成的含乙醇饮料[1]。在传统工业化生产里,酿酒酵母(Saccharomyces cerevisiae)因其发酵能力强、耐受环境胁迫力强以及菌种安全稳定等优势而被广泛使用,并已发展成为商用酿酒酵母[2-3]。然而,单一使用酿酒酵母常导致产品风味单一,香气与口感缺乏复杂性与独特性[4]。近年来,为丰富果酒风味并顺应市场对产品多样化的需求,非酿酒酵母的研究日益受到重视。这类酵母能分泌多种酶,将原料中的风味前体物质转化为酯类、高级醇类、萜烯类和有机酸类等挥发性化合物,从而显著增强果酒的香气复杂性[5-6]。通过筛选优良非酿酒酵母菌株,并与酿酒酵母进行协同发酵,不仅可以模拟自然发酵的微生物群落,还能通过菌株间的协同作用改善果酒风味、口感和色泽[7]。然而,非酿酒酵母与酿酒酵母之间的互作机制极为复杂,涉及营养竞争、接触依赖性抑制、代谢产物交叉影响及信号分子介导的通讯等多层次相互作用,深入解析这些互作机制是实现混合发酵精准调控的关键前提。本文综述非酿酒酵母在果酒酿造中的应用研究进展,重点阐述其在提升香气、调节口感和稳定色泽方面的作用机制,深入探讨其与酿酒酵母的菌间互作机制及混合发酵策略,最后对未来研究方向和产业化应用前景进行展望,旨在为果酒产业的创新发展提供科学参考。
1 主要非酿酒酵母种类及其酿造特性
非酿酒酵母种类丰富多样,主要包括毕赤酵母属(Pichia)、有孢圆酵母属(Torulaspora)、梅奇酵母属(Metschnikowia)、汉逊酵母属(Hanseniaspora)、裂殖酵母属(Schizosaccharomyces)、接合酵母属(Zygosaccharomyces)、拉钱斯氏酵母属(Lachancea)及斯塔莫酵母属(Starmerella)等,广泛存在于酿造原料、设备和环境中。根据其对发酵环境(如乙醇体积分数、糖度、酸度)的适应能力,大致可分为发酵型和氧化发酵型[8]。在果酒研究中,一些具有优良特性的非酿酒酵母属和种被广泛关注和应用。
1.1 Pichia
Pichia中的克鲁维毕赤酵母(P. kluyveri)和库德里阿兹威氏毕赤酵母(P. kudriavzevii)是研究较多的菌种。P. kluyveri被证实具有良好的胁迫耐受性(如高糖、低pH值、高乙醇)和增香潜力,与酿酒酵母共发酵时,能显著提高葡萄酒中酯类(如乙酸异戊酯、己酸乙酯)和高级醇(如异戊醇、辛醇)含量,从而赋予葡萄酒更浓郁的果香和花香风味[9]。此外,P. kluyveri还能产生β-葡萄糖苷酶和酯酶,有助于释放果实中潜藏的香气前体物质[10]。而P. kudriavzevii则在降酸方面表现突出,Chen Yu等[11]研究表明,筛选出的2株P. kudriavzevii能有效降低果酒的柠檬酸含量,在与酿酒酵母共发酵时能使柠檬酸含量降低12%~25%。
1.2 Torulaspora
德尔布有孢圆酵母(T. delbrueckii)是目前应用最广泛、商业化程度最高的非酿酒酵母之一[12]。其可耐受10%乙醇,能在发酵中后期存活[13]。此外,T. delbrueckii在发酵过程中产生的酸较少,尤其是乙酸含量极低,这种特性使其酿出的酒体口感纯净,且不易产生刺鼻的“醋味”。研究表明,在草莓酒[14]和多种葡萄酒[15]发酵实验中,T. delbrueckii与酿酒酵母混合发酵均能显著降低乙醇含量并增加甘油含量,从而使口感更圆润、饱满。同时,它还能通过释放萜类化合物(如芳樟醇、香茅醇等C10单萜)以及C6化合物(如1-己醇、己醛等)增强果酒品种香气。
1.3 Metschnikowia
美极梅奇酵母(M. pulcherrima)是一种具有优良酿造特性的Metschnikowia属非酿酒酵母,具有较强的产酯酶及产β-葡萄糖苷酶等的能力,有助于风味物质的释放,丰富果酒香气[16]。此外,这种酵母还具有较强的生物保护能力,能通过产生色素螯合环境中的铁离子,从而抑制其他微生物特别是一些腐败菌的生长,可作为替代SO2的天然生物保护剂[17]。Liu Chunfeng等[18]研究发现,在黄桃果酒酿造方面,M. pulcherrima与酿酒酵母共同发酵能够对甘油和山梨醇的生成产生积极影响。Muñoz-Redondo等[19]研究发现,M. pulcherrima与T. delbrueckii顺序接种发酵桃红葡萄酒时,能够增强酯类特征、降低乙醛含量、增加花青素和单宁含量。
1.4 Hanseniaspora
Hanseniaspora,尤其是葡萄汁有孢汉逊酵母(H. uvarum,其无性型为柠檬形克勒克酵母(Kloeckera apiculata)),是葡萄及多种水果表皮上的优势菌属,通常在自然发酵早期占据主导地位。其以高产乙酸乙酯而闻名,能够赋予果酒浓郁的热带水果香气。然而,该物质过量生成可能产生令人不悦的“指甲油味”或溶剂味,因此对其生长和代谢的精细调控至关重要[20]。在柑橘酒发酵中,K. apiculata与酿酒酵母共发酵策略被证实能有效降低总酸和乙醇含量,同时增加苯乙醇和多种酯类的含量,进而提升柑橘酒香气复杂性和愉悦度[21]。在葡萄酒发酵中,Zhang Zhong等[22] 将H. uvarum QTX-C10与酿酒酵母以1∶1共发酵,能将‘赤霞珠’葡萄酒中的乙酯含量提高48.54%~59.55%,而‘霞多丽’葡萄酒中的乙酯含量则增加96.94%~110.92%,显著改善了葡萄酒的香气特征。
1.5 Schizosaccharomyces
Schizosaccharomyces能进行苹果酸-乙醇发酵,该途径是该属酵母标志性代谢特征。粟酒裂殖酵母(S. pombe) 几乎可以将苹果酸完全转化为乙醇和二氧化碳,是降解苹果酸的理想菌株[23-24]。Del-Bosque等[25]报道,使用 S. pombe进行发酵可以降低葡萄酒中的葡萄糖酸含量。此外,S. pombe具有较高的甘油和吡喃花青素前体(丙酮酸和乙醛)合成能力[26-27]。
1.6 其他重要菌属/种
耐热拉钱斯氏酵母(L. thermotolerans)能够在发酵过程中产生L-乳酸,从而在无需添加乳酸菌的情况下提高低酸葡萄酒的总酸度,从而平衡口感,并有助于稳定色泽[28]。此外,该菌还能促进2-苯乙醇生成,这种具有玫瑰花香特征的挥发性芳香物质对葡萄酒香气质量具有积极影响[29]。Zygosaccharomyces包括鲁氏接合酵母(Z. rouxii)和拜耳接合酵母(Z. bailii)。在猕猴桃酒顺序发酵实验中,Z. rouxii可通过提高多酚及VC含量增强其抗氧化能力;而Z. bailii更倾向于促进乙酸乙酯、丁酸乙酯等酯类物质生成,使酒体呈现更为浓郁的热带水果香气[30]。此外,泽普林斯塔莫酵母(S. bacillaris)是嗜果糖酵母,产酸量低,能产生大量的甘油和多糖,对改善酒体结构和口感有积极作用[31]。
主要非酿酒酵母种类及其酿造特性如表1所示,不同属种的非酿酒酵母在果酒酿造中各具其代谢优势与酿造特性。Torulaspora以低产酸与高产甘油为典型特征,可有效改善酒体口感的圆润度与饱满感;Metschnikowia不仅具备释放香气前体物质的能力,同时兼具生物防控潜力;Hanseniaspora在乙酸酯类芳香化合物的合成方面表现突出,但其应用需严格控制发酵条件,以避免挥发酸含量超标;Schizosaccharomyces则凭借独特的苹果酸-乙醇代谢途径,为高酸度葡萄汁的降酸处理提供了创新选择。未来,菌株筛选策略不应局限于单一指标优化,而应建立基于“功能互补”的系统性评估体系,综合考察不同非酿酒酵母在共发酵体系中的代谢协同效应,进而构建最优的混菌组合策略,以实现果酒品质的精准调控与风味的多样化发展。
表1 主要非酿酒酵母的种类及其果酒酿造特性
Table1 Major non-Saccharomyces yeast species and their fermentation performance during fruit wine brewing
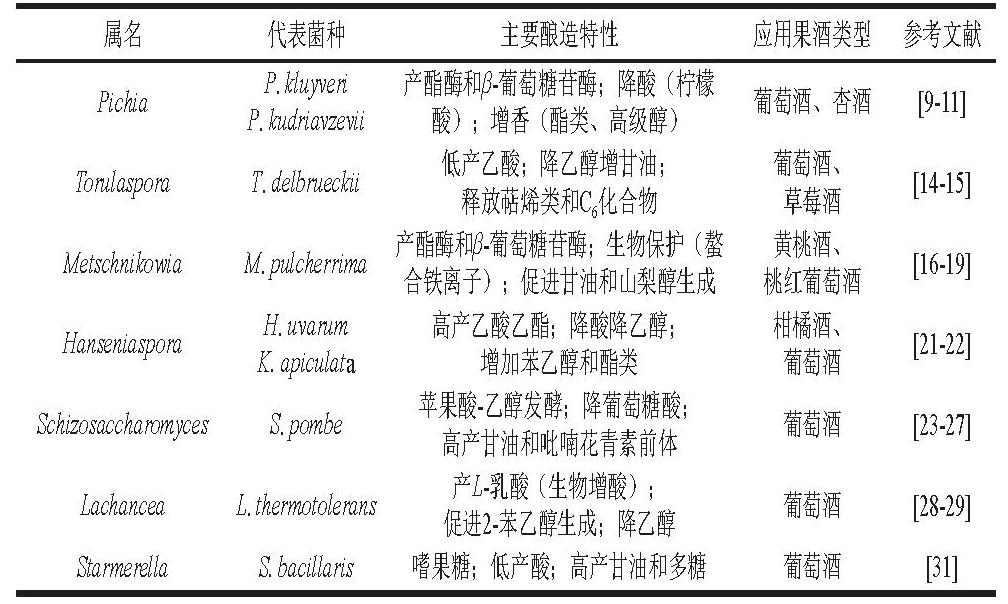
P. kudriavzevii酸);增香(酯类、高级醇)葡萄酒、杏酒[9-11]释放萜烯类和C6化合物草莓酒[14-15]桃红葡萄酒[16-19]合铁离子);促进甘油和山梨醇生成HanseniasporaH. uvarum高产乙酸乙酯;降酸降乙醇;柑橘酒、K. apiculata增加苯乙醇和酯类葡萄酒[21-22]高产甘油和吡喃花青素前体葡萄酒[23-27]促进2-苯乙醇生成;降乙醇葡萄酒[28-29]属名代表菌种主要酿造特性应用果酒类型参考文献PichiaP. kluyveri产酯酶和β-葡萄糖苷酶;降酸(柠檬TorulasporaT. delbrueckii低产乙酸;降乙醇增甘油;葡萄酒、MetschnikowiaM. pulcherrima产酯酶和β-葡萄糖苷酶;生物保护(螯黄桃酒、SchizosaccharomycesS. pombe苹果酸-乙醇发酵;降葡萄糖酸;LachanceaL. thermotolerans产L-乳酸(生物增酸);StarmerellaS. bacillaris嗜果糖;低产酸;高产甘油和多糖葡萄酒[31]
2 非酿酒酵母在果酒品质改良中的作用机制
非酿酒酵母通过其独特的代谢特性,可从香气、口感及色泽等多方面对果酒品质产生深层次影响。这些影响主要通过与酿酒酵母的混合发酵实现,菌株间的相互作用使最终产品的化学成分和感官特性远比单一发酵更具有优势。非酿酒酵母在果酒品质改良中的作用机制如图1所示。
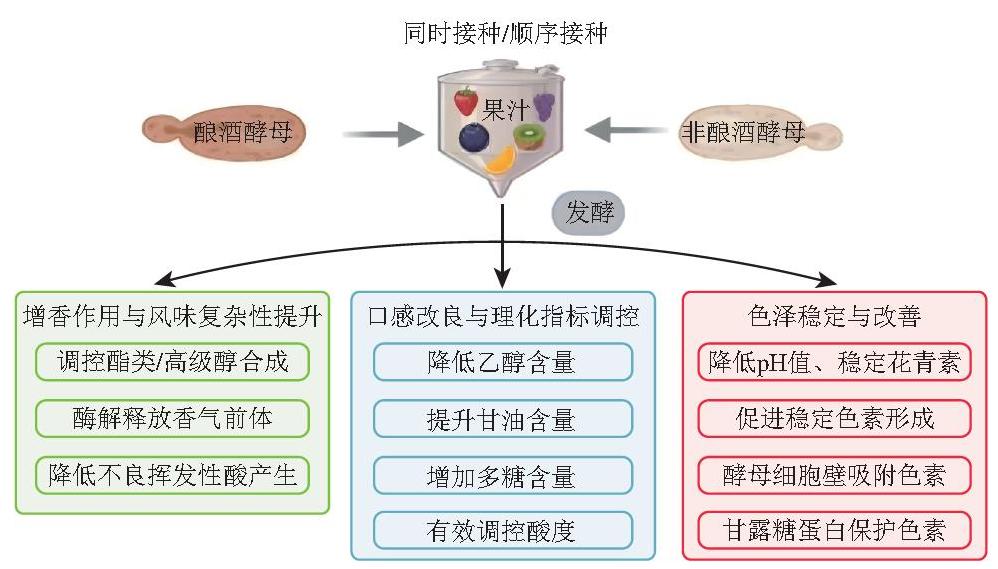
图1 非酿酒酵母在果酒品质改良中的作用机制
Fig.1 Mechanisms by which non-Saccharomyces yeasts improve the quality of fruit wines
2.1 增香作用与风味复杂性提升
香气是评价果酒品质的核心指标之一,非酿酒酵母可通过多条途径实现香气调控与增香效果。
2.1.1 调控酯类和高级醇合成
非酿酒酵母可通过高效的乙酰转移酶合成酯类,并利用特定的酯酶活性保留香气;其氨基酸代谢途径进一步调控高级醇生成,从而平衡酯和醇比例,优化果酒风味[32]。酯类是赋予果酒花香、果香味的关键物质,与酿酒酵母相比,许多非酿酒酵母菌株往往拥有独特的乙酰转移酶基因,能产生更高浓度和更多种类的酯类化合物[7]。在一项柑橘酒研究中,使用M. pulcherrima和K. apiculata与酿酒酵母进行混合发酵,总酯含量分别提升38%~41%和14%~41%。其中,对香气贡献显著的辛酸乙酯(菠萝、梨香)、乙酸乙酯(果香)和苯乙酸乙酯(奶油香)含量均显著增加[21]。
高级醇是构成酒体复杂性的重要成分,适量时可赋予愉悦香气(如苯乙醇的玫瑰香),但过量则易产生刺激性气味。非酿酒酵母能够有效调节高级醇组成。上述对柑橘酒的研究发现,混合发酵在抑制不良高级醇异丁醇(植物生青味)生成的同时,显著促进苯乙醇合成,使其含量提高36%~94%,这种调控作用可能与非酿酒酵母改变了氨基酸代谢途径有关[21]。
2.1.2 酶解释放潜藏的香气前体
许多水果的特征香气物质(如萜烯类、C13-降异戊二烯和部分硫醇)在果汁中以无味的糖苷形式存在。非酿酒酵母的一大优势是能分泌多种胞外水解酶,特别是 β-葡萄糖苷酶,这种酶能够切断糖苷键,将这些潜藏的香气前体物释放出来,从而极大地增强果酒的品种香气和典型性[33-34]。研究发现,Pichia、Hansenula和伊萨酵母属(Issatchenkia)等属的多个菌株都具有较强的β-葡萄糖苷酶活性[31]。Qin Tao等[35]从宁夏贺兰山地区的葡萄园中分离得到的土壤伊萨酵母(I. terricola)SLY-4菌株可合成活性达98.51 U/L的β-葡萄糖苷酶,使用该菌株发酵葡萄酒能够显著弱化青草气息,同时提升酒体果香和花香。
2.1.3 减少不良挥发性酸产生
乙酸是评价果酒质量的重要指标,其含量过高会带来尖酸感和不愉快醋味[36]。很多非酿酒酵母(如部分假丝酵母)比酿酒酵母更适应高渗透压环境,其细胞膜通透性比酿酒酵母更低。在发酵过程中,酿酒酵母会因乙醇应激损伤酵母细胞膜和线粒体,乙酸以“溢出”形式大量释放;而非酿酒酵母则可通过维持膜完整性直接抑制这一过程,从而降低挥发性酸产量[37]。此外,部分非酿酒酵母(如巴克毕赤酵母(P. barkeri)S29[38])与酿酒酵母混合发酵时,葡萄酒醋酸含量较酿酒酵母单一发酵降低65%~73%;另有部分非酿酒酵母参与发酵后,乳酸含量高于酿酒酵母单一发酵体系[39]。
由此可见,非酿酒酵母的增香作用是一个多维度、多层次的调控过程,涉及酯类与高级醇的合成积累、糖苷态香气前体的酶解释放及挥发性酸的有效控制。这3类机制在发酵体系中相互交织、协同作用:一方面,β-葡萄糖苷酶释放的糖苷配基可作为香气化合物直接发挥作用,同时为发酵代谢网络提供额外碳源;另一方面,挥发性酸含量的降低不仅改善酒体平衡,也利于酯类等香气物质的感官感知。未来研究应进一步揭示这些机制之间的内在联系,以实现对果酒香气品质的系统性优化。
2.2 口感改良与理化指标调控
非酿酒酵母不仅能丰富香气,还能通过改变酒体的化学成分优化口感,使其更加平衡、饱满和圆润。
2.2.1 降低乙醇含量
非酿酒酵母可通过多种代谢途径降低果酒乙醇含量,其核心机制是改变糖代谢的“去向”[40]。一类典型机制是利用部分Crabtree阴性的非酿酒酵母(如M. pulcherrima)在有氧或受控供氧条件下加强糖类的呼吸代谢,将葡萄汁中的葡萄糖、果糖更多地完全氧化为二氧化碳和水,而非通过糖酵解-乙醇发酵途径生成乙醇,从而在顺序或混合发酵中实现约0.5%~1.5%的乙醇含量降低[20]。另一重要机制为碳代谢流向非乙醇产物的重分配。非酿酒酵母通常将糖分代谢为甘油、乳酸、醛类或多糖等化合物,而非仅转化为乙醇[41]。通过增加上述副产物的合成,非酿酒酵母将原本用于乙醇合成的碳流分走,从而降低单位糖转化为乙醇的效率。如L. thermotolerans通过乳酸脱氢酶将糖转化为L-乳酸,不仅能降低乙醇含量,还能调节pH值[42]。
2.2.2 提升甘油含量
甘油能够提升酒体的黏稠度、圆润感和甜润感。相比酿酒酵母,非酿酒酵母(如星形假丝酵母(Candida stellata)和L. thermotolerans)对高渗透压的耐受性较弱,在高糖环境会加强甘油-3-磷酸脱氢酶活性,将糖酵解中间产物二羟丙酮磷酸还原为甘油-3-磷酸,随后脱磷酸生成甘油,以维持细胞内氧化还原平衡并保护细胞[43-44]。这种途径优先利用果糖作为底物,与酿酒酵母混合发酵时可显著提高甘油产量,缩短发酵时间并降低残糖。
2.2.3 增加多糖含量
多糖有助于增强酒体的黏性和饱满感,同时柔化涩味[45]。非酿酒酵母在自溶过程中会释放甘露糖蛋白,这是一种重要的酵母多糖[46]。甘露糖蛋白不仅能改善酒的口感和结构,而且能与多酚物质相互作用,稳定色泽和单宁,并减少蛋白质沉淀。研究表明,包括T. delbrueckii、发酵毕赤酵母(P. fermentans)、S. pombe、M. pulcherrima、L. thermotolerans和异常维克汉姆酵母(Wickerhamomyces anomalus)在内的多种非酿酒酵母都能够产生并释放甘露糖蛋白,其含量和结构因菌株而异,甘露糖蛋白的功能与其结构直接相关:高支链度的甘露糖蛋白在稳定酒石酸盐结晶方面更有效,因为其空间位阻效应更强;富含磷酸基团的组分在螯合金属离子、抑制氧化褐变方面更具优势;而特定分子质量区间的组分与单宁的结合亲和力更高,对涩感的柔化效果更突出,为精细调控酒体提供可能[47-49]。因此,真正值得关注的并非“多糖含量更高”,而应是“多糖结构谱系更丰富”。非酿酒酵母引入的甘露糖蛋白在分子结构上可实现与酿酒酵母相关组分的功能互补。例如,T. delbrueckii和P. fermentans释放的特定分子质量组分对颜色稳定性的贡献可能强于酿酒酵母来源多糖。将多种甘露糖蛋白视为一个可按需调配的“结构工具箱”,根据目标酒体的稳定性缺陷(如酒石析出、色素沉降、单宁过涩)选择相应的产多糖酵母,将比笼统追求多糖总量更具靶向性。
2.2.4 有效调控酸度
酸度对果酒品质的影响至关重要,适量有机酸既赋予果酒柔顺口感,又能发挥抑菌作用[50]。非酿酒酵母可通过“生物降酸”和“生物增酸”2条路径改变有机酸种类和含量,从而有效调节果酒中酸度与pH值[51]。 对于高酸水果,可利用S. pombe混合发酵,使苹果酸含量降低60%~100%;P. kudriavzevii能利用苹果酸,将其转化为乙醇和二氧化碳,实现生物降酸,使果酒口感变得柔和[51-52]。相反,对于低酸水果,可选用 L. thermotolerans,其能够通过乳酸脱氢酶将葡萄糖代谢为乳酸,从而提升总酸,同时略降低乙醇体积分数(降幅0.2%~0.4%),平衡酒体口感[53]。部分非酿酒酵母(如T. delbrueckii和M. pulcherrima)可通过改变琥珀酸、苹果酸和乙酸等有机酸比例间接影响感官酸度与结构感,而不一定大幅度改变总酸,从而在酸碱感知之外影响酒体的“矿物感”和“立体感”[54]。同时,它们还能通过控制乙酸生成或再利用减少刺鼻性挥发酸含量,改善高酸或平衡果酒的整体风味。
综合分析,非酿酒酵母对果酒口感的改良本质在于碳代谢流向的调控与重分配:将碳流从乙醇合成转向甘油、乳酸、多糖等赋予酒体饱满感和复杂性的产物。值得注意的是,这种“碳流重定向”效应的强度高度依赖于发酵条件(尤其是溶氧水平与接种策略),因此在实际应用中,需要根据目标果酒的风格定位,有针对性地选择菌株并优化工艺参数,而非简单地将某株非酿酒酵母视为“降醇”或“增酸”的万能工具。
2.3 色泽稳定与改善
色泽往往是消费者对果酒的第一印象,其稳定性直接关乎品质优劣。非酿酒酵母可通过调控pH值、促进稳定花青素衍生物形成、增强聚合色素及释放保护剂等多重途径,有效改善果酒色泽与持久性。一方面,非酿酒酵母产生有机酸,降低果酒pH值,从而间接增强花青素的稳定性[29];另一方面,非酿酒酵母通过产生乙醛、丙酮酸等代谢物,促进吡喃花青素(如Vitisin A和Vitisin B)、乙烯酚加合物等稳定色素生成,这些色素对pH值变化和SO2漂白具有更强的抵抗力[55]。研究表明,S. pombe是高产丙酮酸菌株,能显著促进Vitisin A形成,从而有效稳定和提升酒体红色[56]。其次,非酿酒酵母细胞壁对色素分子的吸附作用也是影响色泽保持的重要因素;由于不同菌株的细胞壁结构和表面电荷不同,其对色素的吸附能力也各不相同。研究指出,M. pulcherrima和S. pombe的酒泥对花青素吸附少,有助于减少色度 损失[57]。此外,部分非酿酒酵母释放的甘露糖蛋白可与花色苷及单宁形成复合物,通过空间位阻效应保护色素免于氧化和沉淀,从而长期稳定酒体色泽[58]。在柑橘酒研究中,M. pulcherrima CICC 32343和酿酒酵母F15混合发酵可显著提高酒体色度,使其呈现更受欢迎的琥珀色,并在感官评价中获得较高的颜色偏好得分[21]。
总体而言,非酿酒酵母对果酒色泽的影响可归纳为“降pH值稳色、促聚合固色、少吸附保色、多糖护色” 4条路径。当前研究多聚焦于单一途径的描述,而实际发酵中这4条路径往往同时发生且相互影响,如pH值的降低既直接增强花青素稳定性,又间接影响聚合色素的形成速率。未来需要更多定量研究以评估各路径的相对贡献,以指导色泽调控的精准化。
3 非酿酒酵母与酿酒酵母的相互作用及混合发酵策略
非酿酒酵母的酿造优势主要通过其与酿酒酵母的混合发酵实现。在混合发酵体系中,不同酵母菌种间存在复杂的相互作用,既影响酵母生长,又调节次级代谢产物生成。这些相互作用包括营养竞争(如对氮源、碳源的争夺)、接触依赖性抑制(物理接触诱导的生长抑制)、代谢产物交叉影响(如乙醇、中链脂肪酸、抗菌肽等)以及信号分子介导的种间通讯等机制[59-61]。近年研究还发现,细胞外囊泡、挥发性分子和可溶性因子也可能参与酵母间的交流与互作调控。以上机制共同构成一个超越传统营养竞争范畴的多维互作网络[7]。理解并善用这些相互作用,选择合适的发酵策略,是成功应用非酿酒酵母的关键。
3.1 菌株间的相互作用
非酿酒酵母与酿酒酵母之间的菌株互作形式多样,可从营养竞争、物理接触依赖性抑制、代谢产物交叉影响及信号分子介导的通讯4个层面加以解析。
3.1.1 营养竞争
营养竞争是混合发酵体系中最基本的互作形式。一些非酿酒酵母如H. uvarum和T. delbrueckii通常优先利用氮源和葡萄糖,导致后期酿酒酵母氮饥饿而延缓发酵[62-63]。Rollero等[64]利用合成葡萄汁培养基系统研究不同酵母间的营养竞争,发现非酿酒酵母对氨基酸和铵盐的偏好存在显著的种间差异,这种差异直接影响酿酒酵母的发酵动力学。Roca-Mesa等[62]进一步指出,不同非酿酒酵母对氮源的种类和浓度需求不同,合理的营养补充策略可在保证非酿酒酵母发挥代谢优势的同时,避免酿酒酵母因营养匮乏而发酵停滞。
3.1.2 物理接触依赖性抑制
物理接触依赖性抑制是近年来被揭示的一种重要微生物互作机制。酿酒酵母通过FLO基因表达诱导细胞共絮凝,非酿酒酵母如H. uvarum和I. terricola可能被裹挟进入絮团并随之沉降,进而限制其浮游生长并改变种群结构和演替动态。Rossouw等[65]将这种共絮凝现象定义为调控酵母菌种间种群动态的新机制,并指出该过程依赖于细胞表面黏附蛋白的特异性识别。这种接触依赖性抑制的强弱因菌株组合而异。Wang Chunxiao等[66]研究证实,非酿酒酵母与酿酒酵母之间的互作具有种特异性和株特异性,不同组合表现出从强烈抑制到协同促进的广泛谱系。
3.1.3 代谢产物交叉影响
代谢产物交叉影响是菌间互作中最为复杂的层面。一方面,酿酒酵母通过分泌SO2、乙醇和抗菌肽抑制非酿酒酵母[52];另一方面,部分非酿酒酵母的蛋白酶(如MpAPr1)可水解果汁中的蛋白质,释放可被酿酒酵母利用的氨基酸,从而促进其生长和发酵[67]。转录组学研究显示,在与T. delbrueckii共培养时,酿酒酵母会提前上调糖和氮代谢相关通路,包括糖酵解、磷酸戊糖途径、三羧酸循环和氨基酸代谢,表现出更强的代谢活性[68]。Curiel等[69]的研究进一步揭示,不同非酿酒酵母种均能刺激酿酒酵母在混合培养中的营养消耗,但这种刺激效应的强度和方向因菌种组合而异。此外,非酿酒酵母产生的甘油、多糖等代谢产物可改善发酵液的物理化学环境,间接促进酿酒酵母的发酵性能[70]。
3.1.4 信号分子介导的通讯
除上述直接的物理和化学互作外,酵母间存在通过信号分子介导的间接通讯机制。芳香醇类(如酪醇、苯乙醇)被证实可作为群体感应样分子,参与酵母菌种间的信号传递[71]。此外,乙醇和乙酸等挥发性代谢物不仅具有直接的抑菌作用,还可能作为信号分子调控基因表达,影响菌株的生长速率和代谢模式。Tofalo等[70]研究指出,非酿酒酵母与酿酒酵母之间的信号交流对起泡酒传统发酵中微生物群落的演替具有重要调控作用。然而,目前对酵母间信号分子通讯的认知仍处于起步阶段,相关分子机制尚待深入解析。
综合现有文献表明,非酿酒酵母与酿酒酵母之间的菌间互作呈现多层次的动态特征:发酵早期存在营养竞争与信号交流现象,乙酸与乙醇等挥发性代谢物不仅具有抑菌活性,低浓度下还可作为信号分子调控基因表达,影响生长速率与代谢模式;发酵中后期涉及代谢产物介导的抑制与适应。然而,当前酵母间信号分子通讯的分子机制及时空动态特征研究仍处于起步阶段,相关认知部分来源于现象描述。未来建议借助多组学联用技术和单细胞分析方法解析互作机制,为混合发酵精准设计提供理论依据。
3.2 混合发酵策略
混合发酵策略是发挥非酿酒酵母优势的关键,主要包括同时接种和顺序接种2种方式。2种混合发酵策略的特点系统比较见表2。
表2 不同非酿酒酵母与酿酒酵母混合发酵策略比较
Table2 Comparison of mixed fermentation strategies for various non-Saccharomyces yeasts combined with S. cerevisiae
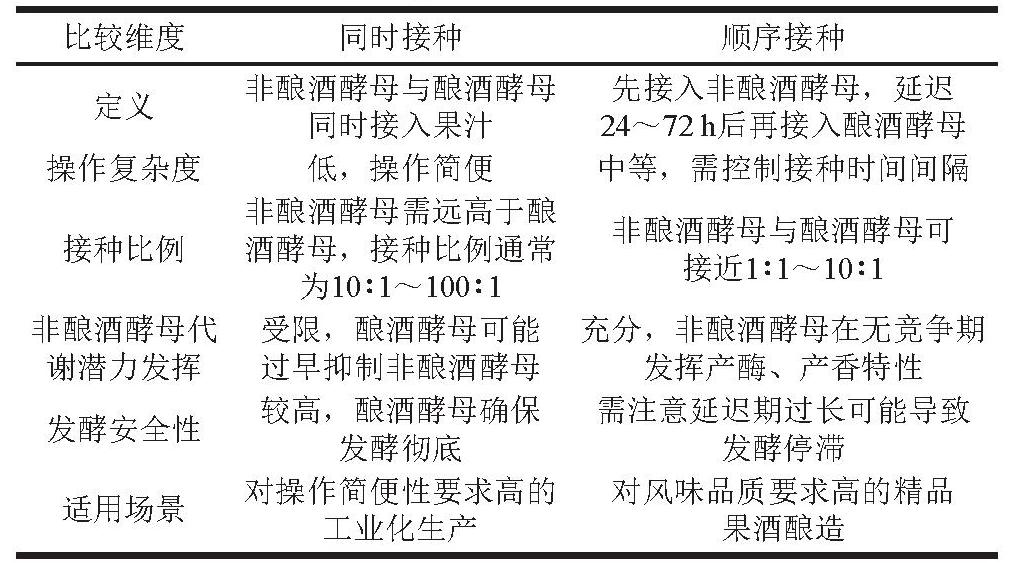
同时接入果汁24~72 h后再接入酿酒酵母操作复杂度低,操作简便中等,需控制接种时间间隔接种比例酒酵母,接种比例通常非酿酒酵母与酿酒酵母可非酿酒酵母代受限,酿酒酵母可能充分,非酿酒酵母在无竞争期谢潜力发挥过早抑制非酿酒酵母发挥产酶、产香特性发酵安全性较高,酿酒酵母确保需注意延迟期过长可能导致对风味品质要求高的精品工业化生产果酒酿造比较维度同时接种顺序接种定义非酿酒酵母与酿酒酵母先接入非酿酒酵母,延迟非酿酒酵母需远高于酿为10∶1~100∶1接近1∶1~10∶1发酵彻底发酵停滞适用场景对操作简便性要求高的
同时接种是指发酵开始时非酿酒酵母和酿酒酵母同时接入果汁,其优点是操作简便。然而,由于酿酒酵母通常具有更强的生长优势和乙醇耐受性,可能会过早地抑制非酿酒酵母生长,使其无法充分发挥代谢潜力。因此,需要精确控制2种酵母的接种比例,通常非酿酒酵母的接种量要远高于酿酒酵母(如10∶1~100∶1),以保证其在发酵初期占据优势[72]。
顺序接种是目前更常用且被认为效果更好的策略。该方法先接种非酿酒酵母,让其在无竞争的环境下生长一段时间(通常为24~72 h),充分发挥其产酶、产香等特性,然后再接种酿酒酵母,以完成主要发酵过程[73]。这种方法可以最大化非酿酒酵母的积极作用,同时利用酿酒酵母强大的发酵能力确保发酵彻底,避免残糖和发酵停滞风险[74]。在威代尔冰酒研究中,与同时接种相比,顺序接种H. vineae和酿酒酵母可获得更高的香气多样性,产生更浓郁的果香、花香和甜香[75-76]。Sun Wangsheng等[77]在猕猴桃酒、周阳子[78]在桑葚酒研究中也采用类似混菌发酵技术,均取得良好的增香提质效果。
近年来有研究探索多菌种顺序接种策略,即依次接入2种或多种非酿酒酵母后再接入酿酒酵母,以进一步丰富发酵过程中的代谢多样性。如Li Linbo等[79]采用T. delbrueckii和H. uvarum顺序接种后再接入酿酒酵母的策略,在长相思葡萄酒中取得优于双菌发酵的增香效果。然而,多菌种体系的互作更为复杂,工艺优化难度也随之增加,相关研究仍处于初步探索阶段。
4 结 语
非酿酒酵母的应用为现代果酒酿造技术带来革命性突破。通过与酿酒酵母的协同发酵,非酿酒酵母能够显著提升果酒的香气复杂性、改善口感、稳定色泽并调控乙醇含量,有效解决了传统单一酵母发酵带来的产品同质化问题,满足了市场对高品质、个性化果酒的需求。从Pichia的产酶增香,到Torulaspora的降酸提醇,再到Metschnikowia的生物保护,不同种类的非酿酒酵母展现出多样化的功能和巨大的应用潜力。
然而,非酿酒酵母的产业化应用仍面临一些挑战。首先,许多非酿酒酵母的乙醇耐受性较低,在发酵后期易发生死亡,若工艺控制不当可能导致发酵不彻底。其次,菌株间的相互作用机制复杂,如何选择最佳的菌株组合和接种策略以达到预期的效果,仍需大量的实验探索。此外,特别是菌间互作分子机制,包括营养竞争的定量解析、接触依赖性抑制的黏附蛋白识别机制、代谢产物交叉影响的信号转导通路以及群体感应样分子的功能验证,均有待深入研究。再次,非酿酒酵母的生长和代谢受温度、pH值、营养成分等多种因素影响,其在不同水果基质中的表现可能存在差异,需要针对特定果酒进行工艺优化。最后,食品安全问题也不容忽视,必须确保所用菌株不会产生任何有害代谢物。
展望未来,非酿酒酵母在果酒领域的研究将向更深、更广的方向拓展:1)本土菌种资源挖掘与高通量筛选:深入挖掘不同地域、不同水果来源的本土非酿酒酵母资源,利用现代微生物学和基因组学技术建立高效的筛选平台,发掘具有特定优良性状(如强产香、高效降酸、耐胁迫等)的新菌株[80]。2)代谢机制与互作机理的深度解析:借助代谢组学、转录组学、蛋白质组学等多组学联用技术,深度揭示非酿酒酵母关键风味物质的合成途径及其调控网络,阐释其与酿酒酵母在混合发酵体系中的分子互作机制,特别是信号分子介导的菌间通讯机制和物理接触依赖性抑制的分子基础,为精准调控发酵过程奠定理论基石。3)多菌种协同发酵体系的搭建:从“双菌发酵”迈向“多菌复合发酵”,探究将2种或多种非酿酒酵母与酿酒酵母,乃至与乳酸菌等其他微生物加以组合,搭建更为复杂的微生态系统,从而模拟顶级自然发酵的复杂性,创造出新的风味特征。4)发酵工艺的智能化与精准化管控:融合在线监测技术与过程控制模型,研发智能化的混合发酵工艺,实时调节温度、溶氧、营养等关键参数,达成对酵母生长与代谢的精准把控,保障产品质量的稳定性与一致性。
总之,随着研究的逐步深入以及技术的不断革新,非酿酒酵母必将在促进果酒产业的创新、多元化和高质量发展进程中发挥愈发重要的作用,为全球消费者奉献更多风味独特、品质卓越的果酒佳酿。
[1] 李帆. 山楂酒的研制[D]. 无锡: 江南大学, 2022. DOI:10.27169/d.cnki.gwqgu.2022.000894.
[2] 焦行行, 马凤丽, 徐佳林, 等. 酿酒酵母和非酿酒酵母发酵研究进展[J].酿酒科技, 2026(1): 97-100; 106. DOI:10.13746/j.njkj.2024309.
[3] 谭凤玲, 王宝石, 胡培霞, 等. 非酿酒酵母在葡萄酒混菌发酵中的应用及其挑战[J]. 食品与发酵工业, 2020, 46(22): 282-286.DOI:10.13995/j.cnki.11-1802/ts.024520.
[4] Fazio N A, Pino A, Foti P, et al. Screening and characterization of indigenous Saccharomyces cerevisiae and non-Saccharomyces yeasts isolated from Sicilian vineyards[J]. Food Bioscience, 2024, 62:105282. DOI:10.1016/j.fbio.2024.105282.
[5] 边名鸿, 许强, 周阳子, 等. 桑葚酒用非酿酒酵母的筛选及特性研究[J]. 中国酿造, 2021, 40(5): 70-75. DOI:10.11882/j.issn.0254-5071.2021.05.013.
[6] Almeida Dos Anjos V H, De Brito Araújo Carvalho A J, Da Conceição Prudêncio Dutra M, et al. Effect of commercial Saccharomyces cerevisiae and non-Saccharomyces yeasts on the chemical composition and bioaccessibility of pineapple wine[J]. Food Research International,2024, 194: 114888. DOI:10.1016/j.foodres.2024.114888.
[7] 石金琴, 刘新宇, 海超, 等. 非酿酒酵母混合发酵对果酒增香的研究进展[J]. 中国酿造, 2025, 44(7): 20-25. DOI:10.11882/j.issn.0254-5071.2025.07.003.
[8] 王春晓, 俞俊竹, 周文亚, 等. 非酿酒酵母属酵母的葡萄酒发酵应用研究进展[J]. 中国农业科学, 2023, 56(3): 529-548. DOI:10.3864/j.issn.0578-1752.2023.03.011.
[9] 张文静, 杨诗妮, 杜爽, 等. 本土毕赤克鲁维酵母与酿酒酵母混合发酵葡萄酒的增香潜力分析[J]. 食品科学, 2020, 41(12): 84-90.DOI:10.7506/spkx1002-6630-20190418-232.
[10] Fazio N A, Russo N, Foti P, et al. Inside current winemaking challenges: exploiting the potential of conventional and unconventional yeasts[J]. Microorganisms, 2023, 11(5): 1338. DOI:10.3390/microorganisms11051338.
[11] Chen Yu, Lei Xingmeng, Sun Luxing, et al. Exploring the potentials of indigenous Saccharomyces cerevisiae and Pichia kudriavzevii for enhancing flavour and aromatic characteristics in apricot wines[J]. Food Chemistry: X, 2025, 25: 102178. DOI:10.1016/j.fochx.2025.102178.
[12] 黄绿红, 罗艺璇, 唐琪, 等. 戴尔有孢圆酵母与酿酒酵母混合发酵对黄桃酒香气的影响[J]. 食品科学, 2025, 46(20): 250-257.DOI:10.7506/spkx1002-6630-20250517-109.
[13] Martínez A, Molina F, Hernández L M, et al. Improving wine fermentation efficiency of Torulaspora delbrueckii by increasing the ploidy of yeast inocula[J]. International Journal of Food Microbiology,2024, 425: 110894. DOI:10.1016/j.ijfoodmicro.2024.110894.
[14] Zhang Haiwei, Li Jiaye, Xu Xinying, et al. Volatile compositions and sensorial properties of strawberry fruit wines fermented with Torulaspora delbrueckii and Saccharomyces cerevisiae in sequential and simultaneous inoculations[J]. European Food Research and Technology, 2024, 250(11): 2863-2875. DOI:10.1007/s00217-024-04581-1.
[15] Cheng Yichao, Geng Shijin, Zhang Jin, et al. A comprehensive study on fermentation and aroma contributions of Torulaspora delbrueckii in diverse wine varieties: insights from pure and co-fermentation studies[J]. Food Research International, 2025, 199: 115340.DOI:10.1016/j.foodres.2024.115340.
[16] 汤楚琦, 顾秋亚, 周剑丽, 等. 美极梅奇酵母与酿酒酵母混合发酵对蓝莓酒品质的影响[J]. 食品与发酵工业, 2024, 50(2): 138-144.DOI:10.13995/j.cnki.11-1802/ts.035413.
[17] Bustamante M, Giménez P, Just-Borras A, et al. Bioprotection using a selected strain of Metschnikowia pulcherrima as an alternative to SO2 for preventing the browning of white grape must[J]. IVES Technical Reviews: Vine and Wine, 2025. DOI:10.20870/ives-tr.2025.9236.
[18] Liu Chunfeng, Li Mingxia, Ren Tao, et al. Effect of Saccharomyces cerevisiae and non-Saccharomyces strains on alcoholic fermentation behavior and aroma profile of yellow-fleshed peach wine[J]. LWT-Food Science and Technology, 2022, 155: 112993. DOI:10.1016/j.lwt.2021.112993.
[19] Muñoz-Redondo J M, Puertas B, Cantos-Villar E, et al. Impact of sequential inoculation with the non-Saccharomyces T. delbrueckii and M. pulcherrima combined with Saccharomyces cerevisiae strains on chemicals and sensory profile of rosé wines[J]. Journal of Agricultural and Food Chemistry, 2021, 69(5): 1598-1609. DOI:10.1021/acs.jafc.0c06970.
[20] Ciani M, Morales P, Comitini F, et al. Non-conventional yeast species for lowering ethanol content of wines[J]. Frontiers in Microbiology,2016, 7: 642. DOI:10.3389/fmicb.2016.00642.
[21] Fu Yu, Gao Yueyue, Yang Ming, et al. Effects of non-Saccharomyces yeasts and their pairwise combinations in co-fermentation with Saccharomyces cerevisiae on the quality of Chunjian citrus wine[J].Molecules, 2024, 29(5): 1028. DOI:10.3390/molecules29051028.
[22] Zhang Zhong, Wang Huiqing, Xia Hongchuan, et al. Wine aroma modification by Hanseniaspora uvarum: a multiple-step strategy for screening potential mixed starters[J]. Food Chemistry: X, 2023, 20: 100930. DOI:10.1016/j.fochx.2023.100930.
[23] Vicente J, Kelanne N, Navascués E, et al. Combined use of Schizosaccharomyces pombe and a Lachancea thermotolerans strain with a high malic acid consumption ability for wine production[J]. Fermentation, 2023, 9(2): 165. DOI:10.3390/fermentation9020165.
[24] Lyu Xiaotong, Zhou Yifei, Li Furong, et al. Improving Muscat hamburg wine quality with innovative fermentation strategies using Schizosaccharomyces pombe derived from fermented grains of sauce-flavor Baijiu[J]. Foods, 2024, 13(11): 1648. DOI:10.3390/foods13111648.
[25] Del-Bosque D, Vila-Crespo J, Ruipérez V, et al. Use of Schizosaccharomyces pombe to consume gluconic acid in grape must in unique and sequential inoculations with Saccharomyces cerevisiae[J]. Australian Journal of Grape and Wine Research, 2025, 2025(1): 5569178. DOI:10.1155/ajgw/5569178.
[26] Luo Xiaoqin, Li Yumeng, Zhong Kai, et al. Discovering the effect of co-fermentation involving Saccharomyces cerevisiae and Schizosaccharomyces pombe on the sensory quality improvement of Mandarin wine based on metabolites and transcriptomic profiles[J]. Journal of the Science of Food and Agriculture, 2023, 103(15): 7932-7940. DOI:10.1002/jsfa.12885.
[27] Geng Huiying, Gao Jie, Chai Ruru, et al. Research progress of Schizosaccharomyces pombe in winemaking[J]. Food and Fermentation Industries, 2024, 50(23): 348-357. DOI:10.13995/j.cnki.11-1802/ts.038863.
[28] Vilela A. Lachancea thermotolerans, the non-Saccharomyces yeast that reduces the volatile acidity of wines[J]. Fermentation, 2018, 4(3): 56. DOI:10.3390/fermentation4030056.
[29] 董琦楠, 李莹, 叶冬青, 等. 耐热克鲁维酵母在葡萄酒酿造中的研究进展[J]. 微生物学通报, 2022, 49(5): 1941-1954. DOI:10.13344/j.microbiol.china.210653.
[30] 李世琦. 猕猴桃酒增香型非酿酒酵母筛选及混菌发酵特性研究[D].杨凌: 西北农林科技大学, 2022. DOI:10.27409/d.cnki.gxbnu.2022.001786.
[31] Lemos W J F Jr, Nadai C, Rolle L, et al. Influence of the mannoproteins of different strains of Starmerella bacillaris used in single and sequential fermentations on foamability, tartaric and protein stabilities of wines[J]. OENO One, 2020, 54(2): 2948. DOI:10.20870/oeno-one.2020.54.2.2948.
[32] Seixas I, Santos D, Vasconcelos I, et al. Insights into the transcriptional regulation of poorly characterized alcohol acetyltransferase-encoding genes (HgAATs) shed light into the production of acetate esters in the wine yeast Hanseniaspora guilliermondii[J]. FEMS Yeast Research, 2023, 23: foad021. DOI:10.1093/femsyr/foad021.
[33] 覃秋杏, 韩小雨, 黄卫东, 等. 非酿酒酵母产生的β-葡萄糖苷酶在发酵酒中的应用研究进展[J]. 食品科学, 2022, 43(3): 306-314.DOI:10.7506/spkx1002-6630-20200826-352.
[34] Sui Xiuyu, Wei Ziqian, Lan Yibin, et al. Screening of non-Saccharomyces strains with high β-glucosidase productivity and their effects on wine aroma during co-fermentation with Saccharomyces cerevisiae[J]. Food Bioscience, 2026, 80: 108957. DOI:10.1016/j.fbio.2026.108957.
[35] Qin Tao, Liao Jing, Zheng Yingyuan, et al. Oenological characteristics of four non-Saccharomyces yeast strains with β-glycosidase activity[J]. Frontiers in Microbiology, 2021, 12: 626920. DOI:10.3389/fmicb.2021.626920.
[36] 张晶, 左勇, 谢光杰, 等. 发酵条件对桑椹果酒中挥发酸的影响[J].食品工业科技, 2018, 39(1): 117-121. DOI:10.13386/j.issn1002-0306.2018.01.022.
[37] Chen Yanru, Wan Yin, Cai Wenqin, et al. Transcriptomic and metabonomic to evaluate the effect mechanisms of the growth and aroma-producing of Pichia anomala under ethanol stress[J]. Food Bioscience, 2023, 56: 103176. DOI:10.1016/j.fbio.2023.103176.
[38] Guo Chenchen, Deng Haixia, Li Erhu. Removal of acetic acid in mulberry wine by co-inoculating Saccharomyces cerevisiae with indigenous non-Saccharomyces yeast[J]. Food Bioscience, 2024, 58:103658. DOI:10.1016/j.fbio.2024.103658.
[39] Castrillo D, Blanco P. Characterization of indigenous non-Saccharomyces yeast strains with potential use in winemaking[J].Frontiers in Bioscience-Elite, 2023, 15: 1. DOI:10.31083/j.fbe1501001.
[40] Testa B, Coppola F, Succi M, et al. Biotechnological strategies for ethanol reduction in wine[J]. Fermentation, 2025, 11(3): 159.DOI:10.3390/fermentation11030159.
[41] Afonso S, Teixeira A L, Escobar E, et al. Non-alcoholic wines:sensory pleasantness and health benefits[J]. Foods, 2025, 14(8): 1356.DOI:10.3390/foods14081356.
[42] Snyder E C, Jiranek V, Hranilovic A. Impact of Lachancea thermotolerans strain and lactic acid concentration on Oenococcus oeni and malolactic fermentation in wine[J]. OENO One, 2021, 55(2):365-380. DOI:10.20870/oeno-one.2021.55.2.4657.
[43] Li Ruirui, Liu Yanjun, Zheng Jia, et al. Oenological characteristics of two indigenous Starmerella bacillaris strains isolated from Chinese wine regions[J]. Applied Microbiology and Biotechnology, 2023,107(11): 3717-3727. DOI:10.1007/s00253-023-12502-7.
[44] Maicas S, Mateo J J. The life of Saccharomyces and non-Saccharomyces yeasts in drinking wine[J]. Microorganisms, 2023,11(5): 1178. DOI:10.3390/microorganisms11051178.
[45] 张晴雯, 邓杰, 杨易坤, 等. 非酿酒酵母对葡萄酒风味影响的研究进展[J]. 中国酿造, 2024, 43(3): 13-20. DOI:10.11882/j.issn.0254-5071.2024.03.003.
[46] 战吉宬, 曹梦竹, 游义琳, 等. 非酿酒酵母在葡萄酒酿造中的应用[J].中国农业科学, 2020, 53(19): 4057-4069. DOI:10.3864/j.issn.0578-1752.2020.19.018.
[47] Assunção Bicca S, Sieczkowski N, Schneider R, et al. Exploring the dynamic between yeast mannoproteins structure and wine stability.Part 1: polysaccharides part characteristics of S. cerevisiae and non-Saccharomyces mannoproteins[J]. Carbohydrate Polymers, 2025, 363:123770. DOI:10.1016/j.carbpol.2025.123770.
[48] Vejarano R. Non-Saccharomyces in winemaking: source of mannoproteins, nitrogen, enzymes, and antimicrobial compounds[J].Fermentation, 2020, 6(3): 76. DOI:10.3390/fermentation6030076.
[49] Snyman C, Mekoue Nguela J, Sieczkowski N, et al. Optimised extraction and preliminary characterisation of mannoproteins from non-Saccharomyces wine yeasts[J]. Foods, 2021, 10(5): 924.DOI:10.3390/foods10050924.
[50] Tan Jianxin, Ji Mingyue, Gong Jiangang, et al. The formation of volatiles in fruit wine process and its impact on wine quality[J].Applied Microbiology and Biotechnology, 2024, 108(1): 420.DOI:10.1007/s00253-024-13084-8.
[51] Vilela A. Bio-modulating wine acidity: the role of non-Saccharomyces yeasts[J]. IVES Technical Reviews: Vine and Wine, 2019.DOI:10.20870/ives-tr.2019.2526.
[52] Mazzucco M B, Jovanovich M, Rodríguez M E, et al. Pichia kudriavzevii and Saccharomyces cerevisiae inoculation strategies for cider elaboration from acidic apples[J]. Fermentation, 2025, 11(2): 79. DOI:10.3390/fermentation11020079.
[53] Morata A, Escott C, Loira I, et al. pH control and aroma improvement using the non-Saccharomyces Lachancea thermotolerans and Hanseniaspora spp. yeasts to improve wine freshness in warm areas[M]//Morata A, Loira I, González C. Grapes and wine. London: IntechOpen, 2022. DOI:10.5772/intechopen.100538.
[54] Wang Xin, Fan Guanghe, Peng Yuyan, et al. Mechanisms and effects of non-Saccharomyces yeast fermentation on the aromatic profile of wine[J]. Journal of Food Composition and Analysis, 2023, 124: 105660. DOI:10.1016/j.jfca.2023.105660.
[55] Zhou Jianli, Tang Chuqi, Zou Shuliang, et al. Enhancement of pyranoanthocyanin formation in blueberry wine with non-Saccharomyces yeasts[J]. Food Chemistry, 2024, 438: 137956.DOI:10.1016/j.foodchem.2023.137956.
[56] Cao Ying, Geng Yao, Han Naixuan, et al. Research on organic acids in fruit wine and acid reduction strategies[J]. Science and Technology of Food Industry, 2023, 44(14): 457-464. DOI: 10.13386/j.issn1002-0306.2022090119.
[57] Tofalo R, Suzzi G, Perpetuini G. Discovering the influence of microorganisms on wine color[J]. Frontiers in Microbiology, 2021, 12: 790935. DOI:10.3389/fmicb.2021.790935.
[58] Snyman C, Mekoue Nguela J, Sieczkowski N, et al. Impact of mannoproteins from different yeast species on wine properties[J]. OENO One, 2023, 57(4): 7711. DOI:10.20870/oenoone.2023.57.4.7711.
[59] Vaquero C, Escott C. Non-Saccharomyces yeasts: co-inoculation strategies, nutritional competition and applications in fermented beverages[J]. Trends in Food Science & Technology, 2026, 172: 105714. DOI:10.1016/j.tifs.2026.105714.
[60] Zhang Boqin, Wang Mengbo, Li Wenjie, et al. Unveiling the yeast interaction: insights into the role of Saccharomyces cerevisiae metabolites in regulating Torulaspora delbrueckii aroma biosynthesis during wine fermentation[J]. International Journal of Food Microbiology, 2025, 443: 111415. DOI:10.1016/j.ijfoodmicro.2025.111415.
[61] Mejias-Ortiz M, Morales P, Juárez G, et al. Protein biosynthesis and carbon catabolite repression are transcriptionally upregulated in Saccharomyces cerevisiae by extracellular fractions from several wine yeast species[J]. Microbial Biotechnology, 2025, 18(5): e70168. DOI:10.1111/1751-7915.70168.
[62] Roca-Mesa H, Sendra S, Mas A, et al. Nitrogen preferences during alcoholic fermentation of different non-Saccharomyces yeasts of oenological interest[J]. Microorganisms, 2020, 8(2): 157. DOI:10.3390/microorganisms8020157.
[63] Su Ying, Seguinot P, Sanchez I, et al. Nitrogen sources preferences of non-Saccharomyces yeasts to sustain growth and fermentation under winemaking conditions[J]. Food Microbiology, 2020, 85: 103287. DOI:10.1016/j.fm.2019.103287.
[64] Rollero S, Bloem A, Ortiz-Julien A, et al. Altered fermentation performances, growth, and metabolic footprints reveal competition for nutrients between yeast species inoculated in synthetic grape juice-like medium[J]. Frontiers in Microbiology, 2018, 9: 196. DOI:10.3389/fmicb.2018.00196.
[65] Rossouw D, Bagheri B, Setati M E, et al. Co-flocculation of yeast species, a new mechanism to govern population dynamics in microbial ecosystems[J]. PLoS ONE, 2015, 10(8): e0136249. DOI:10.1371/journal.pone.0136249.
[66] Wang Chunxiao, Mas A, Esteve-Zarzoso B. The interaction between Saccharomyces cerevisiae and non-Saccharomyces yeast during alcoholic fermentation is species and strain specific[J]. Frontiers in Microbiology, 2016, 7: 502. DOI:10.3389/fmicb.2016.00502.
[67] Theron L W, Bely M, Divol B. Characterisation of the enzymatic properties of MpAPr1, an aspartic protease secreted by the wine yeast Metschnikowia pulcherrima[J]. Journal of the Science of Food and Agriculture, 2017, 97(11): 3584-3593. DOI:10.1002/jsfa.8217.
[68] Chu Qi, Sun Shuyang, Xing Xin, et al. Transcriptional analysis and key genes associated with sugar, amino acid and organic acid metabolism in Saccharomyces cerevisiae during wine-making combined with Torulaspora delbrueckii[J]. LWT-Food Science and Technology, 2024,198: 116007. DOI:10.1016/j.lwt.2024.116007.
[69] Curiel J A, Morales P, Gonzalez R, et al. Different non-Saccharomyces yeast species stimulate nutrient consumption in S. cerevisiae mixed cultures[J]. Frontiers in Microbiology, 2017, 8: 2121. DOI:10.3389/fmicb.2017.02121.
[70] Tofalo R, Perpetuini G, Rossetti A P, et al. Impact of Saccharomyces cerevisiae and non-Saccharomyces yeasts to improve traditional sparkling wines production[J]. Food Microbiology, 2022, 108: 104097.DOI:10.1016/j.fm.2022.104097.
[71] Li Linbo, Pan Yuru, Zhang Shishuang, et al. Quorum sensing: cellto-cell communication in Saccharomyces cerevisiae[J]. Frontiers in Microbiology, 2023, 14: 1250151. DOI:10.3389/fmicb.2023.1250151.
[72] Vicente J, Navascués E, Kelanne N, et al. Optimizing inoculation strategies with Lachancea thermotolerans and Saccharomyces cerevisiae for enhanced wine acidity management and fermentative performance[J]. Applied Food Research, 2025, 5(2): 101306.DOI:10.1016/j.afres.2025.101306.
[73] Ruiz-De-Villa C, Poblet M, Bordons A, et al. Comparative study of inoculation strategies of Torulaspora delbrueckii and Saccharomyces cerevisiae on the performance of alcoholic and malolactic fermentations in an optimized synthetic grape must[J]. International Journal of Food Microbiology, 2023, 404: 110367. DOI:10.1016/j.ijfoodmicro.2023.110367.
[74] 李嘉欣, 徐彬艳, 俞柏含, 等. 果汁复配比例和混菌发酵对富士-美乐复合果酒品质的影响[J]. 食品科学, 2025, 46(4): 81-90.DOI:10.7506/spkx1002-6630-20240627-199.
[75] Gardner J M, Alperstein L, Walker M E, et al. Modern yeast development: finding the balance between tradition and innovation in contemporary winemaking[J]. FEMS Yeast Research, 2023, 23:foac049. DOI:10.1093/femsyr/foac049.
[76] Zhang Boqin, Shen Jingyun, Duan Changqing, et al. Use of indigenous Hanseniaspora vineae and Metschnikowia pulcherrima co-fermentation with Saccharomyces cerevisiae to improve the aroma diversity of vidal Blanc ice wine[J]. Frontiers in Microbiology, 2018, 9:2303. DOI:10.3389/fmicb.2018.02303.
[77] Sun Wangsheng, Chen Xiaowen, Bi Pengfei, et al. Screening and characterization of indigenous non-Saccharomyces cerevisiae with high enzyme activity for kiwifruit wine production[J]. Food Chemistry,2024, 440: 138309. DOI:10.1016/j.foodchem.2023.138309.
[78] 周阳子. 非酿酒酵母与酿酒酵母混合发酵桑葚酒的研究[D]. 宜宾:四川轻化工大学, 2020. DOI:10.27703/d.cnki.gsclg.2020.000006.
[79] Li Linbo, Yuan Chenyang, Zhang Lei, et al. The impact of simultaneous inoculation with Torulaspora delbrueckii and Hanseniaspora uvarum combined with Saccharomyces cerevisiae on chemical and sensory quality of Sauvignon Blanc wines[J]. Frontiers in Microbiology, 2024,15: 1413650. DOI:10.3389/fmicb.2024.1413650.
[80] 陆洋洋, 张熠莹, 兰义宾, 等. 山东蓬莱产区4种酿酒葡萄自然发酵中酵母菌的多样性[J]. 食品科学, 2025, 46(12): 127-136.DOI:10.7506/spkx1002-6630-20241028-188.