酱香型白酒作为我国白酒4大基础香型之一,以“酱香突出、幽雅细腻、酒体醇厚、空杯留香持久”的独特风味特征享誉国内外[1],是我国白酒产业中极具特色与市场竞争力的品类。酱香型白酒独特酒体风格的形成并非单一因素作用的结果,其中高温大曲的应用发挥着不可或缺的核心作用。行业内素有“曲为酒之骨”的共识,高温大曲是酱香型白酒酿造过程中的核心糖化发酵剂,为酿造体系提供丰富的微生物资源、功能酶系及风味前体物质,其品质优劣对白酒最终的风味特征、口感层次及整体品质具有决定性影响[2]。
近十年来,随着分子生物学技术、现代仪器分析方法的飞速发展与广泛应用,高温大曲相关研究逐步摆脱早期经验导向及传统微生物可培养技术的局限,迈入多组学技术整合、宏基因组学解析与分子感官科学协同研究的全新阶段,研究深度与广度均得到显著提升。基于此,深入且系统地开展酱香型白酒高温大曲的相关研究,对于揭示酱香型白酒独特风味的形成机制、建立科学完善的高温大曲质量评价体系、优化制曲工艺参数、提升酱香型白酒的品质稳定性具有重要的理论价值与实践意义。同时,该领域的深入研究也能够丰富白酒酿造微生物学、发酵工程学等相关学科的理论知识体系,为其他香型白酒的大曲研究及工艺优化提供参考与借鉴,推动我国白酒产业的高质量可持续发展。
1 高温大曲的制曲工艺
1.1 高温大曲制曲原料
酱香型白酒高温大曲是以小麦为核心原料,经润麦、粉碎、拌曲、成型等预处理后,在特定高温环境下堆积发酵制成的块状糖化发酵剂,是酱香型白酒酿造体系中的关键功能辅料。目前酱香型白酒高温大曲常用的小麦品种如表1所示。
表1 高温大曲主要制曲小麦品种理化指标及特性对比
Table1 Comparison of physicochemical indicators and characteristics of primary wheat cultivars for high-temperature Daqu production
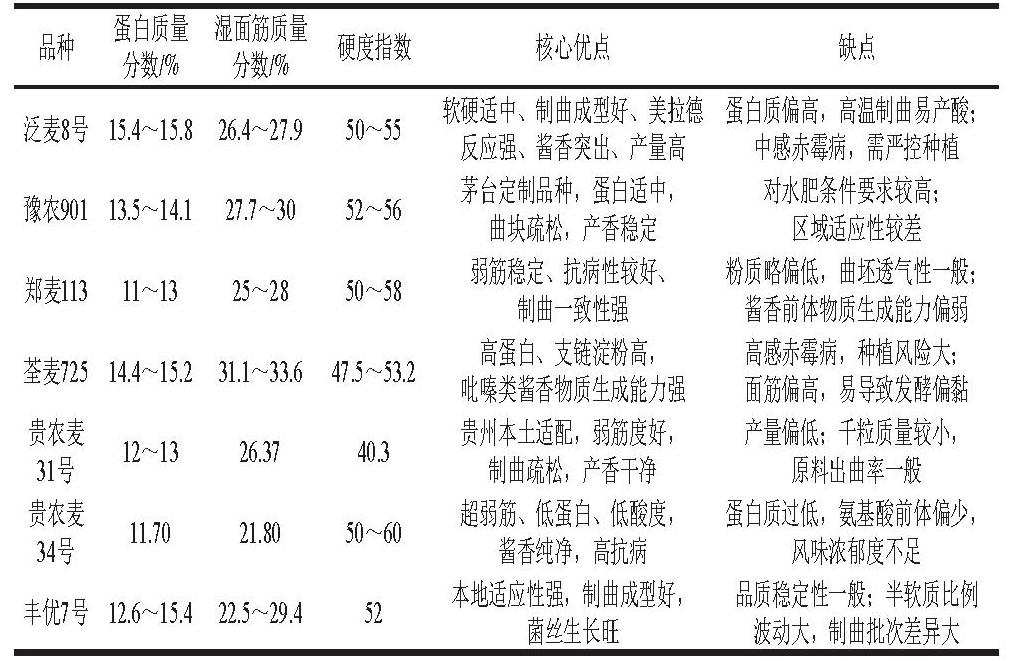
品种蛋白质量湿面筋质量分数/%分数/%硬度指数核心优点缺点泛麦8号15.4~15.826.4~27.950~55软硬适中、制曲成型好、美拉德蛋白质偏高,高温制曲易产酸;反应强、酱香突出、产量高中感赤霉病,需严控种植豫农90113.5~14.127.7~3052~56茅台定制品种,蛋白适中,对水肥条件要求较高;曲块疏松,产香稳定区域适应性较差郑麦11311~1325~2850~58弱筋稳定、抗病性较好、粉质略偏低,曲坯透气性一般;制曲一致性强酱香前体物质生成能力偏弱荃麦72514.4~15.231.1~33.647.5~53.2高蛋白、支链淀粉高,高感赤霉病,种植风险大;吡嗪类酱香物质生成能力强面筋偏高,易导致发酵偏黏贵农麦31号12~1326.3740.3贵州本土适配,弱筋度好,产量偏低;千粒质量较小,制曲疏松,产香干净原料出曲率一般贵农麦34号11.7021.8050~60超弱筋、低蛋白、低酸度,蛋白质过低,氨基酸前体偏少,酱香纯净,高抗病风味浓郁度不足丰优7号12.6~15.422.5~29.452本地适应性强,制曲成型好,品质稳定性一般;半软质比例菌丝生长旺波动大,制曲批次差异大
小麦丰富的营养组成与独特的理化特性为高温大曲发酵提供重要物质基础。小麦中淀粉质量分数为65%~70%、蛋白质量分数为10%~15%,同时含有适量脂肪,且黏结性较强,可为微生物生长、繁殖与代谢提供充足碳源、氮源及多种营养物质,有利于形成结构稳定、功能多样的微生物群落。在高温制曲条件下,蛋白质在微生物分泌的蛋白酶作用下降解为氨基酸,可与淀粉降解产生的还原糖发生美拉德反应,生成吡嗪类、醛类等酱香型白酒特征风味前体,直接参与酱香的形成。此外,小麦中的麸质蛋白可形成网状结构,维持曲坯透气性,为嗜热放线菌等好氧微生物提供适宜生长环境,间接调控大曲微生物群落结构与酶系活性。
小麦的粉碎度、软硬度等关键参数对高温大曲品质具有显著调控作用,相关研究已揭示其内在规律。杨阳等[3]研究表明,小麦制曲时低粉碎度曲坯升温缓和,黄曲比例可达82.37%;高粉碎度有利于细菌富集,中低粉碎度更利于曲霉菌属等真菌生长,说明粉碎度可显著改变微生物群落结构与成品曲类型。魏阳等[4]发现,粉碎度55%时曲坯保水性最优,粉碎度65%时更利于阿魏酸与愈创木酚生成,粗粉碎可明显提升大曲的烘烤香与酱香强度。在原料替代方面,陈珊等[5]通过工艺优化证实,硬质小麦可替代传统软质小麦制曲,所得大曲感官与理化指标无显著差异,且能降低生产成本,为制曲原料多元化提供了可行路径。冯雨[6]进一步从机制层面阐明,小麦软硬度可通过影响微生物群落与酶系活性调控大曲糖化发酵功能,最终影响风味物质的合成效率与组成,为制曲原料精准筛选和工艺优化提供了理论支撑。
综上可知,目前贵州省主流酱香型白酒高温大曲制曲小麦以软质弱筋专用品种为主,省外以泛麦8号、豫农901、郑麦113、荃麦725为核心,具有粉质率高、蛋白质含量适中、淀粉结构适宜等特点,能够满足高温制曲过程中微生物生长、蛋白质水解及美拉德反应需求。贵州本土选育的贵农麦31号、贵农麦34号、丰优7号等品种更适应当地生态条件,具有弱筋程度高、制曲疏松、产香纯净等优势,已成为茅台等企业本地化原料供应的重要组成。整体上,高温大曲制曲小麦均围绕低硬度、高粉质、适宜蛋白、高淀粉的制曲需求定向培育,共同支撑高温大曲品质形成。
1.2 高温大曲制曲工序及基本原理
酱香型白酒实际生产中的用曲量显著高于其他香型,与酿酒原料配比约为1∶1,这一特性凸显了高温大曲在酿造体系中的关键地位,也决定了相关研究对产业发展的重要性。传统高温大曲制作工艺流程如图1所示,全程以“高温培菌、多菌共酵、梯度熟化”为核心特征,涉及微生物群落演替、复杂生化反应及环境胁迫响应等多重机制。
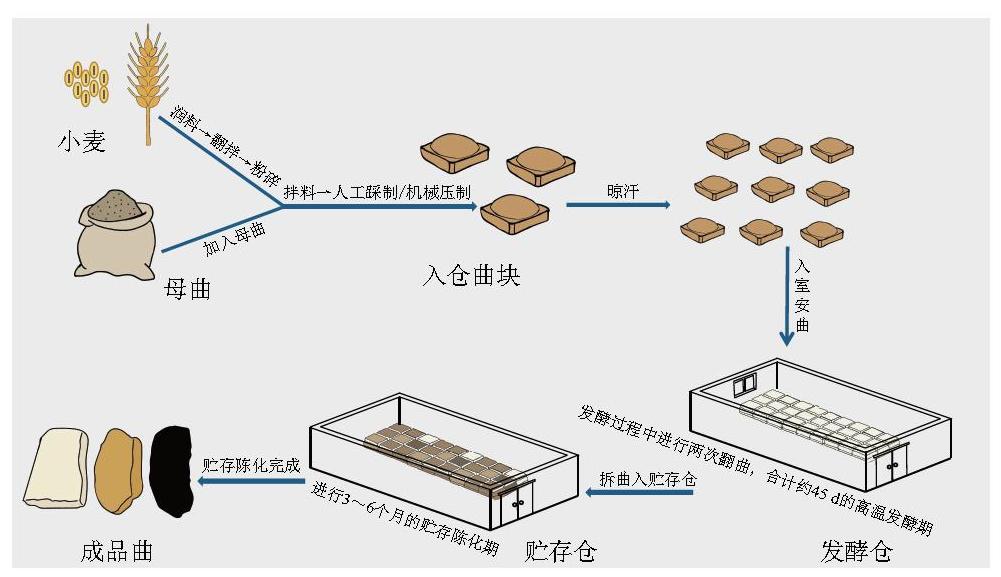
图1 传统高温大曲制作工艺流程
Fig.1 Technological flow chart for traditional high-temperature Daqu preparation
曲块在发酵过程中,高温、高湿、微氧环境可促进嗜热芽孢杆菌产酶,推动淀粉与蛋白质水解,为酱香风味物质生成提供前体[7]。其中保温培菌阶段,曲心温度可达60~65 ℃,发酵房极端高温可达70 ℃左右,在此环境胁迫下,曲块内形成以芽孢杆菌属(Bacillus)为核心优势类群的微生态体系,霉菌、酵母类微生物相对稀少。这类耐热功能菌群可分泌糖化酶、蛋白酶等,加速大分子物质降解,为风味合成提供支撑[8]。同时高温环境可直接生成吡嗪类、呋喃类等香气成分,赋予酒体酱香、焦香等风味[9],这类物质普遍被认为是酱香型白酒特征风味形成的核心物质基础[10]。
制曲各工艺环节对大曲品质具有直接调控作用,其中安曲、翻曲、堆曲尤为关键。采用“横三竖三交叉排列”的安曲方式可优化曲堆保温与排潮效果、调控温湿度分布,进从而影响微生物群落与酶系活性。曲块成型阶段,人工踩曲或机械压曲均需将孔隙率控制在20%~25%[11],以合理调节供氧,促进有益好氧微生物增殖并抑制杂菌。曲坯初始水分质量分数38%~42%、 pH 5.5~6.5,为中温微生物生长提供适宜环境,为后续高温阶段的群落演替奠定基础。
发酵完成后的大曲需经过3~6个月的贮存,这是大曲品质提升的重要阶段。贮存期间,大曲水分逐步挥发,微生物与酶系结构持续优化,酶活性趋于稳定[12],曲香更加浓郁,同时有害物质得以降解挥发,大曲的安全性与风味品质大幅提升。
经半年贮存后,高温大曲按外观可分为黄曲、白曲、黑曲3类,三者在占比、理化指标、微生物结构及风味上差异显著。黄曲占比不低于80%,呈金黄或棕黄色,曲香浓郁,品质最佳,为大曲主体[13];白曲占比不超过10%,呈麦粉色,带有曲香与生麦味[14],多分布于曲堆上层与边缘,菌丝偏少,干皮较薄时对酿酒影响较小;黑曲占比不超过5%,呈棕黑色,曲香中略带焦煳[15],主要形成于曲堆中层高温高湿区域,品质次于黄曲,过量使用可能对白酒风味产生不利影响。
2 酱香型白酒高温大曲中的主要组分
2.1 有机酸类
有机酸是酱香型白酒高温大曲发酵过程中的关键代谢产物,其组成、含量及功能特性对大曲品质调控及后续白酒风味形成具有重要影响,已成为当前大曲领域的研究热点。研究表明,酱香型白酒高温大曲发酵过程中可检测到的有机酸以乙酸、丙酸、苹果酸、琥珀酸及乳酸为主,这5种有机酸含量总和占大曲总有机酸含量的90%以上,构成了大曲有机酸体系的核心组分[16]。
大曲中的有机酸主要来源于微生物代谢活动,是微生物利用大曲原料营养物质代谢产生的中间或终末产物,如乳酸菌代谢合成乳酸、醋酸菌代谢生成乙酸,微生物类群的代谢特性直接决定有机酸的组成分布与含量差异。这些有机酸不仅是大曲发酵的代谢表征,更对大曲风味及后续白酒酿造品质具有显著调控作用:乳酸与琥珀酸为优势有机酸,乳酸可提升酒体醇厚感与绵柔度,优化口感层次;琥珀酸参与酱香前体物质合成,为特征酱香形成提供支撑;乙酸可平衡酒体甜腻感,与酯类物质协同作用,丰富风味复杂度;苹果酸与柠檬酸虽检出量有限,但可调节发酵体系pH值,维持微生物适宜生长环境,还可与氨基酸结合生成复杂风味物质,间接参与复合风味构建。
目前,大曲有机酸检测已形成成熟技术体系,高效液相色谱(high performance liquid chromatography,HPLC)法与超高效液相色谱-串联质谱法是目前的主流技术,凭借高灵敏度、高分离效率及高定量准确性,可实现有机酸的精准定性与定量,为相关研究提供可靠支撑。近年来,代谢组学技术快速发展,研究人员将非靶向代谢组学与传统检测技术结合,在酱香高温大曲中鉴定出246种难挥发化合物,以有机酸和氨基酸类为主。该研究的重要突破是发现十八烷二酸为黄曲特有代谢产物,证实酸类物质可作为区分黄曲、白曲、黑曲的重要特征标志物[17],为大曲类型快速鉴别、品质评价及质量控制提供了新的理论思路与技术支撑。
2.2 蛋白质
蛋白质是酱香型白酒高温大曲原料(小麦)的核心营养组分,质量分数稳定在10%~15%,主要由麦谷蛋白与麦醇溶蛋白构成。二者不仅为大曲发酵提供充足氮源,更在大曲品质形成及后续白酒风味调控中发挥多重关键作用。在高温大曲整个发酵周期内,小麦蛋白质呈现差异化转化路径与功能定位:一部分在微生物分泌的蛋白酶催化作用下逐步降解为多肽及小分子氨基酸,其中未完全降解的蛋白质及多肽一部分可作为后续酿酒过程中醛类、酮类、含氮化合物等风味物质的关键前体物质,参与酒体口感的协调与优化;另一部分以结构蛋白形式留存于曲坯,通过形成致密网状结构,维持曲块形态稳定性与透气性,为微生物生长繁殖提供适宜物理环境。
小麦蛋白质经酶解生成的游离氨基酸是高温大曲风味形成及微生物代谢的核心功能性物质,其代谢去向与转化路径直接影响大曲品质及白酒风味。这些游离氨基酸主要通过2条路径参与品质构建:一是被微生物吸收利用,作为合成细胞物质及功能酶类的原料,促进微生物生长繁殖与代谢,调控群落结构稳定性;二是直接参与白酒香味物质合成,其中美拉德反应最为关键:氨基酸与大曲发酵产生的糖类物质发生反应,生成吡嗪类、呋喃类等酱香型白酒特征风味物质[18]。
高温大曲特有的高温发酵环境可显著增强氨基酸与还原糖的美拉德反应强度,进而促进风味物质生成。其中,吡嗪类化合物具有典型烤香、坚果香,是构成酱香型白酒独特酱香与焦香的重要物质基础,直接决定酒体香气品质与风格特征。氨基酸作为美拉德反应的核心前体物质,其种类与丰度直接左右风味组分的生成潜力。酱香型高温大曲中可检出18种游离氨基酸及γ-氨基丁酸,其中天冬氨酸、谷氨酸、脯氨酸、丙氨酸等含量较高,且不同颜色大曲(白曲、黄曲、黑曲)的氨基酸组成及含量存在显著差异[19]。具体而言,谷氨酸与天冬氨酸在白曲中含量突出,虽不直接赋予酒体鲜味,但可通过调控代谢路径调节有机酸与多元醇含量,决定酒体醇厚感与绵柔度;亮氨酸、异亮氨酸作为“苦味氨基酸”,可转化为高级醇及美拉德反应产物,间接调控口感层次;脯氨酸、缬氨酸等核心风味前体,可与葡萄糖发生美拉德反应,生成特征风味化合物,为白酒复合风味形成提供重要支撑。
2.3 淀粉
淀粉是小麦中含量最丰富的碳水化合物(质量分数65%~70%),作为高温大曲微生物的核心碳源,在制曲与酿造过程中至关重要。在淀粉酶催化下,淀粉可降解为可发酵糖,为微生物代谢及风味物质合成提供底物[20]。 发酵过程中淀粉表现出差异化转化特性,部分被降解利用,部分残留至酿酒阶段持续供能,其代谢产生的生物热更是维持曲坯高温发酵环境的关键。糊化后的淀粉能增强曲坯黏性与结构稳定性,淀粉不足则易导致曲坯开裂、热量散失,影响发酵与风味形成。高淀粉虽有利于嗜热微生物生长及风味积累,但易引发曲坯升温过度,进而破坏酶系活性;淀粉含量偏低则会造成碳源不足、发酵不稳,最终导致大曲质量降低[21]。
2.4 纤维素
纤维素(质量分数2%~5%)和半纤维素(质量分数5%~10%)是小麦细胞壁的重要组分,在制曲中发生部分降解,剩余组分得以保留,既可维持曲坯骨架结构,又参与微环境构建与微生物生长调控[22]。部分纤维物质可在相关酶作用下降解为小分子糖类,作为补充碳源,未降解部分则作为骨架与微生物载体,稳定发酵体系。二者形成的纤维网络可提升曲坯强度、防止开裂,其形成的孔隙可改善通气性,满足好氧微生物生长需求[23]。半纤维素不仅可以调节曲坯湿度、优化微生态结构,在微生物代谢作用下,能够赋予曲块典型特征风味,如母曲甜香、焦糖香及坚果香等[24]。
2.5 风味物质
风味物质是高温大曲决定酱香型白酒风格特征的核心功能成分,其组成、含量与分布直接决定酒体香气品质与风味辨识度。高温大曲富含酯类、醇类、醛类、酮类、吡嗪类、呋喃类等挥发性与半挥发性化合物,各类物质共同构成酱香风味的物质基础。
酯类物质是大曲香气体系的重要组成,多呈现果香、花香,可有效丰富香气层次、提升风味协调性[25]。吡嗪类化合物则被普遍认为是酱香型白酒的标志性风味物质,也是酱香、烘焙香的关键贡献组分,其生成主要涉及美拉德反应与微生物代谢两条途径[26]。早期研究普遍将吡嗪类物质归因于美拉德反应,直至2008年江南大学团队在高温大曲中筛选到高产四甲基吡嗪的芽孢杆菌,证实了微生物代谢亦是吡嗪类重要来源,完善了酱香风味形成理论[27]。目前白酒中已鉴定出近30种吡嗪类组分,高温大曲中以2,3,5,6-四甲基吡嗪、2-乙酰基-3-甲基吡嗪等为主,其中2,3,5,6-四甲基吡嗪含量最高,为优势特征组分[28]。
随着代谢组学技术发展,大曲风味物质研究趋于系统化。Yang Liang等[17]基于全二维气相色谱-飞行时间质谱法与超高效液相色谱-四极杆飞行时间质谱法的非靶向代谢组学策略对高温大曲中的化合物进行系统分析,共鉴定出647种化合物,其中挥发性成分401种(主要为芳香族化合物及吡嗪类)、非挥发性成分246种(以有机酸和氨基酸为主)。该研究揭示了大曲理化特性与其代谢物谱之间的内在关联,为风味溯源提供了一条高通量的解析路径。在微生物强化制曲方面,梁慧珍等[29]将6株高产吡嗪的芽孢杆菌应用于实际生产,共检出挥发性香气物质33种,其中X1菌株产吡嗪能力最强,2,3,5,6-四甲基吡嗪含量可达9 049.45 μg/kg,能够显著提升酒体酱香、烘焙香与花果香。验证结果显示,X1菌株可使2,3,5,6-四甲基吡嗪、2,3,5-三甲基吡嗪、2,6-二甲基吡嗪含量分别提高2.36、2.56、2.33倍,且液态菌剂效果优于固态菌剂,为大曲风味定向提升提供了稳定菌株资源与工程化路径。
整体而言,高温大曲风味物质以酯类与吡嗪类为核心骨架,形成“化学合成+微生物代谢”的双源生成机制;现代代谢组学技术实现了风味物质的系统鉴定,而功能芽孢杆菌强化则为酱香风味精准调控提供了可行方案。高温大曲中的主要风味物质及其特征与作用见表2。
表2 高温大曲中的主要风味物质及其特征与作用
Table2 Characteristic information and functional roles of dominant flavor compounds in high-temperature Daqu
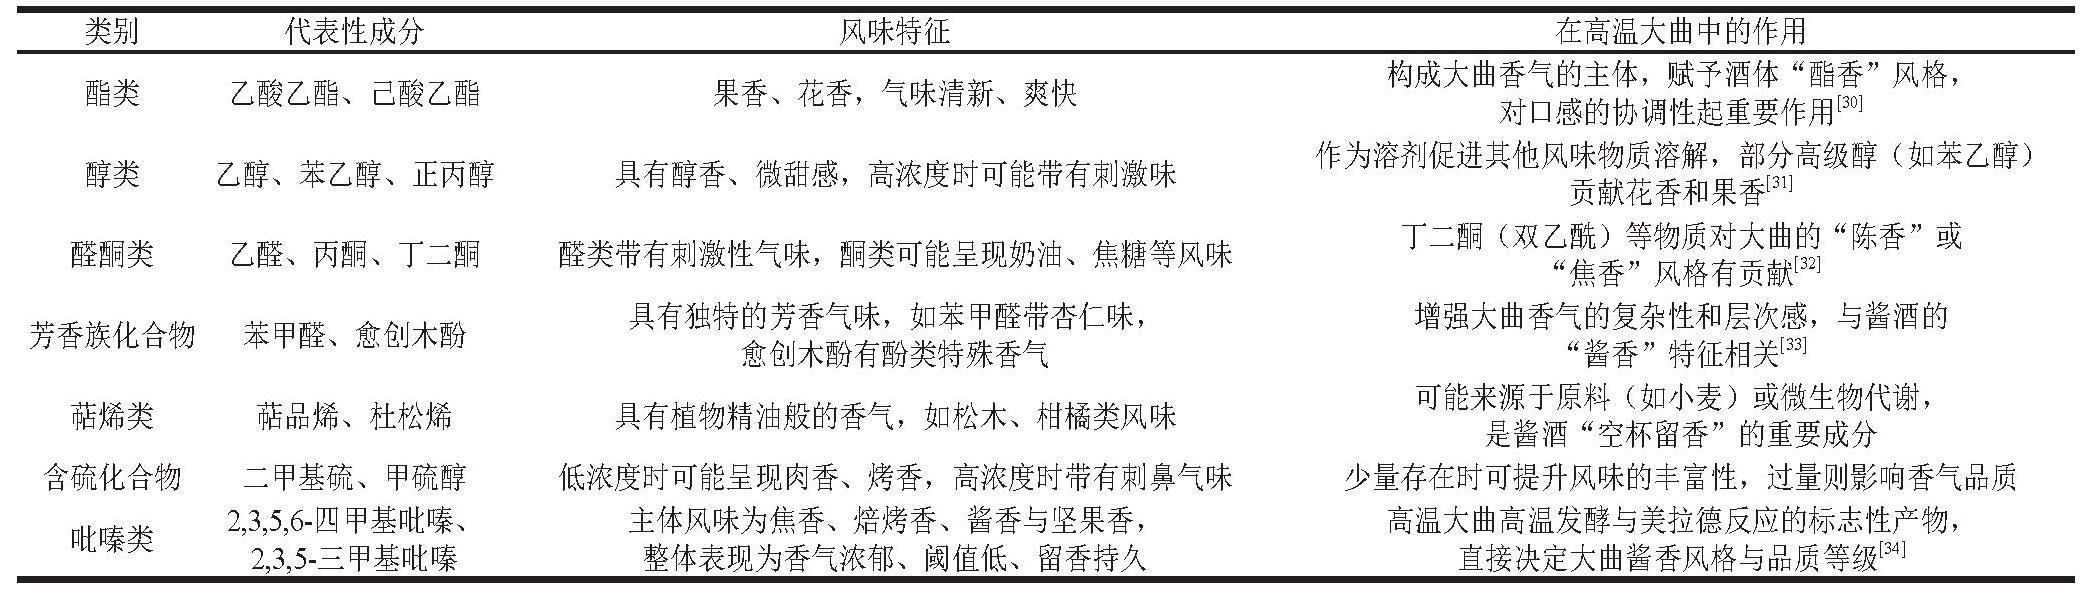
类别代表性成分风味特征在高温大曲中的作用酯类乙酸乙酯、己酸乙酯果香、花香,气味清新、爽快构成大曲香气的主体,赋予酒体“酯香”风格,对口感的协调性起重要作用[30]醇类乙醇、苯乙醇、正丙醇具有醇香、微甜感,高浓度时可能带有刺激味作为溶剂促进其他风味物质溶解,部分高级醇(如苯乙醇)贡献花香和果香[31]醛酮类乙醛、丙酮、丁二酮醛类带有刺激性气味,酮类可能呈现奶油、焦糖等风味丁二酮(双乙酰)等物质对大曲的“陈香”或“焦香”风格有贡献[32]芳香族化合物苯甲醛、愈创木酚具有独特的芳香气味,如苯甲醛带杏仁味,增强大曲香气的复杂性和层次感,与酱酒的愈创木酚有酚类特殊香气“酱香”特征相关[33]萜烯类萜品烯、杜松烯具有植物精油般的香气,如松木、柑橘类风味可能来源于原料(如小麦)或微生物代谢,是酱酒“空杯留香”的重要成分含硫化合物二甲基硫、甲硫醇低浓度时可能呈现肉香、烤香,高浓度时带有刺鼻气味少量存在时可提升风味的丰富性,过量则影响香气品质吡嗪类2,3,5,6-四甲基吡嗪、主体风味为焦香、焙烤香、酱香与坚果香,高温大曲高温发酵与美拉德反应的标志性产物,2,3,5-三甲基吡嗪整体表现为香气浓郁、阈值低、留香持久直接决定大曲酱香风格与品质等级[34]
2.6 酶系
在传统固态发酵研究领域,丝状真菌(如曲霉、根霉等)长期被认定为白酒酿造中淀粉、蛋白质等大分子物质降解的核心动力,该认知源于中低温大曲的微生物群落特征及酶活性检测结果,存在研究场景局限性。酱香型白酒高温大曲制曲温度长时间维持在60~65 ℃甚至更高,极端高温显著抑制嗜热丝状真菌生长繁殖,使其数量大幅减少,耐热芽孢杆菌取而代之成为优势菌群,且已被证实是淀粉酶、蛋白酶等关键水解酶的主要生产者。这一发现打破传统认知,明确了高温与中低温大曲酶类产生菌的核心差异,为高温大曲酶系调控及风味优化提供全新研究视角,也凸显了高温大曲专项研究的必要性。Bacillus在各类大曲中分布广泛、环境适应性强,可分泌淀粉酶、葡糖淀粉酶、蛋白酶等多种胞外酶系,既能高效将淀粉、蛋白质等大分子降解为葡萄糖、氨基酸等微生物可直接利用的小分子营养物质,还能参与各类风味物质及前体物质的合成[35],是高温大曲中连接原料代谢与风味形成的核心功能菌群。这一特性决定了其在高温大曲品质调控中的核心地位,也使其成为当前高温大曲功能微生物筛选与应用的重点对象。
蒋泽元等[36]从高温大曲中筛选获得1株高产淀粉酶与蛋白酶的苏云金芽孢杆菌(Bacillus thuringiensis),其淀粉酶活性达64.45 U/mL、蛋白酶活性为0.60 U/mL,该菌株可耐受60 ℃高温,强酸性条件下生长缓慢,适宜在弱酸性至中性环境中繁殖。该研究为高温大曲功能菌株筛选提供具体资源与思路,所获菌株兼具耐高温与高产酶能力,具有潜在工业化应用价值,但其在实际制曲过程中的适应性、产酶稳定性及对大曲风味的具体调控效果,仍需放大试验验证。从酶功能来看,淀粉酶不仅直接参与淀粉糖化,其活性还与大曲风味物质形成密切相关:淀粉在α-淀粉酶与葡萄糖淀粉酶协同作用下水解生成葡萄糖,作为酵母菌发酵的核心可发酵碳源,为乙醇及酯类、醛类等风味化合物的生物合成提供物质 保障[37],这一途径清晰地阐明淀粉酶通过碳源供给间接调控白酒风味的核心机制,也解释了其活性为何常作为高温大曲品质评价的重要指标。
蛋白酶是高温大曲中调控蛋白质代谢、驱动酱香白酒特征风味形成的核心酶类,其来源具有明确特异性:主要来自芽孢杆菌,部分源于耐高温曲霉与放线菌,这一特异性与高温大曲极端环境适配,也决定了其耐高温特性。蛋白酶的核心功能是催化小麦蛋白质逐步降解为小分子氨基酸,这一过程是白酒独特风味(尤其是酱香、陈香)形成的关键驱动力,已被大量研究证实,明确了其在酱香白酒风味形成中的核心地位[38-39]。具体而言,大曲发酵及白酒蒸馏的高温条件下,蛋白酶降解产生的氨基酸与淀粉降解生成的还原糖发生美拉德反应,生成吡嗪类、呋喃类、吡咯类、含硫化合物等复杂香气化合物,这些化合物协同构成酱香型白酒“幽雅细腻、空杯留香持久”的风味骨架,直接决定酒体香气品质与风格辨识度。目前,针对蛋白酶活性与风味物质生成量之间的量化关系、不同来源蛋白酶的功能差异等研究仍不够深入,难以实现基于蛋白酶调控的风味精准优化。
高温大曲中脂肪酶来源相对广泛,主要由Bacillus(如解淀粉芽孢杆菌、地衣芽孢杆菌)、酵母菌(如酿酒酵母、假丝酵母)及少量霉菌(如根霉、毛霉)代谢产生,来源多样性使其可在不同发酵阶段发挥持续催化作用。脂肪酶的核心功能是催化小麦脂肪水解,生成脂肪酸(如油酸、亚油酸、棕榈酸)与甘油,其中脂肪酸是酯类物质的关键前体,而酯类是酱香白酒香气体系的主要组成部分[40],直接影响香气丰富度;甘油可提升酒体甜味与醇厚感,优化口感层次,可见脂肪酶同时兼顾香气与口感调控功能。此外,脂肪酶可与酯化酶协同作用,催化脂肪酸与乙醇酯化,进一步合成各类酯类风味物质,完善白酒香气体系。红曲霉是高温大曲中酸性酯化酶的重要产生来源,该类酶在白酒发酵醅等酸性环境中活性较高,其胞外酯化酶可催化底物合成丰富风味物质,补充了高温大曲酯化酶的来源,也为酸性环境下酯类合成机制提供合理解释。云敏等[41]研究发现,酱香型白酒高温大曲中的烟色红曲霉在发酵过程中代谢产香呈现明显阶段性特征:初期呈浓郁果香,中期转为复杂多元气味,干燥后形成浓郁酱香与焦香[42]。该研究清晰揭示烟色红曲霉发酵体系香气动态变化规律,为定向调控大曲风味提供重要参考,但该菌株在不同制曲工艺下的代谢稳定性仍需验证。此外,酯化酶活性受温度影响显著,酿酒后期低温更利于其活性发挥,促进酯类积累,这为酿酒后期工艺参数优化提供理论依据,可通过调控温度提升酯化酶活性,丰富白酒香气。
过氧化物酶与多酚氧化酶是高温大曲中参与风味物质氧化转化及酒体色泽调控的重要酶类,二者来源具有共性,主要由Bacillus、曲霉属及酵母菌等微生物产生,还有少量过氧化物酶来自小麦原料本身,双重来源保障其在大曲发酵中的持续活性。具体而言,过氧化物酶可参与美拉德反应中间产物的氧化缩合,推动类黑素生成,增强酒体色泽与醇厚感,提升感官品质;同时其可氧化脂肪酸生成挥发性醛类、酮类物质,为酒体贡献果香、花香,丰富香气层次。更重要的是,糟醅发酵中,过氧化物酶可通过消耗氧气、产生氧化产物营造微氧环境,抑制需氧杂菌过度繁殖,维持发酵体系稳定,凸显其多重价值。多酚氧化酶可催化多酚类物质氧化生成醌类化合物[43],醌类进一步聚合形成黑色素或酚酸聚合物,间接影响酒体色泽与口感;同时,过氧化物酶还可参与木质素降解产物氧化,释放阿魏酸等物质,为酯类合成提供前体,实现木质素间接利用。白酒贮存阶段,二者介导的适度氧化可提升酒体“陈酿感”,改善风味协调性,但过度氧化会导致酚类流失,降低酒体抗氧化能力,不利品质。这提示可通过调控贮存条件控制该类酶活性,优化酒体品质,但目前贮存条件与酶活性调控的适配关系研究仍需完善。
3 酱香型白酒高温大曲微生物群落
3.1 高温大曲微生物群落的区域差异性及共性特征
酱香型白酒高温大曲的微生态系统具有显著区域特异性,该特性由不同产区生态环境、气候条件、原料组成及生产工艺协同作用形成;同时,作为酱香型白酒酿造专用大曲,其微生物群落亦存在核心共性特征,这一共性体现高温制曲环境对微生物的定向筛选作用,是酱香型白酒风味具备风格共性的核心原因之一,更是“曲定香型”的重要微生态佐证,为微生态研究奠定核心理论基础。
从区域差异性来看,高温大曲微生物群落组成受产区环境影响显著。由于大曲发酵为敞开式过程,产区温度、湿度、空气质量及土壤微生物背景等环境因子直接影响曲块微生物的定植、繁殖与演化,导致不同产区群落结构明显分化,最终体现在大曲风味及酒体品质差异上,为酱香型白酒“产区特色”提供微观解释。李娜等[44]对河套地区高温大曲的研究显示,其真菌群落以子囊菌门为主,嗜热真菌属(Thermomyces)、嗜热子囊菌属(Thermoascus)和曲霉属(Aspergillus)为优势类群;与江西鹰潭地区大曲相比,河套地区大曲样品真菌多样性偏低但群落稳定性更高。这种差异源于河套地区干旱少雨、昼夜温差大的气候,与鹰潭地区湿润多雨的环境形成对比,导致真菌群落分化。该研究阐明了气候因子对真菌群落的调控作用,为群落差异溯源提供典型案例,但仅聚焦真菌群落,未涉及细菌与气候因子的关联,研究维度有待完善。
细菌群落研究中,区域差异性突出且存在明确核心共性。侯强川等[45]比较茅台和尧治河两产区大曲品质时发现,两者细菌群落核心组成具有共性,均以Bacillus、嗜热放线菌属、葡萄球菌属(Staphylococcus)、克罗彭斯特菌属(Kroppenstedtia)等为优势类群,这与60~65 ℃极端高温制曲环境密切相关。此类细菌耐热性强,可在高温胁迫下稳定定殖并发挥代谢功能,是细菌群落核心功能类群,也是高温定向筛选的直接体现;然而,优势菌属相对丰度差异较大,直接导致两产区大曲酶活性、风味前体生成量不同,进而影响大曲品质。该研究揭示了细菌群落共性规律及区域差异的调控作用,为品质差异微观机制提供参考,但未深入探讨优势菌属含量差异的具体成因,需结合原料、工艺细节进一步分析。
杨月等[46]的研究进一步证实区域微生物差异与大曲风味的内在关联:北京与贵州大曲挥发性风味组分差异显著,贵州大曲挥发物质种类略多,核心原因是两地核心功能菌属不同,北京大曲细菌核心菌群为泛酸枝芽孢杆菌(Virgibacillus),贵州大曲为Kroppenstedtia,真菌核心菌群均为Thermoascus和Thermomyces,但相对丰度不同,其代谢活动直接调控风味化合物生成,导致风味区域分化。该研究将群落差异与风味生成关联,完善了区域微生态差异的功能表征,弥补了以往“重群落、轻功能”的不足,为微生物调控风味定向优化提供理论支撑。
此外,崔梦君等[47]通过PacBio SMRT测序技术检测成品大曲细菌群落发现,其微生物群落以Kroppenstedtia、Staphylococcus和高温放线菌属(Thermoactinomyces)为主,平均相对丰度分别达26.81%、26.78%和19.72%。该研究采用高精度测序技术精准揭示成品大曲群落核心组成,弥补传统测序分辨率不足的缺陷,有效提升了结果准确性;其中Staphylococcus功能尚未明确,推测其可分泌多种酶类、具有抗菌潜力,可能在调控微生态平衡、促进大分子降解中发挥作用[48]。这一推测为其功能挖掘、定向应用提供方向,也提示当前微生物功能研究仍有空白,需开展专项研究完善理论体系。
综合来看,酱香型高温大曲微生物群落“共性与特性并存”,是对高温制曲环境的适应性体现。共性源于高温对耐热微生物的定向筛选,形成以Bacillus、Thermomyces、Thermoascus等为核心的优势菌群,是白酒风味共性的微观基础;特性源于区域环境、原料、工艺差异,导致核心菌群丰度、辅助菌群组成分化,形成产区独特风味,是“产区特色”的微生态基础。当前研究已明确群落分布规律,但对区域差异精准调控因素、优势菌群功能区域特异性研究不足,后续需开展多产区、多因素协同分析,完善微生态空间分布理论。
3.2 高温大曲发酵过程中微生物群落的动态变化及微生态 演化规律
高温大曲发酵是动态生物过程,而非静态微生物定植,整个发酵周期内,曲块温度、湿度、pH值及营养组成持续变化,直接驱动微生物群落动态演替,导致不同发酵时期群落组成、功能分工差异显著;同时,受发酵空间异质性影响,同一批次曲块形成黑、黄、白 3种类型,群落组成具有明显特异性,共同构成复杂微生态系统。这一动态特征决定了微生态研究需聚焦“过程动态”,而非仅关注“终点状态”,也从微观解释了同一批次制曲品质差异的原因,为发酵过程精准调控提供思路。
曲块颜色差异是微生态演化差异的外在体现,受制曲环境、工艺、褐变反应及微生物代谢等多因素协同调控。高温大曲的色泽形成与氨基酸代谢密切相关,微生物代谢主导了蛋白质水解与游离氨基酸生成,进而在高温下参与美拉德反应与Strecker降解,产生类黑素等色素物质,直接决定大曲颜色深浅,是大曲色泽形成的核心物质基础[49]。丁润月等[50]研究表明,黄曲中Aspergillus与罗萨氏菌属(Rasamsonia)协同作用,促进特征色素合成,使曲块呈黄色;黑曲深色表型与美拉德反应及Thermoascus代谢密切相关。该菌属分泌多种酶类,降解蛋白质、淀粉等大分子,生成的氨基酸与还原糖发生美拉德反应,从而形成深色色素,其自身代谢产物也参与色素合成;白曲因微生物代谢温和、褐变反应弱,未形成明显色素而呈白色。该研究明确色素形成的微生物机制,填补研究空白,为调控群落改善品质提供思路,但未明确不同因素的调控权重,需单因素试验验证。
不同颜色曲块的群落组成及功能差异,进一步揭示发酵期微生态分化规律,也为大曲品质分级提供微观依据。梁二宏等[51]分析黄、白、黑3种大曲发现,3类曲块核心优势菌群存在共性,细菌以Bacillus和Scopulibacillus为主,真菌以Thermomyces和Thermoascus为主,印证了高温对微生物的定向筛选作用;但优势菌群丰度及功能分工差异显著:白曲糖化力、酯化力最高,且与Thermomyces丰度呈正相关,说明其主要发挥糖化、酯化功能,促进淀粉降解及酯类前体生成;黄曲、黑曲因Thermoascus、Aspergillus等菌群丰度较高,更倾向于促进大分子降解及美拉德反应,生成更多风味前体及色素。该研究明确曲块功能定位,为分类利用、品质优化提供参考,但仅聚焦静态群落差异,未涉及群落演替动态过程,无法明确分化关键节点。
Thermomyces是高温大曲核心功能真菌属,其分布及功能在不同产区、不同曲块中具有一致性,是微生态系统不可或缺的功能类群,也是研究热点。Zhu Chutian等[52]研究显示,贵州、山东大曲中Thermomyces丰度较高,真菌占比分别达31.8%和48.1%,作为产淀粉酶、纤维素酶和蛋白酶的代表菌属,其可降解原料中蛋白质和大分子多糖,为酿造微生物提供营养,同时促进风味物质生成,丰度直接影响大曲酶活性及风味前体积累。该研究明确其核心功能及分布共性,为功能菌株筛选应用提供靶点,但不同产区Thermomyces的菌株差异、代谢特异性仍需进一步研究。
王鑫等[53]对湖北襄阳3种大曲的检测进一步证实了Thermomyces的优势地位,其平均相对丰度高达69.98%,远高于曲霉属(11.67%)、嗜热毛霉菌属(8.25%)等;同时不同颜色曲块特征生物标志物差异明显:黑曲为Thermomucor、Aspergillus和Trichomonascus,黄曲为Thermomyces和Pichia,白曲无明确特征标志物。这表明白曲群落结构均一、微生态演化温和,黑曲、黄曲群落分化明显、功能更具特异性,进一步验证曲块颜色与微生态演化的关联,补充了不同产区曲块微生态分化数据。
此外,同一地域不同酒企的工艺、母曲差异也会导致大曲群落分化,这拓展了微生态分化影响因素的研究维度,表明人为因素是重要调控变量。王玉荣等[54]比较了河北同一酒厂的不同类型大曲,发现白曲以Pichia为特征标志物,黑曲以Monascus为特征标志物,两类真菌的丰度差异正是大曲烷烃类物质含量和鲜咸味等感官指标出现显著分化的主要原因之一。该研究强调人为因素的调控作用,为通过优化工艺、筛选优质母曲实现微生态定向调控提供实践指导,但未明确母曲与成品曲群落的传承关系,需进一步追踪研究完善理论基础。
3.3 高温大曲后熟期的微生物群落重组及微生态功能优化
发酵完成的高温大曲需经3~6个月后熟才能用于酿造,这是微生态系统优化、品质提升的关键阶段,早期研究多有忽视,近年来其重要性逐渐凸显。后熟期以微生物群落重组、酶系统重构及风味化学转化等协同过程为核心,后熟后大曲香气熟成、酶活性稳定、风味协调,为后续发酵提供优质“菌系”“酶系”基础;若贮存期不足,会导致香气熟成不充分、酶活性不稳定,影响酒体品质与风味。这一特性决定了后熟期是大曲品质形成的“关键收尾阶段”,也是品质标准化的重要调控节点,填补了早期“重发酵、轻后熟”的空白。
后熟期核心特征是微生物群落重组,随贮存时间延长,大曲品温下降,驱动群落结构显著变化:耐热微生物丰度下降,适应性强、功能全面的微生物丰度上升,最终形成稳定微生态系统,这本质是微生态对贮存环境的适应性优化及功能微生物的“筛选与富集”。 杨军林等[55]研究发现,高温大曲在贮藏过程中微生物群落结构呈现明显的动态变化,其中细菌群落的演替幅度显著大于真菌群落。在属分类水平上,Kroppenstedtia与Thermoascus为贮藏阶段的核心优势类群。同时任婷婷等[56] 研究表明,Kroppenstedtia与多数醇类物质呈显著正相关,在大曲后熟阶段,酵母菌、细菌等可利用糖和氨基酸持续生成高级醇、芳香醇等。这些醇类又可进一步酯化或氧化缩合,调控风味平衡,体现了其在后熟风味形成中的重要作用。Zhang Yuandi等[57]研究发现,贮存6个月的大曲糖化力高于贮存3个月的大曲,但可培养耐热菌数量减少,核心原因是品温下降后,Thermoactinomyces、Paenibacillus和Rasamsonia生存优势减弱,丰度低于贮存3个月的大曲;而Bacillus、Pseudomonas、Thermoascus丰度随成熟延长显著增加,此类微生物兼具耐热性,可分泌多种酶类,促进风味前体转化熟成,提升大曲品质。该研究明确了群落重组规律及与品质的关联,填补了后熟期研究空白,但未明确群落重组关键时间节点,无法为贮存时间优化提供精准依据。
生物标志物变化进一步揭示后熟期微生态演化规律,也为大曲成熟度评价提供微观指标,解决了传统评价依赖感官、主观性强的难题。贮存3个月的大曲中,Streptomyces和Thermoactinomyces为特征标志物,适应初期较高品温,主要发挥大分子初步降解功能;贮存6个月的大曲中,标志物变为Burkholderia和Pseudomonas,适应后期温和环境,主要负责风味前体转化、酶系重构,促进香气熟成。群落结构差异导致不同成熟阶段大曲代谢途径不同,风味特征有别,尤其是乙酸乙酯、1-辛烯-3-酮、2,3,5-三甲基-6-乙基吡嗪等风味化合物,贮存6个月的大曲含量更均衡、香气更协调,为成熟度精准评价提供了可靠依据。
冯智伟等[58]对大曲贮存过程的研究补充了后熟期微生态演化细节,完善了理论体系。该研究发现,180 d贮存期内,Virgibacillus和Kroppenstedtia始终为优势细菌,前者分泌多种酶类助力淀粉转化,后者提高碳源利用率、代谢产生酸和气体,二者协同促进酶活性稳定及风味前体转化;Thermoascus全程保持高丰度,持续降解大分子、促进美拉德反应,是后熟期核心功能真菌。贮曲150 d后,Aspergillus、Saccharomycopsis和Monascus逐渐成为优势微生物,这与品温下降密切相关,此类微生物耐热性较弱,品温下降后恢复活性并大量繁殖,进一步促进风味转化熟成,提升大曲香气品质。该研究梳理了后熟期不同阶段群落变化及功能分工,为工艺优化提供理论支撑,但未涉及湿度、通风等贮存条件的影响,后续需开展多条件协同研究完善调控技术。
4 结 语
高温大曲是酱香型白酒酿造的核心糖化发酵剂,其品质直接决定酒体风味特征与生产稳定性。现阶段相关研究已由传统经验型逐步转向多组学整合解析的科学化阶段。研究表明,制曲原料小麦的粉碎度、硬度、蛋白质及淀粉组成等关键理化与营养特性,可通过调控大曲微生物群落结构及酶系活性影响芽孢杆菌、嗜热真菌等优势菌群丰度,进而间接调控吡嗪类、酯类等特征风味物质的合成与积累。在高温制曲过程中,微生物通过种间协同代谢驱动美拉德反应、Strecker降解等核心生化反应高效进行,为酱香形成提供物质基础。同时,借助HPLC、全二维气相色谱-飞行时间质谱等现代分析技术,研究者已在高温大曲中鉴定出600余种挥发性与非挥发性化合物,构建了品质评价标志物库,为大曲等级判别提供了数据支撑。
尽管高温大曲研究已取得显著进展,但其品质形成是原料、微生物、酶系、工艺等多因素耦合的动态复杂过程,当前研究仍以现象描述为主,深层机制尚未系统阐明,主要存在3方面挑战:1)制曲原料与工艺的互作机制解析不足,小麦关键理化指标与微生物群落、酶活性之间的协同调控关系尚不明确,制约了原料筛选从经验化向标准化转型。2)功能微生物互作与代谢机制研究薄弱,Kroppenstedtia、Thermomyces等核心菌属的种间互作模式及风味合成路径仍需验证,难以支撑定向功能强化。同时,酶系研究存在明显短板,高温大曲中纤维素酶、半纤维素酶等相关研究较少,其功能微生物来源、活性调控规律及对原料利用、风味形成的间接影响尚不明确,这也进一步加剧了微生物与酶系协同机制的研究难度。3)大曲质量评价体系存在局限,传统感官与理化单一指标评价模式难以实现全面、客观、精准评判,不利于品质稳定与标准化管控。
基于现有研究进展与瓶颈,未来高温大曲研究可围绕3个大方向推进:1)利用多组学技术与分子感官科学系统解析高温胁迫下微生物群落演替、功能分工及风味物质形成机制,完善品质调控理论体系。2)加强功能微生物筛选与合成菌群构建,通过菌株定向改造与代谢路径优化研发风味可控的工程化曲药,提升制曲稳定性。3)融合人工智能与在线监测技术,建立覆盖原料、微生物、酶活性、风味的全链条质量控制模型,实现制曲过程精准调控与品质可预测,最终推动酱香型白酒产业向标准化、高品质、智能化方向升级。
[1] 丁保坤, 甘晋铭, 朱俊颖, 等. 不同轮次酱香型基酒成分对比分析[J]. 酿酒, 2024, 51(4): 98-103. DOI:10.3969/j.issn.1002-8110.2024.04.026.
[2] 李红霞, 王雄, 王新叶, 等. 酱香型大曲中产淀粉酶系菌株的筛选鉴定及产酶条件优化[J]. 中国酿造, 2024, 43(12): 124-130.DOI:10.11882/j.issn.0254-5071.2024.12.018.
[3] 杨阳, 张芮, 于惠, 等. 不同粉碎度小麦发酵高温大曲的微生物群落结构及功能特征比较[J]. 现代食品科技, 2024, 40(7): 72-80.DOI:10.13982/j.mfst.1673-9078.2024.7.0912.
[4] 魏阳, 张芮, 张立强, 等. 小麦粉碎度与成品高温大曲理化和风味组分的相关性研究[J]. 食品与发酵工业, 2024, 50(20): 181-189.DOI:10.13995/j.cnki.11-1802/ts.037631.
[5] 陈珊, 汤有宏, 李兰. 不同硬度指数小麦制曲对高温大曲质量的影响研究[J]. 酿酒, 2023, 50(4): 47-49. DOI:10.3969/j.issn.1002-8110.2023.04.013.
[6] 冯雨. 小麦软硬度对高温大曲的影响[J]. 酿酒, 2019, 46(2): 88-89.DOI:10.3969/j.issn.1002-8110.2019.02.029.
[7] Wang Zhiying, Li Pan, Luo Lixin, et al. Daqu fermentation selects for heat-resistant Enterobacteriaceae and bacilli[J]. Applied and Environmental Microbiology, 2018, 84(21): e01483-18. DOI:10.1128/aem.01483-18.
[8] 杨婷婷, 黄永光, 左乾程, 等. 酱香白酒酿造过程糠醛及糠醇的时空分布规律及溯源分析[J]. 食品科学, 2025, 46(5): 38-47.DOI:10.7506/spkx1002-6630-20240618-113.
[9] 陈吉, 李海军. 大曲酱香白酒醇甜酒典型体与成品酒风格相关性研究[J]. 现代食品, 2024, 30(7): 160-164. DOI:10.16736/j.cnki.cn41-1434/ts.2024.07.042.
[10] 王小平, 黄永光, 周文美. 酱香型白酒大曲细菌菌群结构及功能研究进展[J]. 中国酿造, 2020, 39(2): 19-25. DOI:10.11882/j.issn.0254-5071.2020.02.004.
[11] 吴相东, 田建平, 黄海飞, 等. 曲房加湿的数值模拟及试验[J].现代食品科技, 2022, 38(5): 218-225. DOI:10.13982/j.mfst.1673-9078.2022.5.0975.
[12] 任婷月, 韩英, 李永强, 等. 山西冬性大麦品种培曲性能研究[J].酿酒科技, 2022(7): 33-39. DOI:10.13746/j.njkj.2021325.
[13] 王凡, 山其木格, 卢君, 等. 基于红外光谱技术的高温大曲模式识别与类黑素快速定量[J]. 现代食品科技, 2024, 40(9): 325-332.DOI:10.13982/j.mfst.1673-9078.2024.9.0954.
[14] 敖锐, 彭茵, 胡永才, 等. 感官检验在酱香型白酒生产中的应用[J]. 食品与发酵科技, 2017, 53(5): 84-87; 121. DOI:10.3969/j.issn.1674-506X.2017.05-017.
[15] 李彦涛, 梁红东, 尉军强, 等. 不同种类高温大曲真菌群落多样性与结构分析[J]. 中国酿造, 2024, 43(7): 126-131. DOI:10.11882/j.issn.0254-5071.2024.07.019.
[16] 史凤, 马楷雨, 史改玲, 等. 酱香型高温大曲发酵过程中风味物质分析[J]. 中国酿造, 2025, 44(1): 52-59. DOI:10.11882/j.issn.0254-5071.2025.01.008.
[17] Yang Liang, Fan Wenlai, Xu Yan. GC × GC-TOF/MS and UPLC-Q-TOF/MS based untargeted metabolomics coupled with physicochemical properties to reveal the characteristics of different type Daqus for making soy sauce aroma and flavor type Baijiu[J].LWT-Food Science and Technology, 2021, 146: 111416. DOI:10.1016/j.lwt.2021.111416.
[18] 李明宇, 陈旭露, 肖婷, 等. 传统发酵食品中吡嗪类物质的研究进展[J]. 中国调味品, 2025, 50(6): 234-240. DOI:10.3969/j.issn.1000-9973.2025.06.032.
[19] 张巧玲, 吕锡斌, 秦兴, 等. 酱香型白酒高温大曲游离氨基酸比较分析[J]. 中国酿造, 2019, 38(4): 53-57. DOI:10.11882/j.issn.0254-5071.2019.04.011.
[20] 张璋, 赵腾飞, 李红霞, 等. 产淀粉酶芽孢杆菌的筛选、耐酸性驯化及淀粉酶酶学性质分析[J]. 中国酿造, 2024, 43(8): 74-79.DOI:10.11882/j.issn.0254-5071.2024.08.011.
[21] 姚元滋, 王荣荣, 梁萌, 等. 不同品种小麦对制作中高温大曲品质的影响[J]. 酿酒, 2026, 53(2): 97-100. DOI:10.3969/j.issn.1002-8110.2026.02.025.
[22] 薄涛, 吕娜, 杨凯环, 等. 白酒大曲发酵过程中微生物群落及功能研究进展[J]. 食品科学, 2023, 44(19): 385-393. DOI:10.7506/spkx1002-6630-20221020-196.
[23] 丁泽, 陈曦, 李金洋, 等. 酱香型高温大曲制作过程中微生物群落演替规律与风味物质变化[J]. 食品科学, 2025, 46(11): 115-124.DOI:10.7506/spkx1002-6630-20241114-109.
[24] 印丽, 邱树毅, 曹文涛, 等. 酱香型白酒核心产区大曲的酶系分析[J]. 现代食品科技, 2021, 37(3): 89-96. DOI:10.13982/j.mfst.1673-9078.2021.3.0749.
[25] 程银棋, 郑欣, 周陶鸿, 等. 异烟酸-巴比妥酸光谱法测定白酒中氰化物方法探讨[J]. 中国酿造, 2019, 38(8): 183-186. DOI:10.11882/j.issn.0254-5071.2019.08.036.
[26] 范文来, 徐岩. 白酒79个风味化合物嗅觉阈值测定[J]. 酿酒, 2011,38(4): 80-84. DOI:10.3969/j.issn.1002-8110.2011.04.034.
[27] 江南大学. 一株高产四甲基吡嗪的枯草芽孢杆菌及其发酵生产四甲基吡嗪的方法: 200810235366.1[P]. 2009-06-03.
[28] 邓阿玲, 唐杰, 朱楚天, 等. 黑色高温大曲在固态发酵过程中的微生物群落及风味化合物演替驱动机制[J]. 食品科学, 2024, 45(23):102-112. DOI:10.7506/spkx1002-6630-20240507-027.
[29] 梁慧珍, 卢延想, 刘正, 等. 高温大曲中高产吡嗪类物质芽孢杆菌的筛选与应用[J]. 中国酿造, 2022, 41(1): 116-122. DOI:10.11882/j.issn.0254-5071.2022.01.020.
[30] 商海林. 中高温大曲高产糖化酶及蛋白酶活力菌株的筛选与应用研究[D]. 济南: 齐鲁工业大学, 2024. DOI:10.27278/d.cnki.gsdqc.2024.000148.
[31] 肖文军, 杨迪非, 唐睿, 等. 沅陵碣滩茶的特色品质及生化特征成分分析[J]. 茶叶通讯, 2025, 52(1): 1-13. DOI:10.20178/j.cnki.ISSN1009-525X.2025.01.001.
[32] 余生玲, 杨岱霖, 郭辉祥, 等. 黑褐色大曲对酱香型白酒风味的影响研究[J]. 酿酒科技, 2025(10): 65-72. DOI:10.13746/j.njkj.2024261.
[33] 冯方剑, 唐维川, 杨官荣, 等. 不同产区酱香型大曲理化指标及风味成分的研究[J]. 酿酒, 2023, 50(5): 29-36. DOI:10.3969/j.issn.1002-8110.2023.05.008.
[34] 朱艳美, 陈亨业, 邓高琼, 等. 高温大曲白酒中吡嗪类化合物的检测、来源、香气和功能活性研究进展[J]. 食品工业科技, 2023,44(5): 420-428. DOI:10.13386/j.issn1002-0306.2022040256.
[35] Cai Wenchao, Wang Yurong, Ni Hui, et al. Diversity of microbiota, microbial functions, and flavor in different types of low-temperature Daqu[J]. Food Research International, 2021, 150: 110734. DOI:10.1016/j.foodres.2021.110734.
[36] 蒋泽元, 万义芳, 蒲驰中, 等. 高温大曲中高产淀粉酶和蛋白酶细菌的分离、鉴定及生物学特性研究[J]. 中国酿造, 2024, 43(2): 60-63.DOI:10.11882/j.issn.0254-5071.2024.02.010.
[37] Luo Shuai, Zhang Qiaoling, Yang Fan, et al. Analysis of the formation of sauce-flavored Daqu using non-targeted metabolomics[J]. Frontiers in Microbiology, 2022, 13: 857966. DOI:10.3389/fmicb.2022.857966.
[38] Zhu Qi, Chen Liangqiang, Pu Xiuxin, et al. The differences in the composition of Maillard components between three kinds of sauceflavor Daqu[J]. Fermentation, 2023, 9(9): 860. DOI:10.3390/fermentation9090860.
[39] Shi Gailing, Fang Chao, Xing Shuang, et al. Heterogenetic mechanism in high-temperature Daqu fermentation by traditional craft and mechanical craft: from microbial assembly patterns to metabolism phenotypes[J]. Food Research International, 2024, 187: 114327.DOI:10.1016/j.foodres.2024.114327.
[40] 倪兴婷, 孙细珍, 严玲, 等. 白酒中重要风味物质的味觉阈值测定[J]. 食品与发酵工业, 2025, 51(22): 376-381. DOI:10.13995/j.cnki.11-1802/ts.042865.
[41] 云敏, 邓杰, 李佳勇, 等. 酱香型郎酒酱味来源之分析推测[J]. 酿酒科技, 2009(1): 69-71.
[42] Zha Musu, Sun Baoguo, Wu Yiping, et al. Improving flavor metabolism of Saccharomyces cerevisiae by mixed culture with Wickerhamomyces anomalus for Chinese Baijiu making[J]. Journal of Bioscience and Bioengineering, 2018, 126(2): 189-195. DOI:10.1016/j.jbiosc.2018.02.010.
[43] 余航, 杨建平, 李觅, 等. 高温大曲风味成分研究进展[J]. 酿酒科技,2026(4): 105-108. DOI:10.13746/j.njkj.2025129.
[44] 李娜, 张海波, 叶明波, 等. 河套地区中高温大曲真菌类群结构解析[J]. 中国酿造, 2024, 43(12): 110-115. DOI:10.11882/j.issn.0254-5071.2024.12.016.
[45] 侯强川, 王玉荣, 王文平, 等. 茅台和尧治河高温大曲细菌群落结构差异及功能预测[J]. 食品与发酵工业, 2022, 48(1): 36-44.DOI:10.13995/j.cnki.11-1802/ts.027415.
[46] 杨月, 郝静, 朱华, 等. 北京与贵州地区2种高温大曲的品质差异研究[J]. 食品科学技术学报, 2025, 43(3): 135-148; 161. DOI:10.12301/spxb202400086.
[47] 崔梦君, 郭壮, 杜新勇, 等. 基于PacBio SMRT测序及纯培养技术揭示德州地区不同类型大曲细菌群落差异[J]. 食品与发酵工业, 2026,52(3): 196-205. DOI:10.13995/j.cnki.11-1802/ts.043079.
[48] Nam Y D, Lee S Y, Lim S I. Microbial community analysis of Korean soybean pastes by next-generation sequencing[J]. International Journal of Food Microbiology, 2012, 155(1/2): 36-42. DOI:10.1016/j.ijfoodmicro.2012.01.013.
[49] 王玉荣, 侯强川, 田龙新, 等. 基于纯培养和超高深宏基因组测序技术分析茅台镇两企业高温大曲微生物多样性差异[J]. 食品科学,2024, 45(4): 108-115. DOI:10.7506/spkx1002-6630-20230602-008.
[50] 丁润月, 李姝, 魏阳, 等. 不同颜色高温大曲形成机理及特性差异研究进展[J]. 食品与发酵工业, 2025, 51(11): 376-384. DOI:10.13995/j.cnki.11-1802/ts.040518.
[51] 梁二宏, 李金洋, 李微微, 等. 3种高温大曲功能特征与微生物群落结构差异性分析[J]. 食品科学, 2024, 45(21): 166-175. DOI:10.7506/spkx1002-6630-20240208-068.
[52] Zhu Chutian, Cheng Yuxin, Shi Qili, et al. Metagenomic analyses reveal microbial communities and functional differences between Daqu from seven provinces[J]. Food Research International, 2023,172: 113076. DOI:10.1016/j.foodres.2023.113076.
[53] 王鑫, 王俊麟, 彭东, 等. 不同颜色高温大曲真菌多样性及其与理化品质关联性研究[J]. 食品与发酵工业, 2026, 52(2): 266-274.DOI:10.13995/j.cnki.11-1802/ts.042668.
[54] 王玉荣, 侯强川, 田龙新, 等. 高温大曲真菌群落结构及其感官特性解析[J]. 食品与发酵工业, 2024, 50(15): 56-62. DOI:10.13995/j.cnki.11-1802/ts.037170.
[55] 杨军林, 杨少娟, 吴成, 等. 基于熵权法结合模糊数学法评价贮藏期高温大曲综合品质及其后熟机理[J]. 食品科学, 2025, 46(9): 48-62.DOI:10.7506/spkx1002-6630-20241015-086.
[56] 任婷婷, 晏培, 山其木格, 等. 控温控湿高温大曲在制酒生产过程中的应用[J]. 食品科学, 2025, 46(7): 151-161. DOI:10.7506/spkx1002-6630-20240809-080.
[57] Zhang Yuandi, Xu Jingguo, Jiang Yingli, et al. Microbial characteristics and metabolite profiles of high-temperature Daqu in different maturation stages[J]. World Journal of Microbiology and Biotechnology, 2022, 38(12): 234. DOI:10.1007/s11274-022-03428-9.
[58] 冯智伟, 郭松波, 孙朋朋, 等. 酱香型白酒高温大曲贮曲过程理化性质与微生物演替规律分析[J]. 中国酿造, 2024, 43(9): 44-49.DOI:10.11882/j.issn.0254-5071.2024.09.007.