生物胺(biogenic amines,BAs)是一类由氨基酸经脱羧反应生成的含氮有机化合物[1-2]。适量摄入BAs可促进人体生长代谢和增强免疫功能[3],但若过量摄入则可能引发过敏及心血管系统并发症等健康风险[4-5]。在肉制品、乳制品和海产品等多种食品中,酪胺是检出率最高、风险最突出的BAs之一。当食品中酪胺含量超过125 mg/kg时,可能对人体产生危害,欧洲食品安全局规定其在食品中的限量为100~800 mg/kg[5]。然而,当前各类发酵食品中酪胺超标现象仍较为普遍[6]。因此,如何有效降低发酵食品中酪胺的含量,已成为当前食品安全领域的研究热点。
目前,针对食品中酪胺的管控手段主要依赖于控制原料质量、添加外源抑制剂、优化工艺参数及接种发酵剂等[6-7]。然而,原料质量控制难以完全避免后续微生物污染导致的酪胺积累,外源添加物还可能破坏食品原有风味,工艺参数优化则因气候等外部因素难以实现稳定调控[8]。相比之下,发酵剂凭借其天然、高效且与发酵体系相容性好等特点,已逐渐成为BAs降解领域的研究热点。例如,张惠超等[9]从新疆熏马肠中分离的枯草芽孢杆菌(Bacillus subtilis)对酪胺的降解率为64.33%;刘雨萱[10]从四川腊肉中分离筛选的植物乳植杆菌(Lactiplantibacillus plantarum)R3对酪胺的降解率达70.28%。上述研究结果表明,L. plantarum及B. subtilis在调控发酵食品酪胺含量方面具有较好的应用前景。但是,单菌发酵在实际应用中常面临环境适应性弱、易受杂菌污染等问题[11]。相比之下,复合菌剂不仅具有更稳定的发酵体系,还可通过营养竞争等机制有效抑制产胺菌生长,从而保障食品安全,也更契合工业化生产的需求[8,12-13]。Yu Tao等[14]研究发现,B. subtilis 168自溶释放的血红素能够激活L. plantarum SDMCC050204-pL157的过氧化氢酶,缓解其氧化应激损伤并提升菌体的存活能力。其中L. plantarum和B. subtilis之间存在代谢水平上的种间互作效应,揭示由二者构建的复合菌剂在控制发酵食品中酪胺积累方面具有良好的应用潜力。
基于此,本研究选取前期从发酵道菜中分离筛选得到的2株具有高效降解BAs能力的菌株(L. plantarum Z3(LpZ3)和B. subtilis LS1-003-016(Bs16)),在系统评估其单菌酪胺降解能力及总胺降解能力的基础上构建复合菌剂Z316,重点探究其对酪胺的降解效能,并进一步优化发酵工艺参数,旨在为后续发酵食品中酪胺含量的有效控制和产业化应用提供理论依据。
1 材料与方法
1.1 材料与试剂
LpZ3、Bs16保藏于贵州省生态特色食品新质化加工与贮藏全省重点实验室;色胺、β-苯乙胺、腐胺、组胺、尸胺、酪胺、亚精胺、丙酮(均为分析纯),乙腈、丹酰氯(均为色谱级) 上海麦克林生化科技股份有限公司;HCl、NaOH、NaHCO3、氨水(均为分析纯) 成都金山化学试剂有限公司。
LB琼脂培养基:蛋白胨10.0 g、酵母粉5.0 g、氯化钠10.0 g、琼脂15.0 g,pH 6.8~7.2,水1 000 mL;去掉琼脂即为LB肉汤培养基;120 ℃灭菌20 min;
含BAs的LB液体培养基(BAs-LB培养基):蛋白胨10.0 g、酵母粉5.0 g、氯化钠10.0 g、琼脂15.0 g、BAs(色胺、β-苯乙胺、腐胺、尸胺、组胺、酪胺、亚精胺)各0.1 g,pH 6.8~7.2。120 ℃灭菌20 min。
1.2 仪器与设备
J-CJ-IFD型超净工作台 苏州市金净净化设备科技有限公司;YXQ-LS-75G立式压力蒸汽灭菌锅、BMJ-250C培养箱 上海博迅实业有限公司医疗设备厂;Varioskan Flash超微量全波长读数酶标仪 美国Thermo Fisher Scientific公司;ZQPL-200立式振荡培养箱全温摇床 天津市莱玻特瑞仪器设备有限公司;Essentia LC-16高效液相色谱系统(配有可变波长紫外检测器和Rev.A.06.03色谱工作站) 日本岛津公司。
1.3 方法
1.3.1 LpZ3、Bs16与复合菌剂Z316种子液制备
将LpZ3与Bs16分别接种在LB琼脂培养基中,于37 ℃静置培养24 h后,挑取形态典型的单菌落分别转接至LB液体培养基中,于37 ℃、160 r/min振荡培养12 h活化。上述活化步骤重复至第3次,待发酵液OD600 nm值达到0.8时,将其作为LpZ3与Bs16的种子液。将LpZ3与Bs16种子液按1∶1(V/V)混合,即制得复合菌剂Z316种子液。
1.3.2 LpZ3与Bs16拮抗作用测定
参照胡羚等[15]的方法,采用平板交叉划线法进行拮抗实验,以评估LpZ3与Bs16之间的相互作用。将活化后的LpZ3菌悬液在LB琼脂培养基上划2条平行线,待培养基表面稍干后,垂直于LpZ3的划线方向划线接种Bs16菌悬液,形成4个交点。随后,将平板置于37 ℃恒温条件下培养24 h,观察交叉点菌落生长情况。若所有交点均未出现透明抑菌圈,即可判定两菌株间无拮抗作用;若任一交叉点出现明显透明抑菌圈,则判定两菌株间存在拮抗作用。
1.3.3 混合BAs胁迫下LpZ3、Bs16与复合菌剂Z316生长特性测定
将1.3.1节制备的种子液分别以1%(V/V)接种量接入30 mL BAs-LB培养基中,37 ℃、160 r/min振荡培养7 d,期间每隔24 h进行无菌取样,测定培养液OD600 nm值,以评估混合BAs胁迫对LpZ3、Bs16及复合菌剂Z316生长特性的影响。
1.3.4 LpZ3、Bs16与复合菌剂Z316 BAs降解能力分析
将1.3.1节制备的各种子液接种于BAs-LB培养基中作为实验组,以不接菌BAs-LB培养基作为对照组。将各处理组置于37 ℃、160 r/min振荡培养7 d,期间每隔24 h进行无菌采样。样品经1 500 r/min离心5 min后,收集上清液,测定BAs含量。连续7 d监测LpZ3、Bs16与复合菌剂Z316酪胺降解率和总胺降解率变化,以评估其BAs降解能力。
1.3.5 高效液相色谱法测定BAs含量
采用0.1 mol/L HCl分别将色胺、β-苯乙胺、尸胺、腐胺、组胺、酪胺、亚精胺配制成1 000 mg/L的标准储备液。然后各取1 mL储备液置于棕色容量瓶中混合,用0.1 mol/L HCl定容至10 mL,并将其终质量浓度分别稀释至2.5、5.0、10.0、15.0、25.0、30.0、35.0 mg/L。参照徐智虎等[16]的方法,取1 mL混合标准液或待测样品进行丹磺酰氯衍生处理,添加200 μL 2 mol/L NaOH溶液,将pH值调节至碱性;随后,依次加入300 μL饱和NaHCO3缓冲液及2 mL 10 mg/mL丹磺酰氯氨基酸显色反应溶液,于40 ℃暗处反应45 min后,加入100 μL氨水终止反应;乙腈定容至5 mL,经0.22 μm滤膜过滤后,上机分析。以BAs质量浓度为横坐标、峰面积为纵坐标,分别绘制7种BAs的标准曲线。
色谱条件:Shimadzu C18-AQ型色谱柱(250 mm× 4.6 mm,5 μm);流动相A为水;流动相B为乙腈;进样量20 μL;柱温35 ℃;紫外检测波长254 nm,梯度洗脱程序参照文献[17]:初始(0 min)时,30% A,流速0.80 mL/min;运行至15 min时,25% A,流速提高至1.00 mL/min;至22 min时,15% A,流速保持1.00 mL/min;至25 min时,10% A,流速仍为1.00 mL/min。
1.3.6 酪胺及总胺降解率计算
按照1.3.4节和1.3.5节对样品进行处理和测定后,分别按式(1)(2)计算酪胺及总胺降解率:
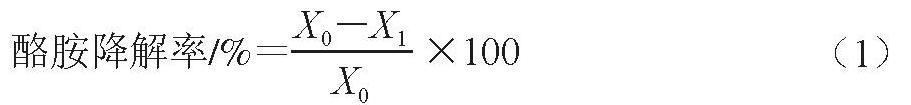
式中:X0、X1分别为对照组和实验组中酪胺质量浓度/(mg/L)。
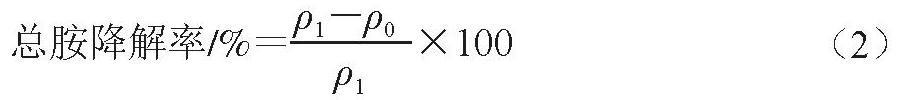
式中:ρ1、ρ0分别为对照组和实验组中总胺(色胺、β-苯乙胺、腐胺、尸胺、组胺、酪胺、亚精胺)质量浓度/(mg/L)。
1.3.7 复合菌剂Z316发酵工艺条件单因素试验
以发酵温度37 ℃、摇床转速160 r/min、菌株比例(LpZ3∶Bs16=1∶1)、接种量1%(V/V)为基础条件,培养至4 d时,测定发酵液酪胺降解率、总胺降解率和OD600 nm值,以酪胺降解率为核心评价指标,同时结合总胺降解率与菌体OD600 nm值进行综合分析。分别考察接种量(1%、2%、3%、4%、5%、6%、7%,V/V)、菌株比例(LpZ3∶Bs16)(1∶4、1∶3、1∶2、1∶1、2∶1、3∶1、4∶1)、发酵温度(17、22、27、32、37℃)及摇床转速(120、140、160、180、200 r/min)对复合菌剂Z316降解酪胺效果的影响。
1.3.8 复合菌剂Z316发酵工艺条件响应面试验
在单因素试验的基础上,以酪胺降解率(Y)作为响应值,选取菌株比例(A)、摇床转速(B)、发酵温度(C)构建3因素3水平响应面试验,因素与水平见表1。
表1 复合菌剂Z316发酵工艺响应面试验因素水平设计
Table1 Factor and level design for response surface experiments of fermentation parameters of composite microbial agent Z316
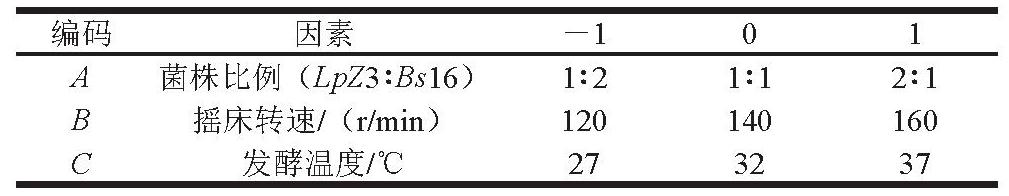
编码因素-101 A菌株比例(LpZ3∶Bs16)1∶21∶12∶1 B摇床转速/(r/min)120140160 C发酵温度/℃273237
1.4 数据处理
所有实验均独立重复3次,数据以x±s表示。采用SPSS软件进行单因素方差分析,以P<0.05表示差异具有统计学意义;采用Design-Expert 13软件进行响应面试验设计及相关模型的方差分析;采用Origin 2018软件完成图表绘制。
2 结果与分析
2.1 LpZ3与Bs16菌落形态及其相互作用
如图1所示,LpZ3菌落为浅黄色,呈圆形,质地黏稠、凸起且表面有光泽;Bs16菌落为白色,呈不规则圆形,表面干燥,中心呈脐状凸起,边缘呈波状。拮抗实验结果显示,LpZ3与Bs16在LB琼脂平板上共培养时,交界处未出现抑菌圈,且生长区域界限清晰,无相互抑制现象。故此表明,LpZ3与Bs16之间无拮抗作用。
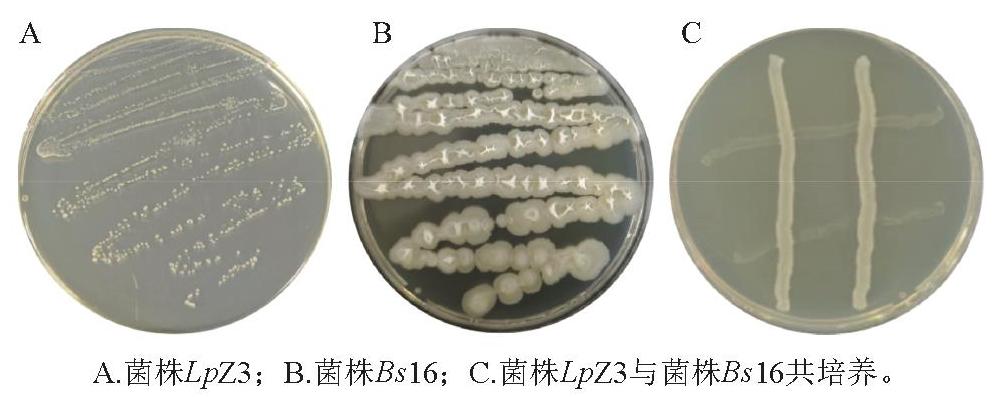
图1 菌株LpZ3与Bs16单菌落与共培养菌落形态
Fig.1 Single and co-cultured colony morphologies of strains LpZ3 and Bs16
2.2 混合BAs胁迫下LpZ3、Bs16与复合菌剂Z316生长特性
由图2可知,在混合BAs的胁迫条件下,LpZ3、Bs16及复合菌剂Z316的OD600 nm值均呈现先升高后下降的变化趋势,但三者的生长动力学存在一定差异。具体而言,LpZ3的OD600 nm值在第6天时达到峰值(1.270±0.004),较第1天仅增长23.86%;Bs16的OD600 nm值则在第4天时达到峰值(1.14±0.04)。相比之下,复合菌剂Z316在1~3 d的OD600 nm值虽低于2株单菌,但其生长速率较快,在4~5 d时OD600 nm值甚至超过单菌,表现出明显的生长优势。这一结果说明,LpZ3与Bs16在共培养过程中可能存在交叉喂养现象,并不存在拮抗作用,该结果与平板拮抗实验中观察到的无拮抗现象相互印证。相关研究亦表明L. plantarum与B. subtilis间存在代谢分工和协调作 用[18-19]。因此,可认为LpZ3与Bs16具备构建高效降解酪胺复合菌剂的潜力。
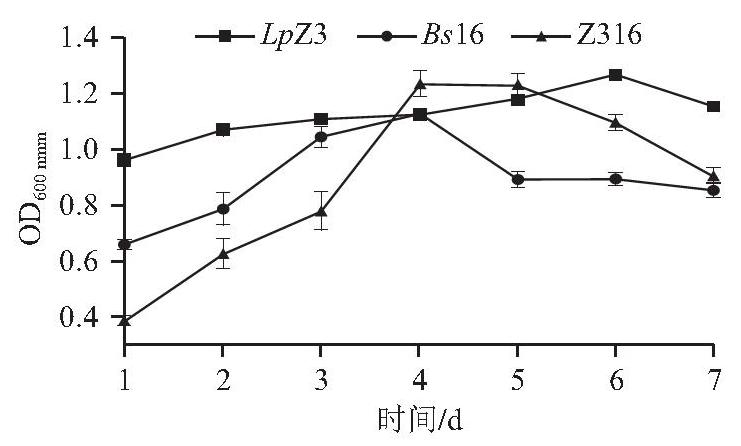
图2 混合BAs胁迫下LpZ3、Bs16与复合菌剂Z316生长曲线
Fig.2 Growth curves of LpZ3, Bs16 and composite microbial agent Z316 under mixed biogenic amine stress
2.3 LpZ3、Bs16与复合菌剂Z316 BAs降解能力
由图3A可知,LpZ3在发酵第2天时总胺降解率达到峰值((41.19±0.26)%),是第1天总胺降解率((1.85±0.45)%)的22.26倍(P<0.05)。结合生长曲线可知,该阶段LpZ3可能优先利用BAs-LB培养基中蛋白胨等营养物质进行快速增殖[20],待培养基中营养物质消耗殆尽时,多种降胺酶(胺氧化酶[21]、胺脱氢 酶[22]、漆酶[23]等)活性增强,开始利用BAs作为替代碳氮源。值得注意的是,LpZ3的酪胺降解率在第4天才达到峰值((13.62±1.49)%),该滞后现象可能与酪胺降解代谢途径的复杂性有关[24]。
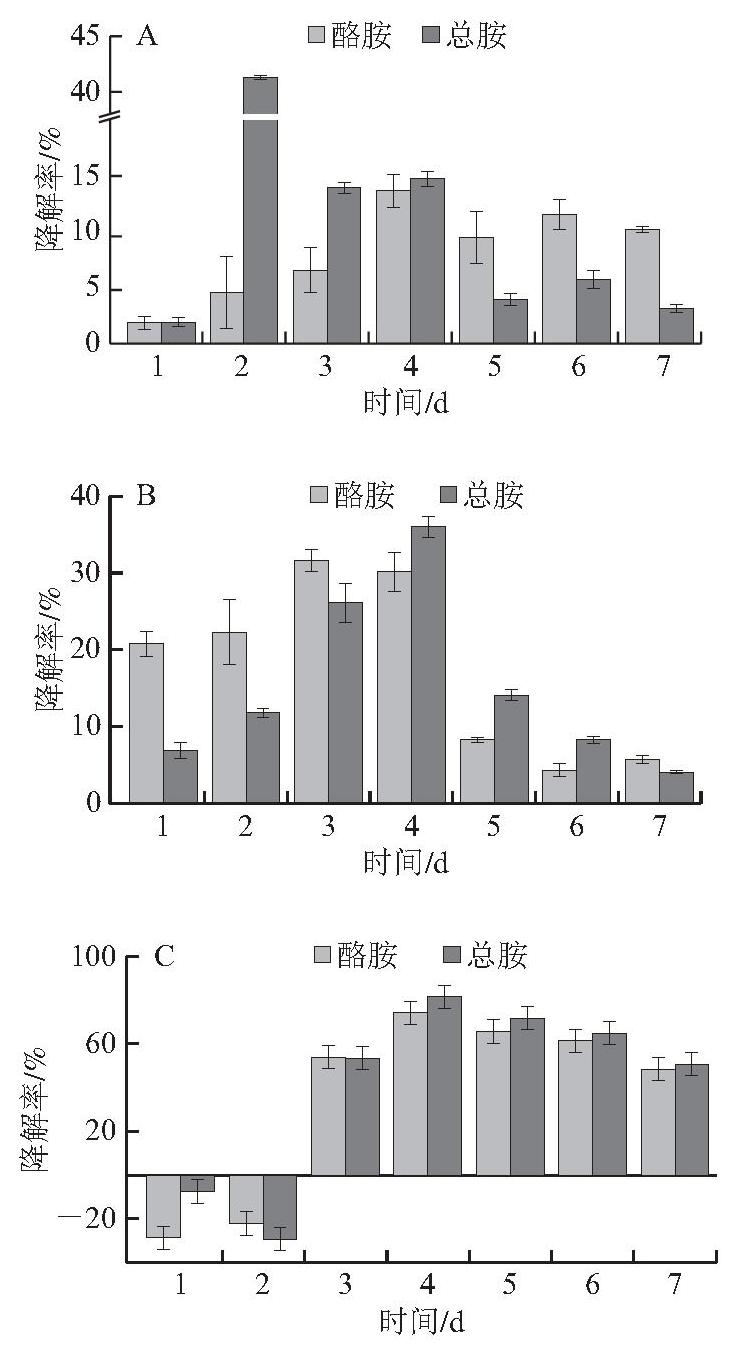
图3 LpZ3(A)、Bs16(B)与复合菌剂Z316(C)发酵过程中酪胺降解率和总胺降解率变化
Fig.3 Variations in tyramine and total biogenic amine degradation rates during fermentation by LpZ3 (A), Bs16 (B) and composite microbial agent Z316 (C)
由图3B可知,Bs16在发酵第3天时酪胺降解率达到峰值((31.49±1.49)%),总胺降解率则在第4天达最高值((35.87±1.32)%),此后因酶促反应的“底物限制效应”,酪胺与总胺降解率均呈下降趋势。对比图3A发现,在第1天时,Bs16的酪胺与总胺降解率分别是LpZ3的11.69倍和3.74倍。因此,相较于LpZ3而言,Bs16可能具备同时利用培养基中蛋白胨和BAs作为双重碳氮源的代谢能力,这一结论与Kwon等[25]的研究结果相似,其研究发现B. subtilis在补充外源碳源(葡萄糖、果糖和蔗糖)后,亚精胺降解能力提升19.28%~30.65%。
由图3C可知,复合菌剂Z316在发酵1~2 d内酪胺及总胺降解率均为负值,表明该阶段发酵体系内存在BAs合成现象。这可能是由于混菌代谢体系建立初期,菌群优先利用培养基中易降解的蛋白胨等营养底物进行快速增殖[20],进而诱导氨基酸脱羧酶过量表达,最终造成BAs积累[24]。相关文献亦证明,混菌体系在发酵初期存在显著的代谢时序差异与代谢调控失衡,氨基酸脱羧产胺通路通常较早启动,而BAs降解相关酶系的表达与激活相对滞后,这种代谢调控特征是导致发酵前期BAs短暂积累的关键原因[26-27],同时也反映了复合菌剂在环境适应阶段典型的代谢演替规律。BAs虽然可作为迟效氮源供菌体利用,但高浓度的BAs却会对微生物表现出一定抑制作用[17],这也解释了复合菌剂OD600 nm值在前期低于单菌的现象。随着微生物群落逐渐适应发酵环境,复合菌剂的降胺酶活性增强,酪胺和总胺降解率得以升高,酪胺和总胺降解率均在第4天升至最高值,分别为(73.88±2.11)%和(78.06±0.17)%。
综上,复合菌剂的BAs降解能力显著优于单菌体系(P<0.01),鉴于各菌株达到最大降解率的时间不同,比较各自发酵周期内的峰值降解率。结果显示,复合菌剂的总胺降解率分别为LpZ3和Bs16的1.89倍和2.18倍,酪胺降解率则分别为5.42倍和2.35倍,体现出明显的协同增效优势。结合图2可知,在第4天时复合菌剂Z316的OD600 nm值达到峰值,且高于单菌体系,进一步说明混菌体系可增强对复杂发酵环境的适应性,实现对营养物质的高效利用。基于上述结果,后续实验将统一以第4天时复合菌剂Z316的酪胺降解率作为核心评价指标,开展单因素试验以进一步优化关键工艺参数。
2.4 复合菌剂Z316发酵工艺优化单因素试验结果
2.4.1 接种量对复合菌剂Z316 BAs降解能力的影响
由图4可知,在仅改变接种量的条件下,复合菌剂Z316的酪胺降解率、总胺降解率和OD600 nm值均未出现显著变化趋势(P>0.05)。这可能是由于经过4 d培养后,低接种量组(接种量<4%)与高接种量组(接种量>4%)发酵环境对降胺酶活性的反馈抑制作用趋于相近,因而酪胺及总胺降解率均未表现出差异变化。综上,在接种量为1%时,复合菌剂Z316酪胺降解率最高((61.86±5.08)%),因此后续实验将选择接种量1%作为固定条件。
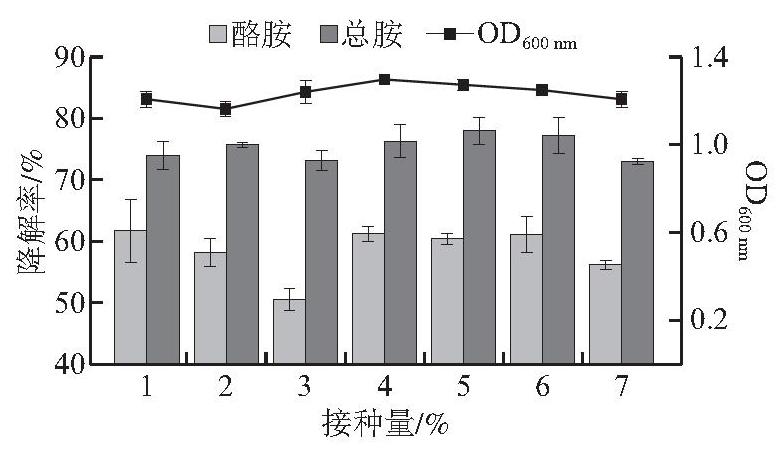
图4 不同接种量对复合菌剂Z316酪胺降解率、总胺降解率和 OD600 nm值的影响
Fig.4 Effects of different inoculation dosages on tyramine degradation rate, total biogenic amine degradation rate and OD600 nm values of composite microbial agent Z316
2.4.2 菌株比例对复合菌剂Z316 BAs降解能力的影响
由图5可知,LpZ3与Bs16比例为1∶1时,复合菌剂Z316的酪胺降解率和总胺降解率均达到最大,分别为(70.05±0.43)%和(80.74±1.66)%。菌株比例主要通过调控种群结构和代谢互作效率影响发酵过程的终产物特性[11]。在菌株比例为1∶1时,LpZ3与Bs16能够在混菌发酵的环境中维持最佳代谢稳态,从而实现协同降解酪胺的效率最大化。综上,本研究确定1∶1为复合菌剂Z316降解酪胺的最适菌株比例。
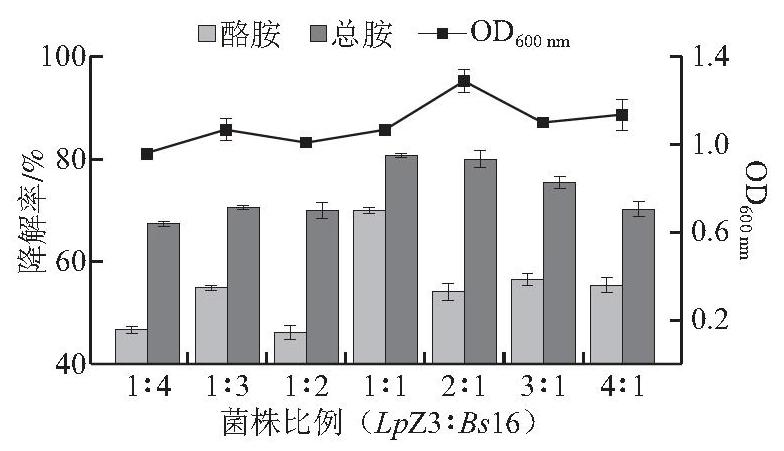
图5 不同菌株比例对复合菌剂Z316酪胺降解率、总胺降解率和OD600 nm值的影响
Fig.5 Effects of different strain volume ratios on tyramine degradation rate, total biogenic amine degradation rate and OD600 nm values of composite microbial agent Z316
2.4.3 发酵温度对复合菌剂Z316 BAs降解能力的影响
由图6可知,发酵温度在17~27 ℃之间升高时,复合菌剂Z316的酪胺与总胺降解率显著上升(P<0.05);在27~32 ℃时,增幅趋于平缓,并于32 ℃时达到峰值。这一现象可能是由于在27~32 ℃范围内,复合菌剂中胺氧化酶、多铜氧化酶等降胺酶表现出较高活性[28-29]。研究表明,B. subtilis与L. plantarum的最适生长温度分别为25~37 ℃与30~37 ℃[30]。此外,该温度范围也有利于促进菌体间代谢底物(如醛类物质)与产物(如短链脂肪酸)的高效转运,避免因中间代谢产物的积累对降胺酶活性产生抑制[31]。综上,本研究确定32 ℃为复合菌剂Z316降解酪胺的最适发酵温度。
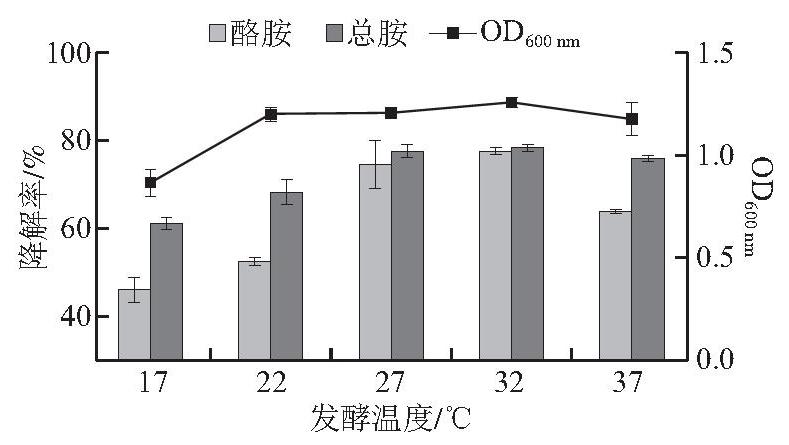
图6 不同发酵温度对复合菌剂Z316酪胺降解率、总胺降解率和OD600 nm值的影响
Fig.6 Effects of different fermentation temperatures on tyramine degradation rate, total biogenic amine degradation rate and OD600 nm values of composite microbial agent Z316
2.4.4 摇床转速对复合菌剂Z316 BAs降解能力的影响
由图7可知,复合菌剂Z316的酪胺降解率在摇床转速140 r/min时达到峰值((68.60±0.27)%);总胺降解率与OD600 nm值在160 r/min时达最高,分别为(77.08±1.28)%和1.34±0.03。这可能是因为140 r/min转速可促进混菌体系的稳定性、维持混菌发酵体系中溶氧量和营养物质的均匀性,从而提高酪胺降解率。综上,本研究确定140 r/min为复合菌剂Z316降解酪胺的最适发酵摇床转速。
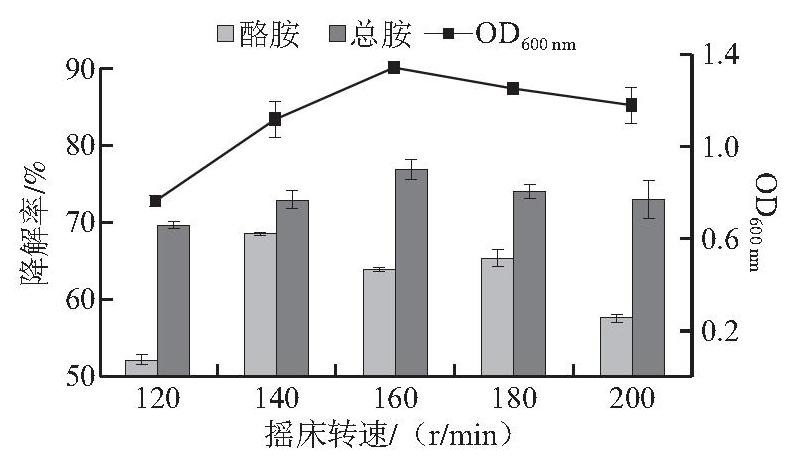
图7 不同摇床转速对复合菌剂Z316酪胺降解率、总胺降解率和 OD600 nm值的影响
Fig.7 Effects of different shaking speeds on tyramine degradation rate, total biogenic amine degradation rate and OD600 nm values of composite microbial agent Z316
2.5 复合菌剂Z316发酵工艺优化响应面试验结果
响应面试验结果如表2所示,运用Design-Expert 13分析实验结果,对表2数据进行多元二次回归拟合,得到二次元回归方程为:Y=3.51A+4.63B+14.49C+0.12AB+ 0.28AC-0.01BC-11.35A2-0.02B2-0.23C2-472.31。
表2 Box-Behnken试验设计及结果
Table2 Box-Behnken design and the corresponding results
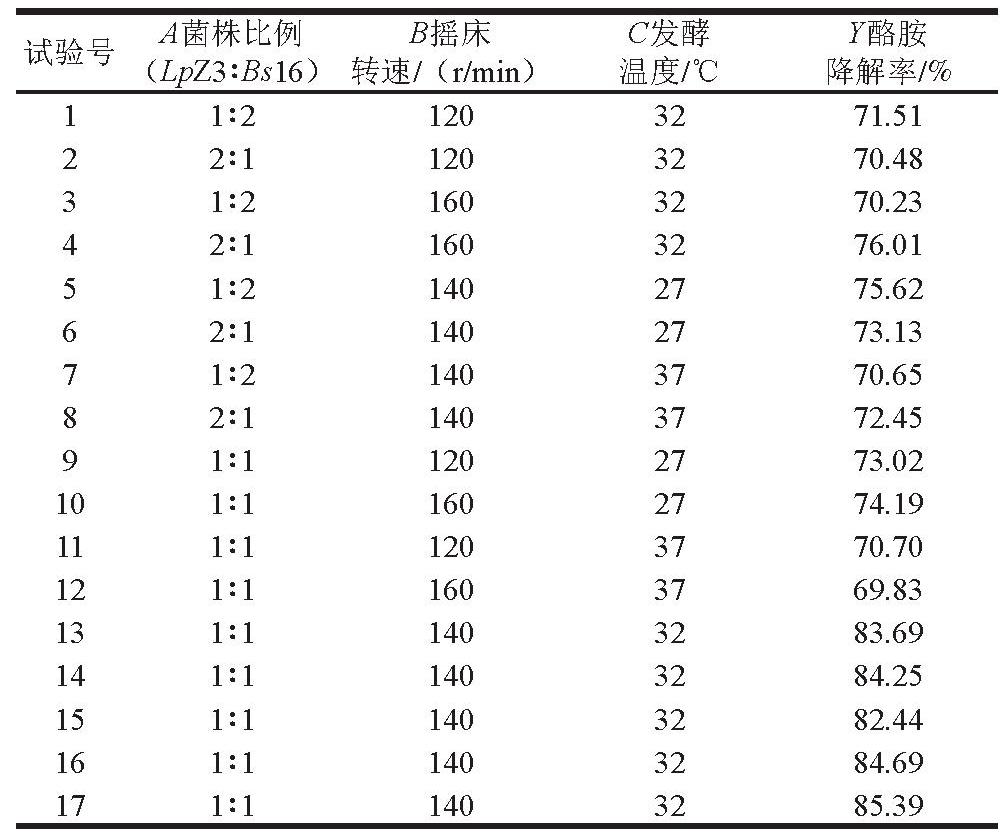
试验号A菌株比例B摇床C发酵Y酪胺(LpZ3∶Bs16)转速/(r/min)温度/℃降解率/%11∶21203271.5122∶11203270.4831∶21603270.2342∶11603276.0151∶21402775.6262∶11402773.1371∶21403770.6582∶11403772.4591∶11202773.02101∶11602774.19111∶11203770.70121∶11603769.83131∶11403283.69141∶11403284.25151∶11403282.44161∶11403284.69171∶11403285.39
由表3可知,模型P<0.000 1,表明模型极显著,失拟项P=0.449 4>0.05,不显著,说明回归方程拟合程度较好。决定系数R2=0.983 4,调整决定系数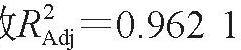 , 说明实际值与预测值相关性较高。方差分析结果显示,二次项A2、B2、C2对酪胺降解率均具有极显著影响(P< 0.01),一次项C、交互项AB对酪胺降解率具有显著影响(P<0.05)。温度是调控菌株生长及代谢表型的重要环境因子,可直接影响微生物细胞膜流动性、代谢酶的构象与活性[5];菌株比例则决定复合菌群的结构组成、种间互作关系及整体代谢能力[32-33],而摇床转速则通过改变发酵体系的溶氧水平和物质传质效率影响菌株的生长速率及代谢活性。结合F值排序(发酵温度>摇床转速>菌株比例)可知,在复合菌剂Z316发酵体系中,发酵温度是优化酪胺降解率的关键调控因素;在此基础上,合理调节菌株比例与摇床转速,有助于改善菌群生长环境并促进菌株间协同作用,提高酪胺降解能力。除上述显著因素外,其余因素因P>0.05,对酪胺降解率影响相对微弱。
表3 回归模型方差分析
Table3 Analysis of variance for regression model
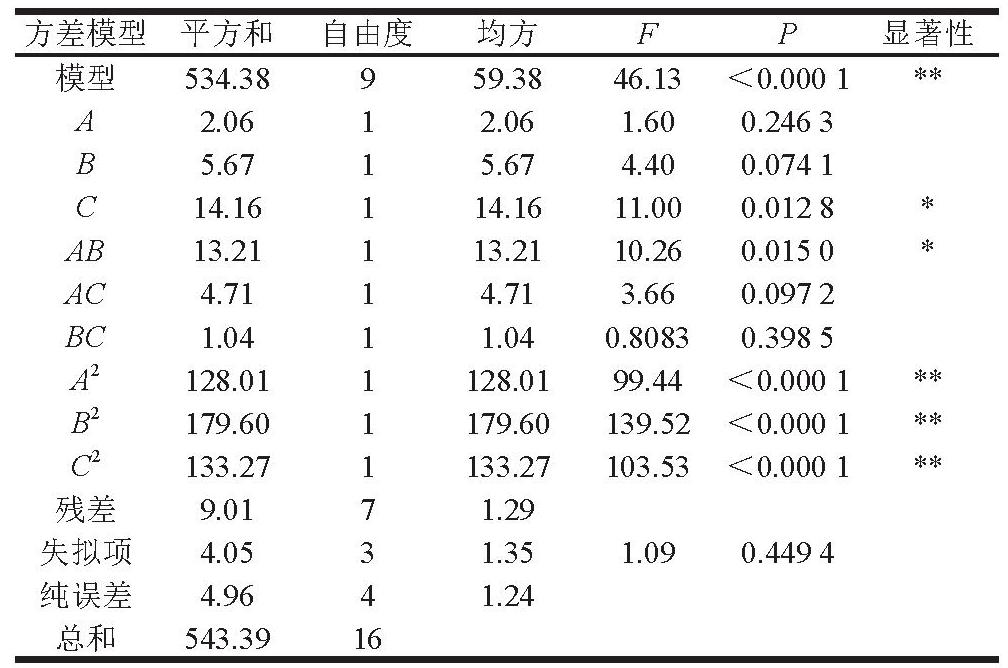
AB13.21113.2110.260.015 0*AC4.7114.713.660.097 2 BC1.0411.040.80830.398 5 B 2179.601179.60139.52<0.000 1**失拟项4.0531.351.090.449 4纯误差4.9641.24总和543.3916方差模型平方和自由度均方FP显著性模型534.38959.3846.13<0.000 1**A2.0612.061.600.246 3 B5.6715.674.400.074 1 C14.16114.1611.000.012 8*A2128.011128.0199.44<0.000 1**C2133.271133.27103.53<0.000 1**残差9.0171.29
注:*.影响显著(P<0.05);**.影响极显著(P<0.01)。
等高线由响应面在水平下方投影而成,等高线呈椭圆形说明这2种因素有较显著的交互作用,呈现圆形则说明不显著[34]。由图8可知,AB因素之间交互作用对酪胺降解率影响显著,这与表3结果一致。
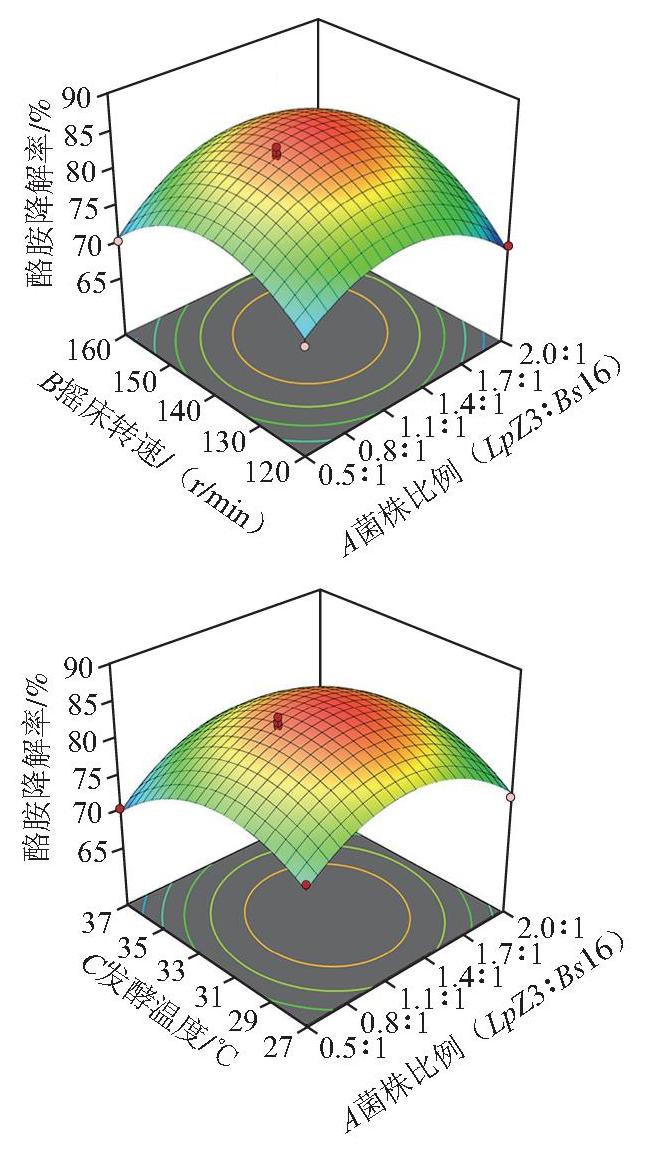
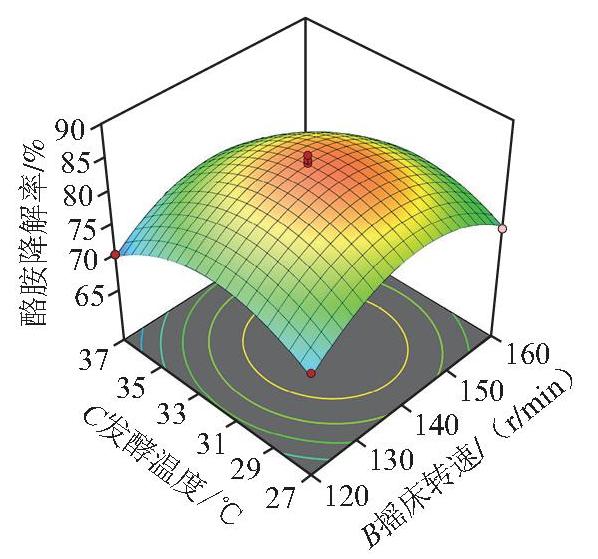
图8 各因素交互作用对复合菌剂Z316酪胺降解率的影响
Fig.8 Interactive effects of various factors on tyramine degradation rate of composite microbial agent Z316
优化后发酵工艺条件为:发酵温度31.39 ℃、培养转速141.53 r/min、菌株比例1.28∶1,在此条件下优化后Z316的降解酪胺效率为85.10%。考虑到实际操作的便捷性,将发酵温度调整为31 ℃、培养转速为141 r/min、菌株比例为1∶1,进行3次平行实验,优化后Z316对酪胺的降解率为85.20%,与预测值拟合性较好。
3 结 论
本研究通过单因素试验及响应面试验对复合Z316降解酪胺的发酵条件进行优化,确定其最佳发酵工艺参数为:发酵温度31 ℃、摇床转速141 r/min、LpZ3与Bs16菌株比例1∶1(V/V)。在该条件下,复合菌剂Z316的实际降解率为85.20%,是优化前(73.88%)的1.15倍。这一结果揭示了LpZ3与Bs16间具有明显的协同降解酪胺作用,且受温度、培养转速和菌株比例的影响,优化复合菌剂Z316的生理代谢环境可最大化发挥其协同降解酪胺效能。然而,本研究基于体外模拟体系,并未在实际食品基质中进行效果验证,且未深入探究酪胺降解的分子机制。后续将聚焦实际食品基质,验证复合菌剂应用效果并优化其适配性;同时深入解析降解代谢途径及关键酶活性,挖掘功能基因,为其工业化应用奠定基础。
[1] Del Rio B, Fernandez M, Redruello B, et al. New insights into the toxicological effects of dietary biogenic amines[J]. Food Chemistry,2024, 435: 137558. DOI:10.1016/j.foodchem.2023.137558.
[2] 张杨, 李歆宇, 马新秀, 等. 生物胺降解菌Staphylococcus xylosus JCM 2418的特性研究及应用[J]. 食品研究与开发, 2023, 44(20):191-198. DOI:10.12161/j.issn.1005-6521.2023.20.026.
[3] 周纯洁, 苏敏. 液相色谱-串联质谱法测定调味品中污染物的研究进展[J]. 中国调味品, 2023, 48(12): 217-220. DOI:10.3969/j.issn.1000-9973.2023.12.035.
[4] Omer A K, Mohammed R R, Ameen P S M, et al. Presence of biogenic amines in food and their public health implications: a review[J]. Journal of Food Protection, 2021, 84(9): 1539-1548. DOI:10.4315/JFP-21-047.
[5] Commission Regulation (EC) No 2073/2005 Microbiological criteria for foodstuffs[S].
[6] Gao Xianli, Li Can, He Ronghai, et al. Research advances on biogenic amines in traditional fermented foods: emphasis on formation mechanism, detection and control methods[J]. Food Chemistry, 2023,405: 134911. DOI:10.1016/j.foodchem.2022.134911.
[7] 何璇, 马堃, 哈斯, 等. 食品中生物胺形成与抑制的研究进展[J].食品与发酵工业, 2021, 47(18): 294-300. DOI:10.13995/j.cnki.11-1802/ts.026163.
[8] 兰沁洁, 裴慧洁, 邓霖, 等. 发酵肉制品中酪胺形成途径与控制方法的研究进展[J]. 食品工业科技, 2024, 45(6): 380-388. DOI:10.13386/j.issn1002-0306.2023040241.
[9] 张惠超, 卢士玲, 马宇霞, 等. 熏马肠成熟过程中产生物胺氧化酶菌对生物胺作用的研究[J]. 现代食品科技, 2015, 31(6): 122-128.
[10] 刘雨萱. 传统四川腊肉中生物胺减除菌株的筛选及初步应用[D].雅安: 四川农业大学, 2022. DOI:10.27345/d.cnki.gsnyu.2022.000045.
[11] Banicod R J S, Ntege W, Njiru M N, et al. Production and transformation of biogenic amines in different food products by the metabolic activity of the lactic acid bacteria[J]. International Journal of Food Microbiology, 2025, 428: 110996. DOI:10.1016/j.ijfoodmicro.2024.110996.
[12] 王艺欣, 张健, 井月欣, 等. 复合菌制剂设计及其在食品发酵中应用的研究进展[J]. 食品工业科技, 2021, 42(20): 431-439.DOI:10.13386/j.issn1002-0306.2020090103.
[13] Chen Nuo, Fu Weiyi, Jiang Li, et al. Metatranscriptomics reveals the effect of fermentation by Pediococcus acidilactici and Rhizopus oryzae on the quality of mutton sausages and the mechanism of odor metabolism[J]. Food Chemistry, 2025, 477: 143472. DOI:10.1016/j.foodchem.2025.143472.
[14] Yu Tao, Kong Jian, Zhang Li, et al. New crosstalk between probiotics Lactobacillus plantarum and Bacillus subtilis[J]. Scientific Reports,2019, 9: 13151. DOI:10.1038/s41598-019-49688-8.
[15] 胡羚, 张惠玲, 周慧宁, 等. 马铃薯淀粉汁水混菌发酵条件优化及应用[J]. 食品与生物技术学报, 2023, 42(10): 63-72. DOI:10.12441/spyswjs.20210719001.
[16] 徐智虎, 王雪郦, 刘雪婷, 等. 贵州镇远道菜中生物胺降解菌的筛选及鉴定[J]. 食品与发酵工业, 2022, 48(7): 126-133. DOI:10.13995/j.cnki.11-1802/ts.028071.
[17] 王雪郦, 雷超, 申开卫, 等. 干酪乳杆菌(Lactobacillus casei) FV006对发酵食品中生物胺的降解性能[J]. 食品工业科技, 2023, 44(14):137-144. DOI:10.13386/j.issn1002-0306.2022090136.
[18] Chen Qianqian, Liu Bo, Liu Guohong, et al. Effect of Bacillus subtilis and Lactobacillus plantarum on solid-state fermentation of soybean meal[J]. Journal of the Science of Food and Agriculture, 2023,103(12): 6070-6079. DOI:10.1002/jsfa.12683.
[19] Bai Yun, Fang Xianying, Jiang Yunpeng, et al. Sequential fermentation of Ginkgo biloba seeds by Bacillus subtilis natto and Lactobacillus plantarum enhanced nutrition, flavor and lipid-lowering activity[J].Journal of the Science of Food and Agriculture, 2025, 105(4): 2607-2620. DOI:10.1002/jsfa.14033.
[20] Sun Lina, Guo Wenrui, Zhai Yujia, et al. Screening and the ability of biogenic amine-degrading strains from traditional meat products in Inner Mongolia[J]. LWT-Food Science and Technology, 2023, 176:114533. DOI:10.1016/j.lwt.2023.114533.
[21] 邓斯予, 曹立民, 隋建新. 发酵食品加工与贮藏过程中生物胺的控制研究进展[J]. 食品安全质量检测学报, 2023, 14(1): 156-164.DOI:10.19812/j.cnki.jfsq11-5956/ts.2023.01.042.
[22] 王馨蕊, 汤回花, 刘毕琴, 等. 发酵蔬菜中生物胺控制技术研究进展[J]. 食品研究与开发, 2022, 43(14): 219-224. DOI:10.12161/j.issn.1005-6521.2022.14.028.
[23] 曹玉莹, 王爽, 刘怡宁, 等. 植物乳杆菌漆酶的酶学性质及其对生物胺的降解作用[J]. 食品科学, 2023, 44(12): 157-163. DOI:10.7506/spkx1002-6630-20221025-258.
[24] Wang Huiping, Li Mengtong, Kong Baohua, et al. Microorganismderived biogenic amine degrading enzymes: mechanisms, molecular modifications, and applications in fermented foods[J]. Food Chemistry,2025, 493: 146048. DOI:10.1016/j.foodchem.2025.146048.
[25] Kwon S H, Song Sumin, Lee H, et al. Sugar-induced modulation of biogenic amines formation and metabolic profiles during Bacillus subtilis fermentation[J]. Food Chemistry: X, 2025, 29: 102793.DOI:10.1016/j.fochx.2025.102793.
[26] Zhang Qifeng, Lan Guangqun, Tian Xueyi, et al. Effect of adding Bifidobacterium animalis BZ25 on the flavor, functional components and biogenic amines of natto by Bacillus subtilis GUTU09[J]. Foods, 2022, 11(17): 2674. DOI:10.3390/foods11172674.
[27] Guo Jian, Luo Wen, Fan Jun, et al. Co-inoculation of Staphylococcus piscifermentans and salt-tolerant yeasts inhibited biogenic amines formation during soy sauce fermentation[J]. Food Research International, 2020, 137: 109436. DOI:10.1016/j.foodres.2020.109436.
[28] 苏容容, 熊蝶, 袁岚玉, 等. 从泡菜中分离的植物乳杆菌P51降解亚硝酸盐影响因素的动态研究[J]. 中国调味品, 2020, 45(3): 27-32.DOI:10.3969/j.issn.1000-9973.2020.03.007.
[29] 柳佳娜, 张宾, 刘宇, 等. 高效降解生物胺乳酸菌的筛选、鉴定及特性研究[J]. 中国酿造, 2021, 40(7): 141-147. DOI:10.11882/j.issn.0254-5071.2021.07.026.
[30] 郭珍红, 管军军, 杨刚, 等. 混菌固态发酵菜籽粕提高可溶性蛋白的研究[J]. 食品与发酵工业, 2023, 49(13): 121-128. DOI:10.13995/j.cnki.11-1802/ts.034499.
[31] Taylor B R, Patsalo V, Okano H, et al. A metabolic sum rule dictates bacterial response to short-chain fatty acid stress[PP/OL]. bioRxiv(2022-08-31)[2026-01-15]. https://doi.org/10.1101/2022.08.31.506075.
[32] Qi Qi, Huang Jun, Zhou Rongqing, et al. Characterising the mechanism of abating biogenic amines accumulation by cocultures of Zygosaccharomyces rouxii and Tetragenococcus halophilus[J]. LWT-Food Science and Technology, 2022, 164: 113672. DOI:10.1016/j.lwt.2022.113672.
[33] Lee K, Kwon S H, Song Sumin, et al. Comparative analysis of volatile and non-volatile metabolites derived from Bacillus subtilis strains producing different levels of biogenic amines[J]. Metabolites, 2023,13(2): 219. DOI:10.3390/metabo13020219.
[34] 程波普, 葛亚庆, 戚桂娜, 等. β-甘露聚糖酶产生菌筛选及其发酵条件优化[J]. 中国酿造, 2025, 44(7): 155-160. DOI:10.11882/j.issn.0254-5071.2025.07.022.