生物胺是葡萄酒酿造过程中极易产生的一类代谢性污染因子。常见的生物胺主要有组胺、酪胺、腐胺等,过量摄入生物胺会引起血管扩张,导致人体出现头疼、心悸、腹痛、腹泻和呕吐等不良反应[1-2]。葡萄酒中含有多种生物胺,这些胺类化合物可能是随酿造原料进入酒体,也可能在酿造过程中由发酵生成,如来自果皮浸渍、乙醇发酵、陈酿等[3-4]。如果发酵过程中未进行合理有效地卫生管理导致杂菌污染,或在贮运过程中材料、器具贮藏环境过于潮湿,亦或发酵后酒泥与葡萄酒分离不及时等,均有可能导致酒体生物胺快速产生和积累[2,5]。
针对葡萄酒中生物胺积累问题,固定化酶技术为其解决提供了新的技术思路。通过将酶固定在载体上,可显著提高酶的稳定性、实现重复利用、简化分离过程、降低生产成本,进而满足连续化生产需求[6]。其中,共价结合法是饮料加工中最常用的酶固定化策略,可有效防止酶在反应过程中脱落[6]。近年来,固定化酶在酒类酿造领域的应用日益广泛,涉及香气改善、蛋白质稳定及不良代谢产物去除等多个方面[7]。在葡萄酒酿造中,固定化β-葡萄糖苷酶可通过水解糖苷前体释放游离单萜烯显著提升酒体香气[8-9];固定化蛋白酶可替代膨润土澄清工艺,减少蛋白质浑浊[10];固定化脲酶能高效降解尿素,将氨基甲酸乙酯前体降至安全水平[11];固定化葡萄糖氧化酶和过氧化氢酶则用于降低葡萄酒的乙醇体积分数[12],充分体现固定化酶技术在葡萄酒品质调控中的应用价值。
本课题组前期已开展相关基础研究,采用共沉淀法制备Fe3O4磁性纳米粒子,通过3-氨丙基三乙氧基硅烷进行氨基功能化修饰,利用戊二醛交联将3-磷酸甘油醛脱氢酶(glyceraldehyde-3-phosphate dehydrogenase,GAPDH)共价固定在载体表面,成功构建了GAPDH@Fe3O4固定化酶[13-14]。与游离酶相比,该固定化酶的热稳定性和pH值稳定性均显著提高,且在模拟体系中表现出良好的重复使用性,为其后续实际应用奠定了基础。然而,现有研究多聚焦于固定化酶的制备工艺优化和性质解析,针对其在真实酒体环境中的应用效果,尤其是对多种生物胺的降解效率,以及对酒体理化指标、非挥发性小分子物质含量的影响,尚缺乏系统性的评估。
代谢组学是近年来组学领域研究热点之一,主要针对样品中的低分子质量代谢产物进行检测和分析,目前广泛应用于药物学、微生物学、营养学、环境监测等领域[15-16]。近年来,该技术在葡萄酒相关研究领域的应用逐渐增多,该技术有助于系统解析发酵体系内复杂生化反应,阐释发酵过程内在代谢调控机制[17-18]。代谢组学常用的检测方法主要包括核磁共振技术、气相色谱-质谱联用技术、液相色谱-质谱联用等[14,19-21]。梁红敏等[22]利用组学技术研究谷胱甘肽对陈酿期间的‘霞多丽’葡萄酒小分子物质的影响,发现添加30 mg/L谷胱甘肽能够有效保护酒体中的多酚,并筛选出55种差异代谢物,包括33种非挥发性组分和22种挥发性组分。Ai Jian等[23]采用超高效液相色谱-四极杆质谱技术结合多元统计分析研究‘Roselle’葡萄酒发酵过程中的代谢差异组分,鉴定出8种花青素代谢产物,并推测花青素的代谢途径主要与类黄酮生物合成和花青素生物合成有关。Rocchetti等[24]利用超高效液相色谱-四极杆飞行时间质谱技术分析‘霞多丽’葡萄酒的酚类化合物组成特点,发现阿魏酸樟脑酯、咖啡酸和4-羟基苯甲酸是该品种葡萄酒含量较丰富的生物标志物,这些研究均验证了代谢组学技术在葡萄酒小分子物质分析中的可行性。
基于上述研究背景与现有研究不足,本研究借助代谢组学技术系统探究GAPDH@Fe3O4固定化酶处理前后葡萄酒品质的变化规律。在确保该固定化酶有效降解葡萄酒中生物胺的前提下,重点分析其对酒体组成,尤其是小分子代谢物质的组成与含量的影响,进而弥补当前领域内偏重固定化酶制备与性质解析、忽视其实际应用效果的研究缺口,将固定化酶的性能测试拓展至真实葡萄酒体系[25],从应用视角解析固定化酶的使用成效。此外,本研究的结果有助于揭示固定化酶在应用中的短板和不足,为后续固定化酶制备工艺优化、应用条件改良提供科学的数据支撑,推动固定化酶技术在葡萄酒品质调控领域的工业化应用,同时为葡萄酒生物胺控制提供新的技术路径与理论参考。
1 材料与方法
1.1 材料与试剂
葡萄酒 烟台张裕葡萄酿酒股份有限公司。
色胺、尸胺、组胺、酪胺、腐胺、苯乙胺、丹磺酰氯(纯度均≥99%) 美国Sigma公司;甲醇、乙腈(均为色谱纯) 美国TEDIA公司;无水乙醇、异丙醇、氯化亚铁、氯化铁、磷酸二氢钾、磷酸氢二钾、磷酸二氢钠、磷酸氢二钠等(均为分析纯) 国药集团化学试剂有限公司。
1.2 仪器与设备
LC-20AT高效液相色谱仪 日本岛津公司;UHPLC-Q Exactive超高效液相色谱-四极杆/静电场轨道阱高分辨质谱仪(配有电喷雾离子源及Xcalibur 1.2数据处理系统) 美国Thermo Fisher Scientific公司;LC-PHS-2B pH计 上海力辰仪器科技有限公司。
1.3 方法
1.3.1 GAPDH@Fe3O4制备
参考Sun Shuyang等[26]的方法制备GAPDH@Fe3O4。分别取FeCl2·4H2O 1.0 g、 FeCl3·6H2O 2.7 g于50 mL超纯水中充分溶解,用25%氨水调至pH 12。取上述溶液于70 ℃搅拌3 h,用永磁铁收集反应产物,洗涤后真空干燥。取Fe3O4颗粒0.5 g分散于150 mL乙醇中,依次加入25%氨水、超纯水、正硅酸乙酯,机械搅拌12 h。将纳米磁性颗粒洗净,加入200 mL异丙醇中,摇匀使其完全分散,取3-氨丙基三甲氧基硅烷1.5 mL溶于50 mL异丙醇,加入分散体系,40 ℃机械搅拌12 h,保证硅烷试剂与磁性颗粒充分接触反应,永磁体回收。将产物溶于磷酸盐缓冲液(0.1 mol/L、pH 7.0)中,40 kHz超声处理15 min,直至产物质量浓度达到10 mg/mL,向其中继续加入1.0%戊二醛溶液,40 ℃搅拌30 min,永磁体回收产物,并用磷酸盐缓冲液洗涤3次。
将上述制备的Fe3O4磁性纳米颗粒加入葡萄酒中,放置5 h,使用永磁体回收,用磷酸盐缓冲液洗涤3次,放入3 mg/mL GAPDH溶液中固定90 min,再使用永磁体分离出GAPDH@Fe3O4。
1.3.2 固定化酶降胺与回收
向葡萄酒中加入6种外源生物胺(色胺、尸胺、组胺、酪胺、腐胺、苯乙胺),每种生物胺加入量均为5 mg/L,将生物胺污染葡萄酒样品均分成9份,用于GAPDH@Fe3O4固定化酶降解酒体生物胺实验。每份待测葡萄酒样品为5 mL,加入GAPDH@Fe3O4固定化酶200 mg,18 ℃密闭反应5 h,每间隔30~60 min轻微振荡酒样,使酶与样品中的组分充分接触,每组设置2个平行。反应结束后使用永磁体回收GAPDH@Fe3O4固定化酶并用20 mmol/L磷酸缓冲液(pH 7.4)洗涤3次,保存。
1.3.3 葡萄酒基本理化指标测定
葡萄酒乙醇含量参照GB 5009.225—2023《食品安全国家标准 酒和食用酒精中乙醇浓度的测定》中的密度瓶法进行测定;总糖、总酸、挥发酸及干浸出物含量均参照GB/T 15038—2006《葡萄酒、果酒通用分析方法》测定,其中总糖采用直接滴定法,总酸与挥发酸采用氢氧化钠滴定法,干浸出物采用比重瓶法;酒体pH值采用pH计直接测定。
1.3.4 固定化酶重复使用性能评价
将200 mg GAPDH@Fe3O4固定化酶投入至5 mL被污染的葡萄酒样,充分分散并密闭反应5 h,反应结束后立即按1.3.2节所述方法回收GAPDH@Fe3O4固定化酶,再次投入另一个5 mL酒样中,开始下一轮降胺实验,重复进行10轮,每次设置平行样品2个。每轮降解反应结束后,立即将反应样品标记、保存于4 ℃冰箱中,用于后续分析。
为考察该固定化酶在重复使用过程中对酒体及生物胺降解效率的影响并兼顾分析效率,本研究取固定化酶1(W1)、6次(W6)和10次(W10)循环处理后的酒样进行分析,并以未添加生物胺的酒样作为空白对照。生物胺降解率按下式计算:
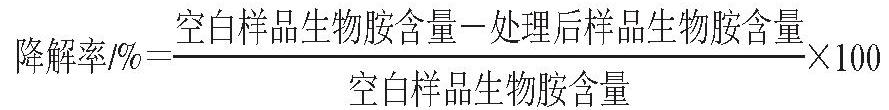
1.3.5 葡萄酒中生物胺含量测定
葡萄酒中生物胺含量参考Sun Shuyang等[26]的方法测定。利用丹磺酰氯对酒样中的生物胺进行衍生化,尼龙过滤膜过滤后进行高效液相色谱分析,色谱柱为Inertsil ODS-SP(250 mm×4.6 mm,5 μm)。流动相为甲醇(A)和超纯水(B)。梯度洗脱程序:0~7 min,55%~65% A;7~14 min,65%~70% A;14~27 min,70%~90% A;27~30 min,90%~100% A;30~36 min,100%~55% A;36~45 min,55% A;检测波长为254 nm。通过峰面积比(每种生物胺/内标物)和各生物胺的标准曲线对生物胺进行定量分析。
1.3.6 代谢组学分析
1.3.6.1 样品处理
将200 μL葡萄酒样品移至1.5 mL离心管中,加入含有0.02 mg/mL内标(L-2-氯苯丙氨酸)的800 μL提取液(甲醇∶乙腈=1∶1,V/V),涡旋混合30 s,5 ℃、40 kHz超声提取30 min。提取样品在-20 ℃保存30 min,13 000×g、4 ℃离心15 min,取上清液用氮气干燥;加入120 μL复溶液(乙腈∶水=1∶1,V/V)复溶吹干样品,涡旋30 s,5 ℃、40 kHz超声提取5 min,13 000×g、4 ℃离心10 min,将上清液转移到装有内套管的进样瓶中,上样分析。此外,每组样品分别移取20 μL上清液,混合后作为质控(quality control,QC)样本。
1.3.6.2 液相色谱-质谱(liquid chromatography-mass spectrometry,LC-MS)测定
使用超高效液相色谱-四极杆/静电场轨道阱高分辨质谱仪进行LC-MS分析。LC条件:色谱柱为ACQUITY UPLC HSS T3(100 mm×2.1 mm,1.8 μm);流动相A为95%水+5%乙腈(含0.1%甲酸),流动相B为47.5% 乙腈+47.5%异丙醇+5%水(含0.1%甲酸);流速0.40 mL/min,进样体积2 mL,柱温40 ℃。MS条件:样品经电喷雾电离,分别采用正、负离子扫描模式采集质谱信号,扫描范围m/z 70~1 050,加热温度400 ℃,毛细管温度320 ℃,喷雾电压:正离子模式3 500 V、负离子模式-2 800 V,分辨率70 000。
QC样本与待测样本进样体积保持一致,在检测过程中,每5~15个分析样本中插入1个QC样本,用于全程监测仪器分析体系的稳定性与数据重复性。
1.4 数据处理
采用SPSS 22.0、Origin 2021软件进行数据处理与分析。对于代谢组学数据,根据变量投影重要性值,结合单变量分析P值或差异倍数(≥2)筛选差异代谢物,将筛选得到的差异代谢物导入京都基因与基因组百科全书(Kyoto Encyclopedia of Genes and Genomes,KEGG)数据库(https://www.genome.jp/kegg)开展通路富集分析。
2 结果与分析
2.1 GAPDH@Fe3O4固定化酶降胺效果
向葡萄酒中投放GAPDH@Fe3O4并完成生物胺降解反应后,立即检测酒样的生物胺含量。由图1可知,对照组所有生物胺质量浓度均最高,特别是腐胺,达到8.54 mg/L, 其次是色胺和组胺,分别为5.91 mg/L和5.82 mg/L。经GAPDH@Fe3O4处理后,酒样中各生物胺含量均出现明显下降。与对照组相比,W1组色胺、尸胺、组胺、酪胺、腐胺的降解率分别达到79.1%、81.7%、79.1%、75.8%、77.1%;W6组各生物胺降解率为65.6%~72.2%;W10组各生物胺降解率略有降低,为53.4%~65.6%,可能与溶液环境干扰GAPDH构象或操作过程导致酶稳定性破坏、酶分子和纳米颗粒逐渐分离等有关,但整体酶活性仍维持在较高水平,证明GAPDH@Fe3O4复合材料具备良好的重复使用结构稳定性。
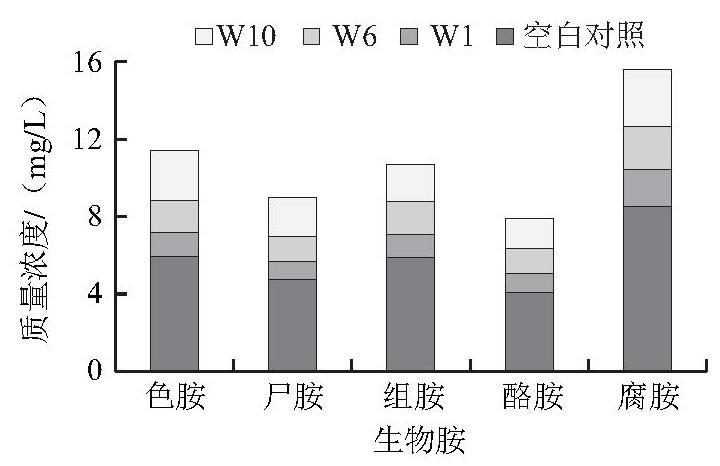
图1 不同循环使用次数下GAPDH@Fe3O4固定化酶对葡萄酒的降胺效果
Fig.1 Biogenic amine reduction performance of GAPDH@Fe3O4 immobilized enzyme on wine under different recycling cycles
随着重复使用次数的增加,GAPDH@Fe3O4对各生物胺的降解效率呈现缓慢下降趋势。分析其原因,可能是在重复使用和洗涤过程中,酶分子与磁性纳米粒子载体之间的共价键因机械振荡发生部分断裂,导致少量酶从载体上脱落,使总酶活性降低[27];此外,热失活和氧化失活也是GAPDH活性下降的重要原因。课题组前期研究发现,游离GAPDH在40 ℃以上活性开始显著下降,在70 ℃孵育1 h后仅剩不足10%的残余活性[28],表明温度升高是导致GAPDH活性衰减的重要因素。本研究中固定化酶在70 ℃时仍保持30.65%的活性,说明固定化策略有效提高了酶的热稳定性。
除此之外,在重复使用10次后,GAPDH@Fe3O4对各生物胺的降解率仍保持在50%以上,说明固定化酶的基本活性构象和催化功能得以维持。这一操作稳定性表现与同类研究结果具有可比性。例如,刘璟[29]将乙醇脱氢酶定向固定在磁性纳米粒子上,连续使用10个批次后酶相对活性仍保留46.88%;与其他固定化酶在酒类中的应用相比,本研究中固定化酶处理5 h即可达到约80%的降解率,而固定化脲酶处理葡萄酒需28.5 h才能将尿素降至安全水平[11],显示出GAPDH@Fe3O4在处理效率方面的优势。
2.2 GAPDH@Fe3O4固定化酶处理对葡萄酒基本理化指标的影响
由表1可知,在固定化酶处理结束后,所有样品的总糖质量浓度为6.4~6.5 g/L,乙醇体积分数为12.0%~12.2%,pH值为3.43~3.45,总酸质量浓度为5.85~5.88 g/L,挥发酸质量浓度为0.7~0.8 g/L,干浸出物质量浓度为23.6~23.7 g/L。这表明投入GAPDH@Fe3O4固定化酶前后,葡萄酒各项基本理化指标无明显差异,可认为酒体理化性质基本未发生变化,说明固定化酶对酒体指标无负面作用。这一结果与固定化果胶酶用于葡萄酒澄清的研究结论[30]一致,进一步证实固定化酶处理在酒类应用中的安全性。
表1 不同循环使用次数下GAPDH@Fe3O4固定化酶对葡萄酒理化指标的影响
Table1 Effects of GAPDH@Fe3O4 immobilized enzyme on physicochemical indicators of wine at different recycling cycles
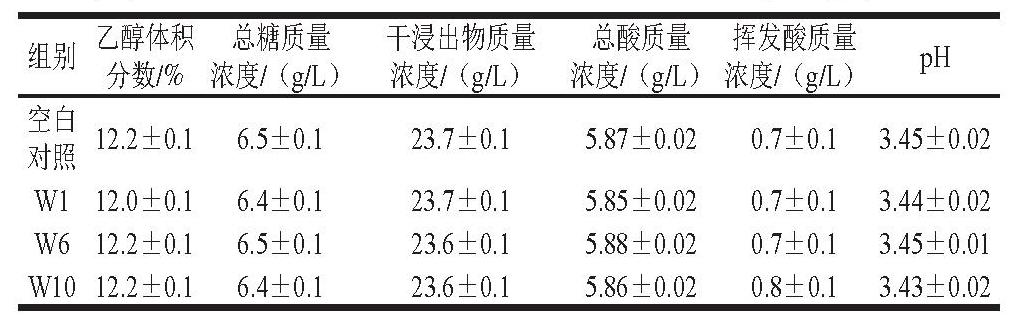
分数/%浓度/(g/L)浓度/(g/L)浓度/(g/L)浓度/(g/L)pH W112.0±0.16.4±0.123.7±0.15.85±0.020.7±0.13.44±0.02组别乙醇体积总糖质量干浸出物质量总酸质量挥发酸质量空白对照12.2±0.16.5±0.123.7±0.15.87±0.020.7±0.13.45±0.02 W612.2±0.16.5±0.123.6±0.15.88±0.020.7±0.13.45±0.01 W1012.2±0.16.4±0.123.6±0.15.86±0.020.8±0.13.43±0.02
2.3 GAPDH@Fe3O4固定化酶处理对葡萄酒非挥发性 小分子组分的影响
2.3.1 固定化酶处理前后葡萄酒小分子化合物组成
葡萄酒中含有丰富的初级和次级代谢产物,这些产物大多与葡萄酒的组成、生理功能及风味形成密切相关。初级代谢产物包括糖、氨基酸、脂肪酸、有机酸等,次级代谢产物包括生物碱、黄酮、酚酸、葡萄糖苷、多胺等[31-32]。通过LC-MS技术从固定化酶处理前后葡萄酒中检出57种非挥发性小分子化合物,主要包括酸类、酚类、醇类、酯类、氨基酸、糖苷类及其衍生化合物。由图2可知,这些化合物大致可分为21类,其中羧酸类及其衍生物、有机氧化合物、脂肪酰基化合物、黄酮类化合物种类最多,均占总化合物种类10%以上;其次是异戊二烯酯类、羟基酸及其衍生物、苯并吡喃类化合物,占比为3%~10%;除以上主要小分子组分外,葡萄酒中还检出少量生物碱、有机氮化合物、吡咯类和单宁类等小分子组分,占比均低于2%。
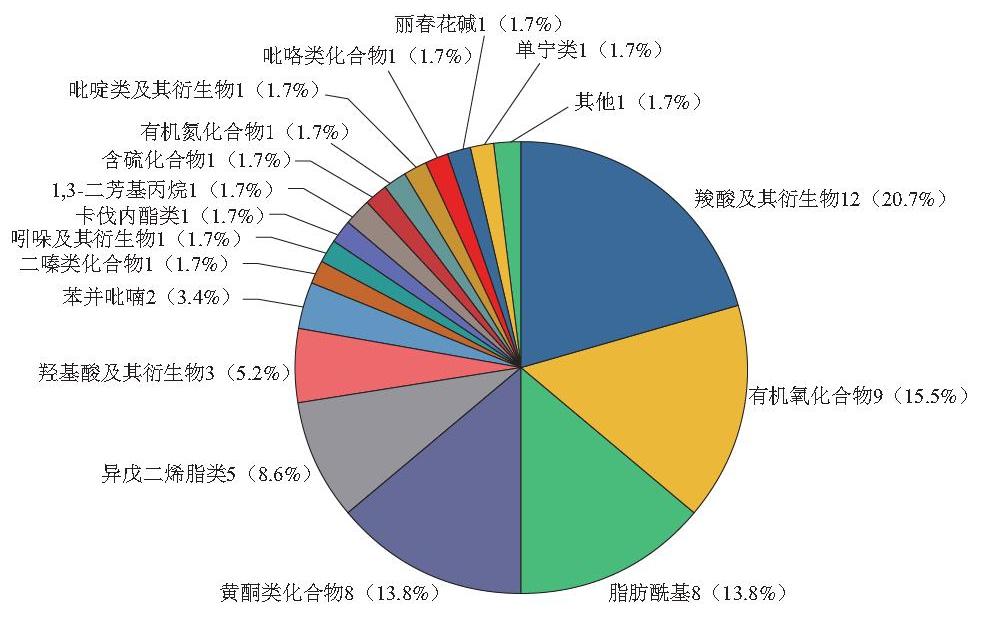
图2 GAPDH@Fe3O4固定化酶处理前后葡萄酒中非挥发性组分种类及占比
Fig.2 Categories and relative proportions of non-volatile components in wine before and after treatment with GAPDH@Fe3O4 immobilized enzyme
2.3.2 固定化酶处理前后葡萄酒差异组分聚类分析
对检出的34种主要代谢物(氨基酸、有机酸等)进行聚类分析,并通过热图呈现其相对含量变化。如图3所示,图中的化合物具有多样的生物活性,其中3-吲哚乙酸具有植物生长调节作用,可应用于果蔬催熟[33];2-酮基-D-葡萄糖酸是一种天然有机酸,是葡萄糖代谢的重要中间代谢物[34];吡咯-2-羧酸具有杀菌抑菌、抑制细胞生长等作用[35];葡萄糖酸对于调节葡萄酒的口感有一定的贡献[35];生物碱是一类含氮呈碱性的有机化合物,一般具有抗炎、抗肿瘤等生物学活性[36];龙胆酸是一种多酚类化合物,具有解热和缓解疼痛的功能[37];尿苷单磷酸是核苷酸中的一种,具有提高机体免疫力的活性[38];鞘氨酸是生物体内的一种细胞信号传导组分[39];另有多种组分的生物学功能尚不明确,如谷氨酰组氨酸等。
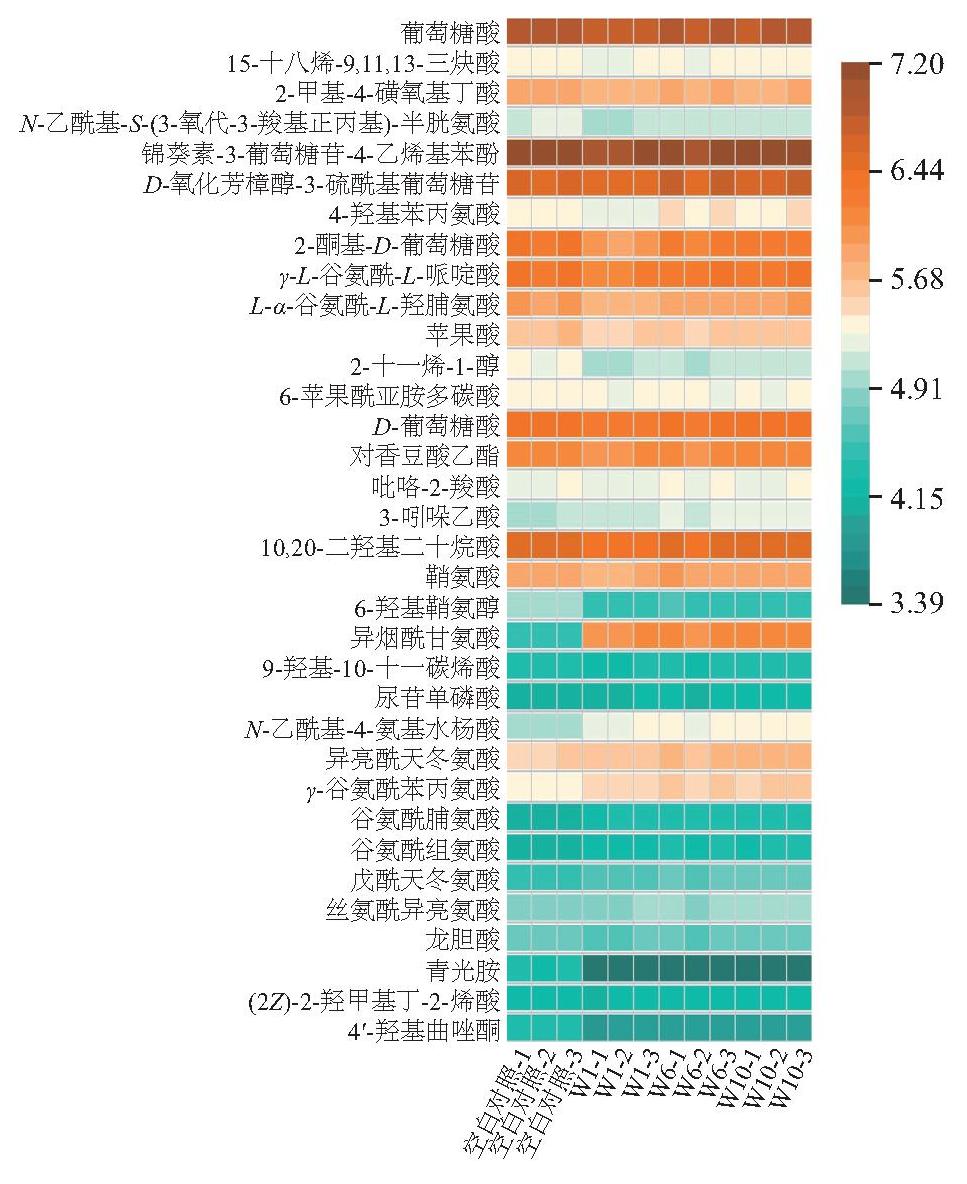
图3 GAPDH@Fe3O4固定化酶处理后葡萄酒中主要差异代谢物含量聚类热图
Fig.3 Clustering heatmap of main differential metabolites in wine treated with GAPDH@Fe3O4 immobilized enzyme
由图3可知,经固定化酶处理后,与空白对照组相比含量未见明显波动的化合物主要有葡萄糖酸、15-十八烯-9,11,13-三炔酸等。这一结果与固定化β-葡萄糖苷酶处理葡萄酒的研究[30]类似,表明固定化酶处理对葡萄酒整体代谢谱的影响较为温和。固定化酶处理后出现小幅下降的组分主要有8种:N-乙酰基-S-(3-氧代-3-羧基正丙基)-半胱氨酸(降幅1.1%~2.6%)、2-酮基-D-葡萄糖酸(降幅0.7%~5.9%)、苹果酸(降幅0.6%~1.9%)、2-十一烯-1-醇(降幅3.2%~4.9%)、6-苹果酰亚胺多碳酸(降幅0.7%~1.0%)、6-羟基鞘氨醇(降幅9.3%~10.7%)、青光胺(降幅19.3%~20.7%)和4′-羟基曲唑酮(降幅8.1%~10.2%),这可能是与磁性纳米材料吸附有关。其中,2-酮基-D-葡萄糖酸和苹果酸是糖代谢和三羧酸循环的关键中间代谢物,其轻微下降可能是固定化酶处理对能量代谢通路的微弱扰动,但变化幅度极小,不影响酒体整体品质[30]。此外,还有少数小分子组分在酶处理后出现小幅上升,包括N-乙酰基-4-氨基水杨酸(增幅5.2%~6.5%)、异亮酰天冬氨酸(增幅1.7%~3.3%)、γ-谷氨酰苯丙氨酸(增幅1.6%~3.1%)和异烟酰甘氨酸(增幅35.4%~37.2%),但是其含量上升的原因不明,还需要进一步研究。与固定化β-葡萄糖苷酶处理葡萄酒后二肽类物质升高的现象相似[30],本研究中的异亮酰天冬氨酸和γ-谷氨酰苯丙氨酸的上升可能与固定化酶表面微环境改变了酒体中蛋白质酶解平衡有关。
总体而言,与空白对照组相比,葡萄酒中小分子物质含量差异最大为W1组,其次是W6组,而W10组小分子物质含量几乎与空白对照组一致,说明固定化酶在第1次使用时对葡萄酒内的小分子化合物有一定的吸附作用,随着固定化酶循环使用次数的增加,其对葡萄酒组分的吸附量逐渐减少。由此可知,GAPDH@Fe3O4处理对葡萄酒的非挥发性小分子物质影响很小。
2.3.3 差异组分KEGG通路分析
为了解差异代谢物的生物学功能,通过KEGG数据库对鉴定到的差异组分进行功能注释,以空白对照组和W1组样品作为比较对象。由图4可知,这些化合物主要参与信号传导、能量代谢、感官系统等9类代谢通路。其中信号传导、氨基酸代谢和糖代谢被注释的路径数量最多,其次是化学结构转变、外源物质降解和代谢,而涉及能量代谢、脂质代谢、核苷酸代谢和感官系统的代谢通路相对较少。
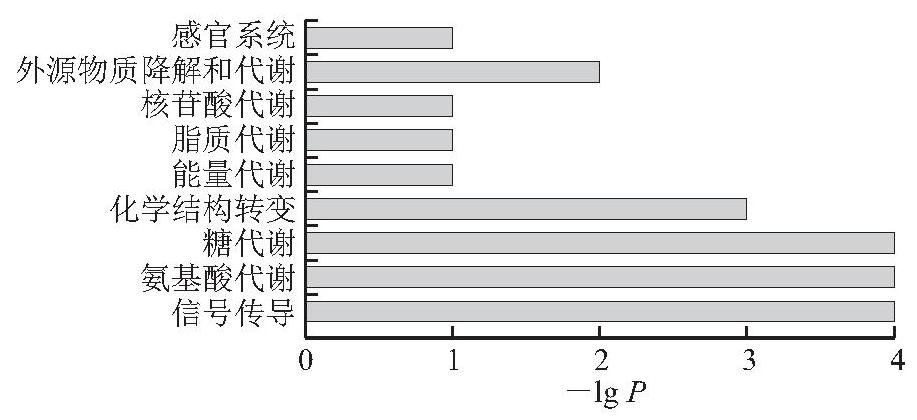
图4 GAPDH@Fe3O4固定化酶处理后葡萄酒差异代谢物 KEGG通路富集分析
Fig.4 Kyoto Encyclopedia of Genes and Genomes pathway enrichment analysis of differential metabolites in wine after GAPDH@Fe3O4 immobilized enzyme treatment
2.3.4 葡萄酒非挥发性小分子物质主成分分析(principal component analysis,PCA)
为更好地区分4组葡萄酒样品并建立非挥发性小分子与葡萄酒样品之间的相关性,利用SPSS软件对样品开展PCA。由图5可知,PC1和PC2分别解释55.95%和38.70%的总体方差,累计方差贡献率为94.65%。对照样品位于第4象限,与大部分挥发性小分子物质距离较远,与4′-羟基曲唑酮、青光胺、6-羟基鞘氨醇、 2-十一烯-1-醇等组分的相关性较高;W6组3个平行样品位于第1象限,富含(2Z)-2-(羟甲基)丁-2-烯酸、9-羟基-10-十一碳烯酸、鞘氨醇、吡咯-2-羧酸、龙胆酸、 葡萄糖酸、10,20-二羟基二十烷酸、锦葵素-3-葡萄糖苷-4-乙烯基苯酚、4′-羟基曲唑酮、D-氧化芳樟醇-3-硫酰基葡萄糖苷、丝氨酰异亮氨酸、γ-谷氨酰苯丙氨酸、异亮酰天冬氨酸、尿苷单磷酸、3-吲哚乙酸、谷氨酰组氨酸等物质;W1组3个平行样品位于第2、3象限,主要分布在PC1负方向上,与谷氨酰胺基脯氨酸、N-乙酰基-4-氨基水杨酸、异烟酰甘氨酸等组分相关联;W10组3个平行样品位于第1、2象限,与非挥发性小分子化合物锦葵素-3-葡萄糖苷-4-乙烯基苯酚、4′-羟基曲唑酮、D-氧化芳樟醇-3-硫酰基葡萄糖苷、丝氨酰异亮氨酸、γ-谷氨酰苯丙氨酸、异亮酰天冬氨酸、尿苷单磷酸、3-吲哚乙酸、谷氨酰组氨酸、谷氨酰胺基脯氨酸、N-乙酰基-4-氨基水杨酸、异烟酰甘氨酸等相关联。综上,GAPDH@Fe3O4固定化酶处理虽然对葡萄酒小分子化合物产生了一定的影响,但是批次处理之间的稳定性较好,获得的葡萄酒产品的组成也较为类似,因此可以进一步尝试将该固定化酶应用于葡萄酒中试生产及规模化生产。
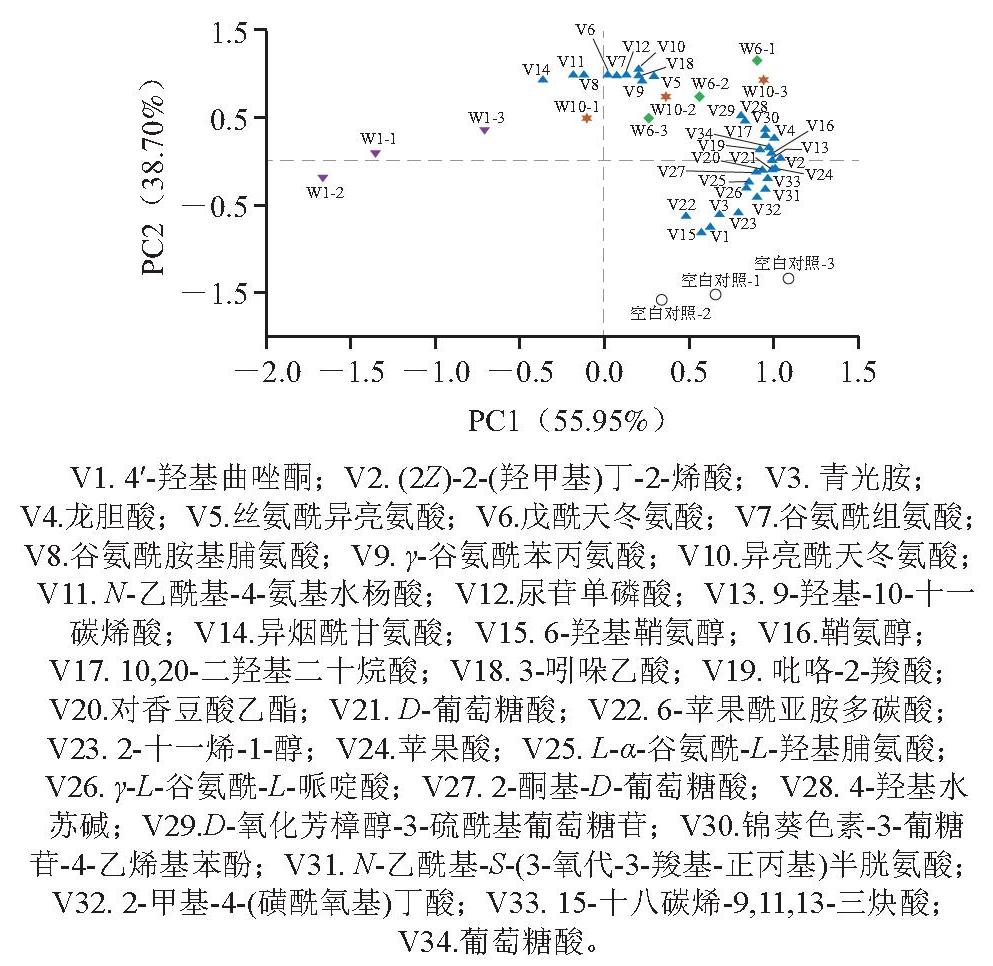
图5 GAPDH@Fe3O4固定化酶处理后葡萄酒主要非挥发性小分子物质PCA双标图
Fig.5 Principal component analysis biplot for main non-volatile smallmolecule substances in wine treated with GAPDH@Fe3O4 immobilized enzyme
3 结 论
本研究探究自主制备GAPDH@Fe3O4固定化酶循环使用对葡萄酒酒体组成的影响,特别关注其非挥发性小分子化合物的影响。结果表明,固定化酶能够有效降解多种生物胺,且对大多数非挥发性小分子化合物无影响,对理化指标也无负面影响,但部分小分子组分含量有所下降,如N-乙酰基-S-(3-氧代-3-羧基正丙基)-半胱氨酸、2-酮基-D-葡萄糖酸、苹果酸、2-十一烯-1-醇、6-苹果酰亚胺多碳酸、6-羟基鞘氨醇、青光胺、4′-羟基曲唑酮等,主要涉及信号传导、氨基酸代谢和糖代谢等代谢途径。本研究弥补了以往固定化酶研究领域偏重理论研究的不足,将GAPDH@Fe3O4投入到实际的葡萄酒酿造体系,从应用角度解析了固定化酶的使用成效。基于研究结果,本课题组后续将继续优化GAPDH@Fe3O4的制备工艺,为其在果酒体系中的应用夯实研究基础。
[1] Doeun D, Davaatseren M, Chung M S. Biogenic amines in foods[J]. Food Science and Biotechnology, 2017, 26(6): 1463-1474.DOI:10.1007/s10068-017-0239-3.
[2] Restuccia D, Loizzo M R, Spizzirri U G. Accumulation of biogenic amines in wine: role of alcoholic and malolactic fermentation[J].Fermentation, 2018, 4(1): 6. DOI:10.3390/fermentation4010006.
[3] Li Binbin, Lu Shiling. The importance of amine-degrading enzymes on the biogenic amine degradation in fermented foods: a review[J]. Process Biochemistry, 2020, 99: 331-339. DOI:10.1016/j.procbio.2020.09.012.
[4] 田园, 刘蕊, 潘秋红. ‘赤霞珠’干红葡萄酒发酵过程中氨基酸的转化与利用[J]. 中国酿造, 2012, 31(10): 26-30. DOI:10.3969/j.issn.0254-5071.2012.10.007.
[5] 王瑞, 许超丽, 乔丹, 等. 新疆四大优势产区葡萄酒中生物胺含量的测定[J]. 中国酿造, 2018, 37(8): 178-181. DOI:10.11882/j.issn.0254-5071.2018.08.035.
[6] Chalella Mazzocato M, Jacquier J C. Recent advances and perspectives on food-grade immobilisation systems for enzymes[J]. Foods, 2024,13(13): 2127. DOI:10.3390/foods13132127.
[7] Espejo F. Role of commercial enzymes in wine production: a critical review of recent research[J]. Journal of Food Science and Technology,2021, 58(1): 9-21. DOI:10.1007/s13197-020-04489-0.
[8] Romo-Sánchez S, Arévalo-Villena M, García Romero E, et al. Immobilization of β-glucosidase and its application for enhancement of aroma precursors in Muscat wine[J]. Food and Bioprocess Technology,2014, 7(5): 1381-1392. DOI:10.1007/s11947-013-1161-1.
[9] Tavernini L, Ottone C, Illanes A, et al. Entrapment of enzyme aggregates in chitosan beads for aroma release in white wines[J].International Journal of Biological Macromolecules, 2020, 154: 1082-1090. DOI:10.1016/j.ijbiomac.2020.03.031.
[10] Benucci I, Lombardelli C, Liburdi K, et al. Immobilised native plant cysteine proteases: packed-bed reactor for white wine protein stabilisation[J]. Journal of Food Science and Technology, 2016, 53(2):1130-1139. DOI:10.1007/s13197-015-2125-4.
[11] Tavilli E, Esti M, Fidaleo M. Effective ethyl carbamate prevention in red wines by treatment with immobilized acid urease[J]. Foods, 2024, 13(16): 2476. DOI:10.3390/foods13162476.
[12] Del-Bosque D, Vila-Crespo J, Ruipérez V, et al. Entrapment of glucose oxidase and catalase in silica-calcium-alginate hydrogel reduces the release of gluconic acid in must[J]. Gels, 2023, 9(8): 622. DOI:10.3390/gels9080622.
[13] Wang Luliang, Fan Minting, Xing Xin, et al. Immobilization of glyceraldehyde-3-phosphate dehydrogenase on Fe3O4 magnetic nanoparticles and its application in histamine removal[J]. Colloids and Surfaces B: Biointerfaces, 2021, 205: 111917. DOI:10.1016/j.colsurfb.2021.111917.
[14] Jiang Dongqi, Li Huamin, Sun Shuyang. Verification of a novel glyceraldehyde-3-phosphate dehydrogenase capable of histamine degradation and its preliminary application in wine production[J]. Food Science and Biotechnology, 2020, 29(12): 1719-1726. DOI:10.1007/s10068-020-00838-z.
[15] Wu Weihao, Zhang Lizhu, Zheng Xuan, et al. Emerging applications of metabolomics in food science and future trends[J]. Food Chemistry:X, 2022, 16: 100500. DOI:10.1016/j.fochx.2022.100500.
[16] 刘畅, 李慧敏, 梁丽雅, 等. GC/MS代谢组学技术在食品分析中的应用进展[J]. 食品研究与开发, 2023, 44(21): 173-179. DOI:10.12161/j.issn.1005-6521.2023.21.024.
[17] Balkir P, Kemahlioglu K, Yucel U. Foodomics: a new approach in food quality and safety[J]. Trends in Food Science & Technology, 2021,108: 49-57. DOI:10.1016/j.tifs.2020.11.028.
[18] Sirén K, Mak S S T, Fischer U, et al. Multi-omics and potential applications in wine production[J]. Current Opinion in Biotechnology,2019, 56: 172-178. DOI:10.1016/j.copbio.2018.11.014.
[19] 杨静, 王琨, 周元. 气相色谱-电子捕获检测器分析葡萄酒中的8种生物胺[J]. 中国酿造, 2023, 42(2): 228-234. DOI:10.11882/j.issn.0254-5071.2023.02.038.
[20] 徐潇颖, 张一涵, 梁晶晶. 通过式固相萃取-UPLC-MS/MS测定发酵酒中15种生物胺[J]. 中国酿造, 2025, 44(8): 263-269. DOI:10.11882/j.issn.0254-5071.2025.08.038.
[21] 孙祥瑞, 张淼, 孔令强, 等. 代谢组学在食品科学与工程领域的研究进展[J]. 中国食品添加剂, 2021, 32(9): 175-181. DOI:10.19804/j.issn1006-2513.2021.09.024.
[22] 梁红敏, 高德艳, 全巧玲, 等. 基于代谢组学分析GSH对霞多丽葡萄酒代谢产物的影响[J]. 食品科学, 2023, 44(18): 286-293.DOI:10.7506/spkx1002-6630-20221017-157.
[23] Ai Jian, Wu Qixia, Battino M, et al. Using untargeted metabolomics to profile the changes in Roselle (Hibiscus sabdariffa L.) anthocyanins during wine fermentation[J]. Food Chemistry, 2021, 364: 130425.DOI:10.1016/j.foodchem.2021.130425.
[24] Rocchetti G, Gatti M, Bavaresco L, et al. Untargeted metabolomics to investigate the phenolic composition of Chardonnay wines from different origins[J]. Journal of Food Composition and Analysis, 2018,71: 87-93. DOI:10.1016/j.jfca.2018.05.010.
[25] 邢鑫, 王鲁良, 张冰艳, 等. GAPDH@Fe3O4固定化酶脱除樱桃酒生物胺的研究及对酒体指标的影响[J]. 食品与发酵工业, 2023, 49(2):138-145. DOI:10.13995/j.cnki.11-1802/ts.031126.
[26] Sun Shuyang, Chen Zexuan, Jin Chengwu. Combined influence of lactic acid bacteria starter and final pH on the induction of malolactic fermentation and quality of cherry wines[J]. LWT-Food Science and Technology, 2018, 89: 449-456. DOI:10.1016/j.lwt.2017.11.023.
[27] 潘虹, 陆天炆, 王晓军, 等. 酶固定化技术的最新研究进展[J].西安工程大学学报, 2024, 38(1): 83-91. DOI:10.13338/j.issn.1674-649x.2024.01.011.
[28] Sun Shuyang, Jiang Dongqi, Fan Minting, et al. Selection of a versatile Lactobacillus plantarum for wine production and identification and preliminary characterisation of a novel histamine-degrading enzyme[J]. International Journal of Food Science & Technology, 2020,55(6): 2608-2618. DOI:10.1111/ijfs.14514.
[29] 刘璟. 磁性纳米粒子定向固定乙醇脱氢酶及应用研究[D]. 南昌:南昌大学, 2021. DOI:10.27232/d.cnki.gnchu.2021.002017.
[30] Bai Xi, Luo Xueru, Yang Xinglong, et al. Improvement of volatile compounds and non-volatile metabolites in ‘summer black’ wines by controlled use of immobilized β-glucosidases[J]. LWT-Food Science and Technology, 2025, 230: 118309. DOI:10.1016/j.lwt.2025.118309.
[31] Zurowietz A, Lehr P P, Kleb M, et al. Training grapevines generates a metabolomic signature of wine[J]. Food Chemistry, 2022, 368:130665. DOI:10.1016/j.foodchem.2021.130665.
[32] Pérez-Jiménez M, Sherman E, Pozo-Bayón M A, et al. Application of untargeted volatile profiling and data driven approaches in wine flavoromics research[J]. Food Research International, 2021, 145:110392. DOI:10.1016/j.foodres.2021.110392.
[33] 赵振东, 李平, 朱建忠. 离子色谱法测定水果和蔬菜中3-吲哚乙酸和3-吲哚丁酸的含量[J]. 理化检验-化学分册, 2017, 53(5): 590-593.DOI:10.11973/lhjy-hx201705023.
[34] 孙雷. 2-酮基-D-葡萄糖酸高效生产工艺构建及其代谢调控机制解析[D]. 无锡: 江南大学, 2021. DOI:10.27169/d.cnki.gwqgu.2021.000023.
[35] 胡倩, 王松龄, 周雨, 等. 吡咯-2-羧酸的生物合成及生物活性研究[J].生物化工, 2020, 6(6): 157-160. DOI:10.3969/j.issn.2096-0387.2020.06.043.
[36] 李存玉, 支兴蕾, 李贺敏, 等. 生物碱类成分的纳滤传质行为与分子结构的相关性[J]. 药学学报, 2018, 53(12): 1963-1967. DOI:10.16438/j.0513-4870.2018-0619.
[37] 王勤, 胡刚, 孟敏. 龙胆酸对B-Z化学振荡反应的影响及其分析测定[J].安徽大学学报(自然科学版), 2012, 36(3): 79-84. DOI:10.3969/j.issn.1000-2162.2012.03.014.
[38] 李彪, 吴信, 张彬, 等. 尿苷酸的营养代谢与生理功能研究进展[J].动物营养学报, 2019, 31(6): 2487-2494. DOI:10.3969/j.issn.1006?267x.2019.06.006.
[39] Wisse P, De Geus M A R, Cross G, et al. Synthesis of 6-hydroxysphingosine and α-hydroxy ceramide using a cross-metathesis strategy[J]. The Journal of Organic Chemistry, 2015, 80(14): 7258-7265. DOI:10.1021/acs.joc.5b00823.