冷冻面团技术是实现面制品工业化生产的关键技术之一,也是我国食品工业中具有重要发展潜力的领域[1]。该技术通过将面团于-20 ℃以下速冻并于-18 ℃左右冻藏,实现面团的长期保存和按需生产,有效克服传统现制现售模式中效率低、成本高、品质不稳定等弊端[2]。然而,冷冻面团在冻藏过程中易发生品质劣变,导致终端产品(如面包、馒头)出现醒发时间延长、比容减小、口感硬化及货架期缩短等问题,严重制约了其规模化应用[1,3]。
冷冻面团品质劣变的核心机制在于:冻结与冻藏阶段产生冰晶并发生重结晶,进而对面筋蛋白、酵母细胞等关键组分造成结构破坏,致使其功能丧失[4]。其中,酵母作为面团发酵体系的核心功能微生物,其冷冻损伤尤为关键:胞内冰晶形成导致细胞器机械损伤,渗透压激变引发细胞脱水与代谢紊乱,最终使酵母存活率与发酵活性显著下降,产气能力降低[5]。目前,提高酵母冷冻存活率的策略主要依赖外源添加抗冻物质,如抗冻蛋白、海藻糖、甘油等[6-8],但此类方法存在成本高、影响风味以及与面团体系相容性差等局限,且未能从根本上增强酵母自身的抗冻能力。因此,挖掘酵母内源性抗冻机制、选育具有遗传稳定性的抗冻菌株,成为突破冷冻面团技术瓶颈的关键方向。
适应性实验室进化(adaptive laboratory evolution,ALE)是解析微生物环境胁迫耐受机制、选育抗逆菌株的有效研究手段[9-11]。该技术通过在特定选择压力(如抑制性化合物、极端温度等)下对微生物进行连续传代培养,使适应性突变在种群中富集,进而结合高通量测序解析耐受机制[12-14]。近年来,ALE在酿酒酵母(Saccharomyces cerevisiae)耐受性研究中取得显著进展,成功应用于有机酸[15-16]、高温[17]、木质纤维素水解物抑制剂[18]及醛类化合物[19]等多种胁迫的适应性改良。然而,将ALE策略系统应用于酿酒酵母冷冻耐受性改良的研究报道鲜见,酵母在冻融循环胁迫下的适应性进化轨迹及分子机制尚不明确。
本研究采用ALE策略对酿酒酵母进行培养和冷冻循环传代驯化,定向选育高冷冻耐受性突变株。通过测定冷冻存活率、利用转录组测序技术分析差异表达基因及代谢通路;采用反转录荧光定量聚合酶链式反应(reverse transcription-quantitative polymerase chain reaction,RT-qPCR)验证关键基因表达模式,为冷冻面团开发提供菌株和研究参考。
1 材料与方法
1.1 菌株、材料与试剂
酿酒酵母分离于法国乐斯福燕子牌鲜酵母。
次甲基蓝、氯化钾、六水氯化钙、碳酸氢钠、葡萄糖、氯化钠(分析纯) 上海麦克林生化科技股份有限公司;胰蛋白胨、酵母浸粉(生化试剂) 赛默飞世尔科技(中国)有限公司;琼脂粉(生化试剂) 广东环凯微生物科技有限公司;酵母基因组DNA快速抽提试剂盒 生工生物工程(上海)股份有限公司;总RNA提取试剂、第3代高效cDNA一链合成试剂盒(去基因组)、通用型高灵敏度染料法定量PCR检测试剂盒、2×快速Taq酶预混液 南京诺唯赞生物科技股份有限公司。
YPD液体培养基:葡萄糖20 g、胰蛋白胨20 g、酵母浸粉10 g、去离子水1 000 mL,121 ℃灭菌20 min。YPD固体培养基为YPD液体培养基加入2%琼脂。
1.2 仪器与设备
ECLIPSE E200显微镜 尼康精机(上海)有限公司;SYNERGY H1酶标仪 美国BioTek公司;QuantStudio 6 Pro qPCR系统、NanoDrop One微量紫外-可见分光光度计 赛默飞世尔科技(中国)有限公司;ZQZY-75BN振荡培养箱 上海知楚仪器有限公司。
1.3 方法
1.3.1 酵母菌分离纯化
取一环酿酒酵母划线于YPD培养基平板,30 ℃培养24 h,挑取单菌落接种于YPD液体培养基,于30 ℃、180 r/min 振荡培养24 h。取1 mL培养液与1 mL 40%(V/V)无菌甘油溶液混合,此为F0代菌株,放置于-80 ℃冰箱保存。
1.3.2 菌种分子生物学鉴定
取1 mL培养液离心(8 000 r/min、3 min),弃上清液。使用酵母基因组DNA快速抽提试剂盒提取基因组,PCR扩增酵母的内部转录间隔区(internal transcribed spacer,ITS)序列。引物为ITS1(5′-TCCG TAGGTGAACCTGCGG-3′)、ITS4(5′-TCCTCC GCTTATTGATATGC-3′)[20]。PCR扩增体系:酵母基因组DNA 1 μL、引物ITS1 1 μL、引物ITS4 1 μL、2×快速Taq酶预混液25 μL、去离子水22 μL。PCR扩增程序:95 ℃预变性3 min;95 ℃变性15 s,55 ℃退火15 s,72 ℃延伸30 s,35个循环;最终72 ℃延伸5 min。将PCR产物送至深圳华大基因股份有限公司进行测序,使用NCBI中BLASTN程序将该核苷酸序列与rRNA/ITS数据库序列进行比对。采用MEGA v10.1.8软件,采用邻接法构建系统发育树,Bootstrap重复1 000次。
1.3.3 反复传代选育耐受冷冻酵母
将1.3.1节酿酒酵母甘油冻存液50 μL接种至2 mL YPD培养基中,30 ℃、180 r/min振荡培养24 h。取1 mL发酵液离心(8 000 r/min、3 min)后弃上清液。将菌体沉淀置于-20 ℃冰箱中,此为第1代(F1代)。冷冻24 h后,30 ℃解冻,加入1 mL YPD液体培养基,将菌体吹打均匀,制成菌悬液。将菌悬液按5%(V/V)接种量接种至YPD液体培养基,30 ℃、180 r/min振荡培养24 h,然后取1 mL发酵液离心(8 000 r/min、3 min),弃上清液。将菌体置于 -20 ℃冰箱中,此为第2代(F2代)。如此循环100次,得到进化菌株(F100代)。将F100代菌株的发酵液取1 mL与40%(V/V)甘油混合,置于-80 ℃冰箱保存。
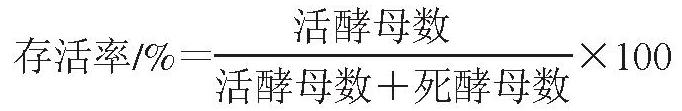
1.3.4 酵母存活率测定
将F0代和F100代菌株按5%(V/V)接种量接种至YPD液体培养基,30 ℃培养24 h。将1 mL发酵液离心(8 000 r/min、3 min),弃上清液。将菌体置于-20 ℃冰箱中冷冻2、5、10、16、20 d后,30 ℃解冻,向菌体沉淀中加入1 mL无菌生理盐水,30 ℃活化1 h。将活化液振荡均匀,吸取活化酵母0.1 mL,加入次甲基蓝染色液0.9 mL,摇匀,30 ℃染色10 min,采用血球计数板计数,其中染成蓝色的菌体为死酵母,未染色透明细胞为活酵母[21]。存活率计算公式如下:
1.3.5 酵母生长曲线测定
分别取50 μL F0代(对照)和F100代菌株的甘油冻存液,接入2 mL YPD液体培养基,30 ℃培养24 h。将发酵液分成2份,1份取10 μL发酵液加入500 μL YPD液体培养基,然后分装于96孔板中,每孔150 μL,30 ℃静置培养25 h,每小时测OD600 nm值;1份取1 mL发酵液,离心(8 000 r/min、5 min)后弃上清液,菌体于-20 ℃放置7 d后,30 ℃解冻,加入1 mL YPD液体培养基重悬,按2%(V/V)接种量接入YPD液体培养基,分装于96孔板中,每孔150 μL,30 ℃静置培养25 h,每隔1 h测OD600 nm值。
1.3.6 转录组测序
分别取50 μL F0代和F100代菌株的甘油冻存液,接入5 mL YPD液体培养基。30 ℃、180 r/min振荡培养24 h,取3 mL菌液,12 000 r/min离心3 min,弃上清液。菌体液氮冷冻后,保存于-80 ℃冰箱。委托北京百迈客生物科技有限公司进行RNA提取和转录组测序。每个样品设置3个生物学重复。使用Illumina NovaSeq 6000测序平台,采用PE150双端测序策略。
将测序所得原始数据去除接头序列及低质量碱基(Phred质量值Q<30),获得后续分析使用的Clean Reads。使用HISAT2[22]将Clean Reads与酿酒酵母模式菌株S288C参考基因组(GenBank:GCF_000146045.2)进行比对,获取Reads在基因组上的定位信息。然后利用StringTie[23]对比对成功的Reads进行组装和定量,重构转录组并计算每个基因的FPKM(fragments per kilobase of transcript per million fragments mapped)[24]及TPM(transcripts per million),同时利用featureCounts[25]基于HISAT2比对结果计算每个基因的原始Count值。基于基因原始Count值,采用DESeq2(1.38.0)[26]进行差异表达分析,以F0代作为对照组,F100代作为处理组。差异表达基因筛选标准为差异倍数(fold change,FC)≥2且错误发现率(false discovery rate,FDR)<0.01,其中FDR由Benjamini-Hochberg方法对P值进行多重检验校正获得[27]。
以京都基因与基因组百科全书(Kyoto Encyclopedia of Genes and Genomes,KEGG)数据库中“Pathway”为单位,评估差异表达基因在特定通路中的富集显著性。背景基因集定义为本研究中经HISAT2比对上的、具有KEGG注释的全部表达基因,排除未比对上及无KEGG注释的基因。采用超几何分布检验计算各通路的富集P值,原始P值经Benjamini-Hochberg法进行多重检验校正,以FDR<0.05作为显著富集通路的判定标准。通过“Pathway”显著性富集确定基因参与的主要生化代谢途径和信号转导途径。
1.3.7 RT-qPCR分析
将转录组测序样品中剩余的菌液于12 000 r/min离心3 min,弃上清液,沉淀菌体加入1 mL总RNA提取试剂,置于-80 ℃冰箱中保存。待得到转录组数据后,提取RNA。经微量紫外-可见分光光度计检测,OD260 nm/OD280 nm 比值在1.8~2.2之间表明提取的RNA可用。将提取的RNA采用第3代高效cDNA一链合成试剂盒(去基因组)进行逆转录反应合成cDNA。采用通用型高灵敏度染料法定量PCR检测试剂盒进行RT-qPCR分析。 RT-qPCR条件:95 ℃预变性30 s;95 ℃变性10 s,60 ℃ 退火/延伸30 s,采集荧光信号;变性和退火/延伸步骤重复40个循环;熔解曲线程序:60~90 ℃,缓慢升温(0.5 ℃/步, 每步5 s)。引物名称及序列见表1。以酵母TAF10基因为内标[28]。采用2-ΔΔCt方法计算基因的相对表达水平[29]。
表1 引物名称及序列
Table1 Primer names and sequences
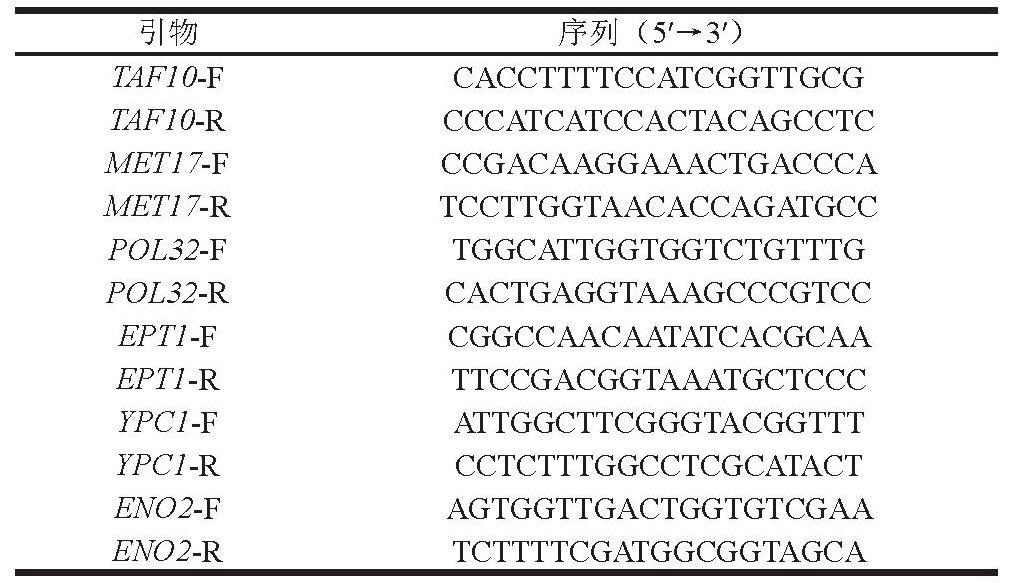
引物序列(5′→3′)TAF10-FCACCTTTTCCATCGGTTGCG TAF10-RCCCATCATCCACTACAGCCTC MET17-FCCGACAAGGAAACTGACCCA MET17-RTCCTTGGTAACACCAGATGCC POL32-FTGGCATTGGTGGTCTGTTTG POL32-RCACTGAGGTAAAGCCCGTCC EPT1-FCGGCCAACAATATCACGCAA EPT1-RTTCCGACGGTAAATGCTCCC YPC1-FATTGGCTTCGGGTACGGTTT YPC1-RCCTCTTTGGCCTCGCATACT ENO2-FAGTGGTTGACTGGTGTCGAA ENO2-RTCTTTTCGATGGCGGTAGCA
1.4 数据处理
采用Excel 2013分析数据,结果以x±s表示。使用t检验,P<0.05为差异显著,P<0.01为差异极显著。通过Pearson相关分析进行相关性分析。采用HISAT2 v2.0.4、StringTie v2.2.1、DESeq2 v1.38.0、edgeR v3.40.0等软件进行转录组分析。
2 结果与分析
2.1 筛选菌株分子生物学鉴定
从YPD固体平板划线分离得到单菌落,命名为LKF-1。PCR扩增LKF-1的ITS基因序列长度为869 bp。对该序列进行BLASTN比对。由图1可知,菌株LKF-1与S. cerevisiae在同一分支上,因此初步确定LKF-1为酿酒酵母(S. cerevisiae)。
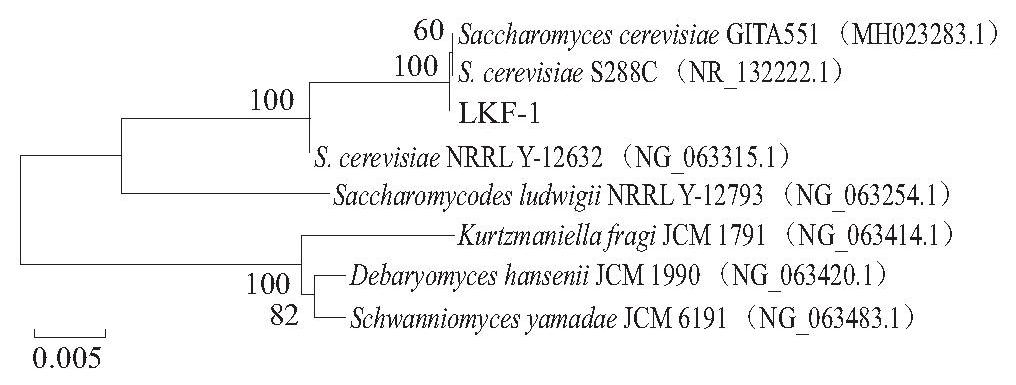
图1 基于ITS基因序列构建的LKF-1系统发育树
Fig.1 Phylogenetic tree of strain LKF-1 constructed based on ITS gene sequences
2.2 酿酒酵母LKF-1存活率
如图2所示,随着冻存时间的延长,F0代和F100代菌株存活率逐渐下降。F100代菌株在-20 ℃冻存2、5、10、16、20 d的存活率分别为84.1%、69.4%、54.6%、46.9%、21.3%,而F0代菌株在相同条件下的存活率分别为60.8%、56.4%、13.8%、8.6%、4.8%。F100代菌株存活率均显著高于F0代菌株(P<0.01)。F0代菌株在-20 ℃冻保5~10 d,存活率从56.4%下降到13.8%,下降速率较快。因此,F100代菌株的冷冻耐受能力比F0代菌株强。
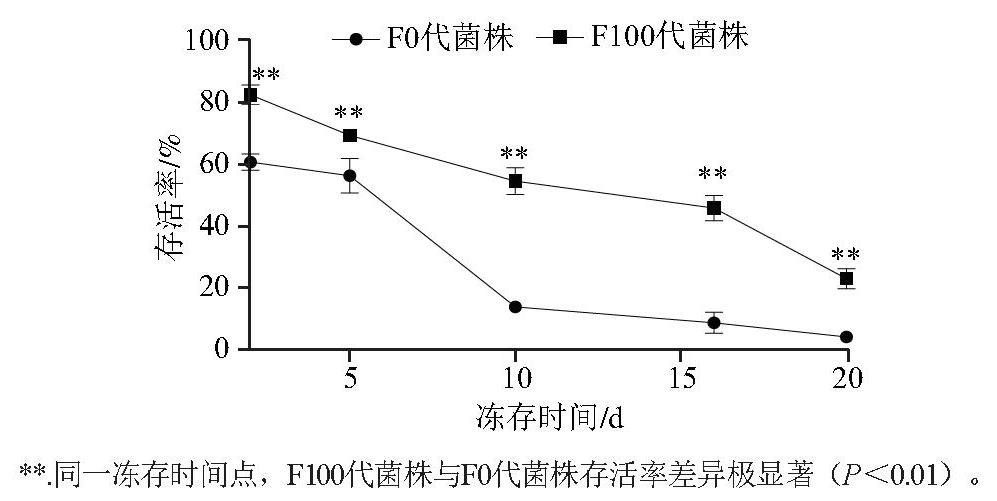
图2 -20 ℃下不同冻存时间酵母菌的存活率
Fig.2 Survival rates of yeast strains after storage at -20 °C for different durations
2.3 酿酒酵母LKF-1生长曲线
由图3可知,酿酒酵母LKF-1的F0代和F100代菌株在培养时间0~4 h时处于延滞期,5~11 h处于对数生长期,12~25 h处于稳定期。酿酒酵母LKF-1的F0代和F100代菌株在正常环境下,其生长到达稳定期时间和稳定期生物量无明显差异,说明F100代进化菌株生长能力未发生明显改变。
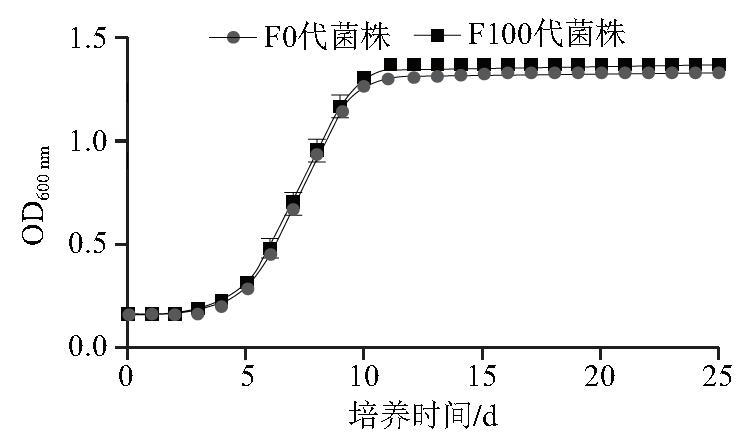
图3 酿酒酵母LKF-1的F0代和F100代菌株的生长曲线
Fig.3 Growth curves of F0 and F100 generations of S. cerevisiae LKF-1
由图4可知,酿酒酵母LKF-1的F0代菌株、F100代菌株及F0代甘油冻存菌株延滞期分别为0~8、0~4、0~4 h,对数生长期分别为9~15、8~13、8~12 h;稳定期分别为15~25、13~25、12~25 h。酿酒酵母LKF-1的F0代菌株生长速率明显慢于F100代菌株,而F100代菌株到达稳定期的时间比F0代甘油冻存菌株慢1 h,说明F100代菌株在无甘油的状况下依然具有较好的生长能力。
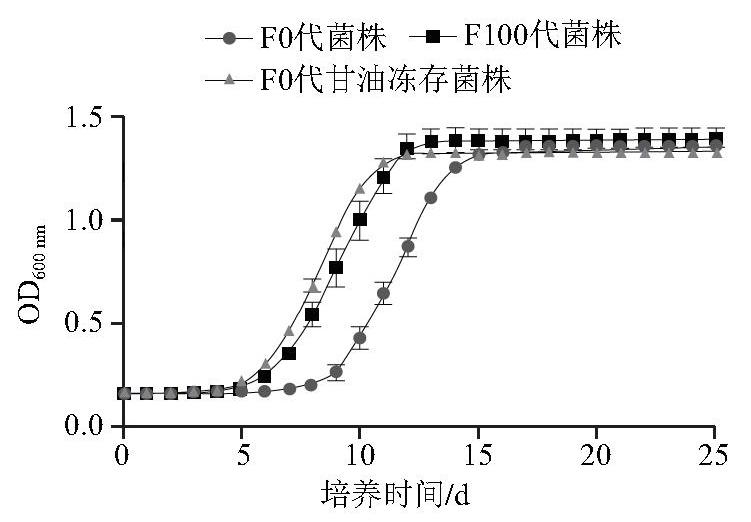
图4 酿酒酵母LKF-1在-20 ℃下冻存7 d后的生长曲线
Fig.4 Growth curves of S. cerevisiae LKF-1 after 7 days of cryopreservation at -20 °C
2.4 酿酒酵母LKF-1转录组学分析
以F0代为对照,F100代菌株中上调基因187个、下调基因258个。由表2可知,对Q值较小的前19个通路所涉及的差异基因进行分析,糖酵解/糖异生(ko00010),碳代谢(ko01200),氨基酸的生物合成(ko01230),甘氨酸、丝氨酸和苏氨酸代谢(ko00260),果糖和甘露糖代谢(ko00051)这些能量代谢途径中,下调基因存在大范围重叠。
表2 酿酒酵母LKF-1冷冻适应性进化后显著差异表达基因
Table2 Significantly DEGs of S. cerevisiae LKF-1 after freeze adaptive evolution
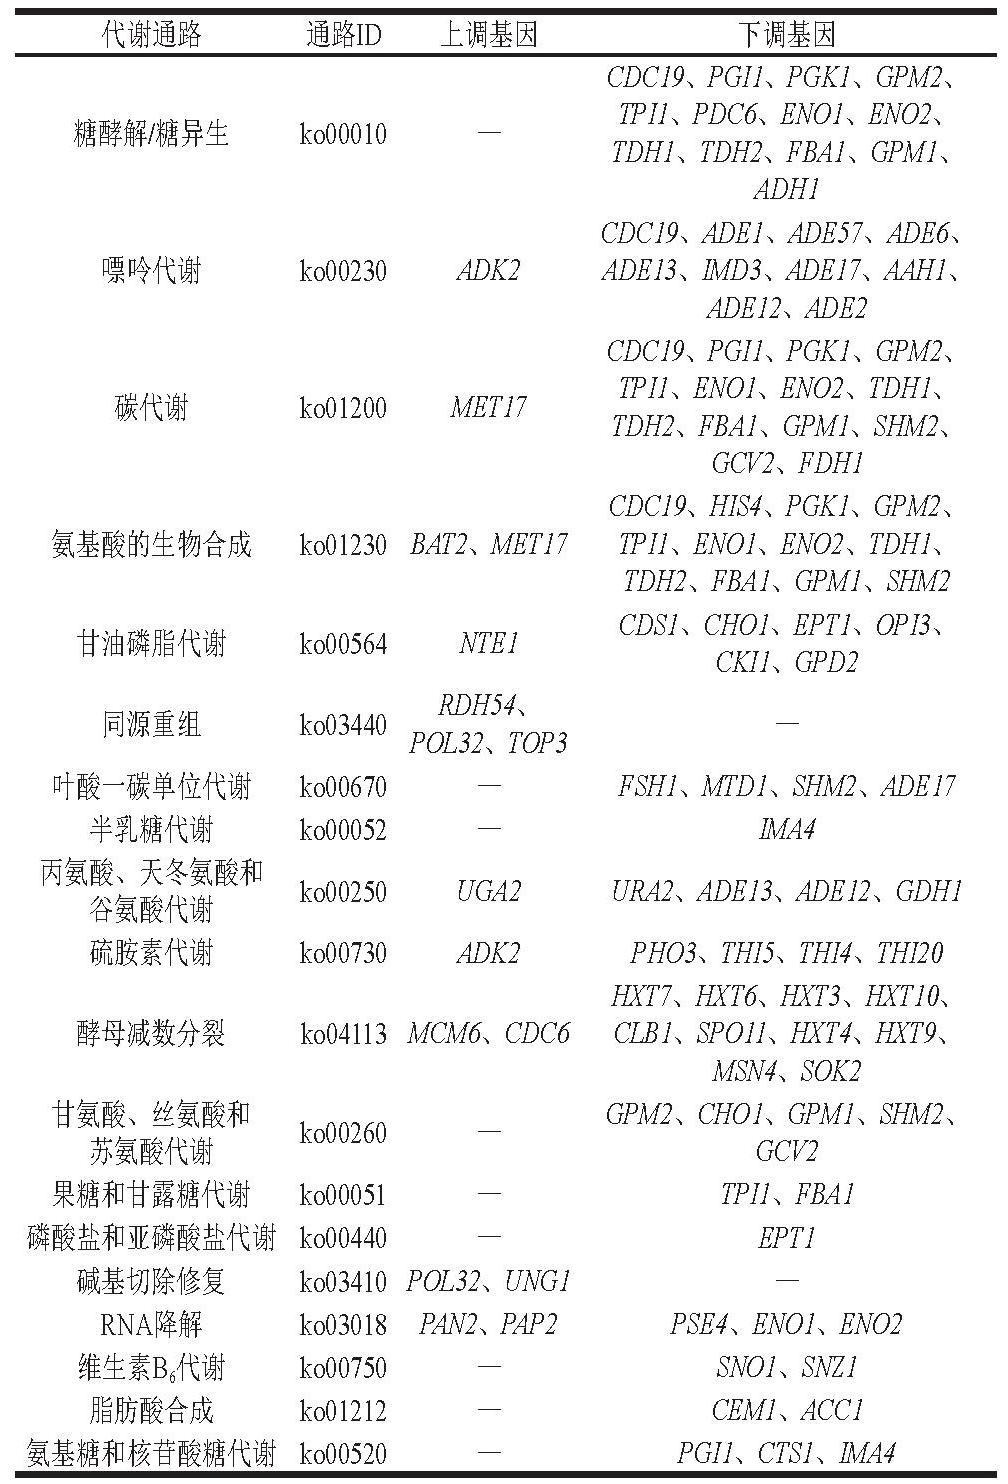
代谢通路通路ID上调基因下调基因CDC19、PGI1、PGK1、GPM2、TPI1、PDC6、ENO1、ENO2、糖酵解/糖异生ko00010—TDH1、TDH2、FBA1、GPM1、ADH1 CDC19、ADE1、ADE57、ADE6、嘌呤代谢ko00230ADK2ADE13、IMD3、ADE17、AAH1、ADE12、ADE2 CDC19、PGI1、PGK1、GPM2、碳代谢ko01200MET17TPI1、ENO1、ENO2、TDH1、TDH2、FBA1、GPM1、SHM2、GCV2、FDH1 CDC19、HIS4、PGK1、GPM2、氨基酸的生物合成ko01230BAT2、MET17TPI1、ENO1、ENO2、TDH1、TDH2、FBA1、GPM1、SHM2甘油磷脂代谢ko00564NTE1CDS1、CHO1、EPT1、OPI3、CKI1、GPD2同源重组ko03440RDH54、POL32、TOP3—叶酸一碳单位代谢ko00670—FSH1、MTD1、SHM2、ADE17半乳糖代谢ko00052—IMA4丙氨酸、天冬氨酸和谷氨酸代谢ko00250UGA2URA2、ADE13、ADE12、GDH1硫胺素代谢ko00730ADK2PHO3、THI5、THI4、THI20 HXT7、HXT6、HXT3、HXT10、酵母减数分裂ko04113MCM6、CDC6CLB1、SPO11、HXT4、HXT9、MSN4、SOK2甘氨酸、丝氨酸和苏氨酸代谢ko00260—GPM2、CHO1、GPM1、SHM2、GCV2果糖和甘露糖代谢ko00051—TPI1、FBA1磷酸盐和亚磷酸盐代谢ko00440—EPT1碱基切除修复ko03410POL32、UNG1—RNA降解ko03018PAN2、PAP2PSE4、ENO1、ENO2维生素B6代谢ko00750—SNO1、SNZ1脂肪酸合成ko01212—CEM1、ACC1氨基糖和核苷酸糖代谢ko00520—PGI1、CTS1、IMA4
注:—.未检测出相关基因。
2.5 RT-qPCR验证
为验证转录组测序结果的可靠性,从差异表达基因中选取5个关键基因进行RT-qPCR验证。选取依据为:这些基因分别参与碳代谢、氨基酸生物合成、DNA修复、甘油磷脂代谢及鞘脂代谢等核心生物学过程,且在转录组中呈现显著差异表达。所选基因包括MET17(甲硫氨酸合成,参与氨基酸生物合成途径)、POL32(DNA聚合酶辅助亚基,参与碱基切除修复途径)、EPT1(乙醇胺磷酸转移酶,参与甘油磷脂代谢途径)、ENO2(烯醇化酶,参与糖酵解/糖异生途径)及YPC1(碱性神经酰胺酶,参与鞘脂代谢途径)。RT-qPCR验证结果显示(图5),与对照组(F0代)相比,MET17(转录组log2 FC=2.14)、POL32(转录组log2 FC=2.77)和YPC1(转录组log2 FC=3.13)表达显著上调(P<0.01),相对表达量分别为2.00、1.53和2.71;EPT1(转录组log2 FC=-2.16)和ENO2(转录组log2 FC=-3.34)表达显著下调(P<0.05、P<0.01),相对表达量分别为0.50和0.74。转录组与RT-qPCR的log2 FC呈显著正相关(Pearson相关系数=0.91、R2=0.83、P=0.033),表明2组数据趋势高度一致,转录组测序结果可靠。转录组与RT-qPCR的统计标准存在差异:前者基于全基因组背景采用FDR<0.01控制假发现率,后者针对预筛选的少数候选基因采用P<0.05评估独立可重复性。两者验证逻辑不同,但候选基因表达方向的一致性及Pearson相关系数均支持了结果的可靠性。
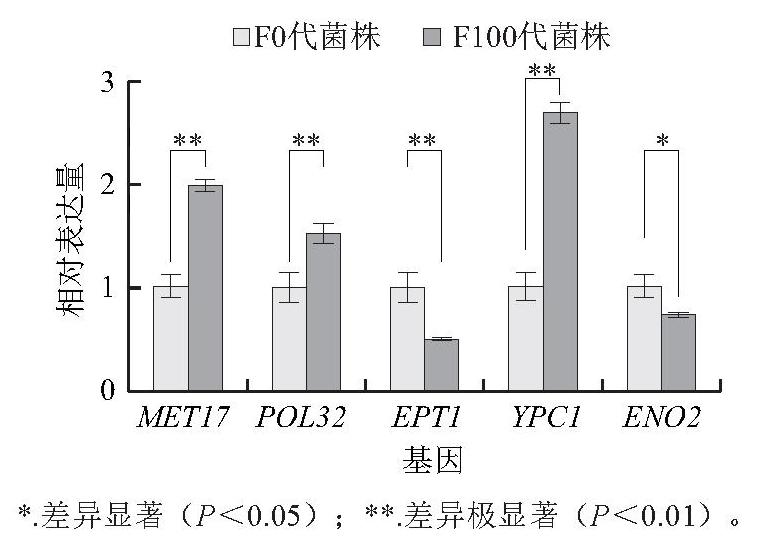
图5 RT-qPCR验证转录组结果
Fig.5 Validation of transcriptome results via reverse transcriptionquantitative polymerase chain reaction
3 讨 论
低温环境会诱导细胞产生活性氧(reactive oxygen species,ROS),进而造成氧化损伤。已有研究表明,低温可降低线粒体膜的流动性,并使电子传递链中的蛋白复合物(如复合物I和III)构象发生改变,功能受损,导致电子在传递过程中“堵塞”,更易从中间环节泄漏出来。泄漏的电子直接与周围溶解氧结合,形成超氧阴离子自由基,后者是所有ROS的起点。超氧阴离子自由基可进一步反应生成过氧化氢和羟自由基等其他ROS[30-31]。此外,低温会导致蛋白质错误折叠,而蛋白质折叠需要氧化环境并涉及电子传递,此过程也可伴随ROS的产生[32]。磷酸戊糖途径是胞内还原型烟酰胺腺嘌呤二核苷酸磷酸(nicotinamide adenine dinucleotide phosphate hydrogen,NADPH)的重要来源。NADPH是大多数ROS清除酶还原能力的最终提供者,同时,脂肪酸合成和固醇类的生物合成也需要NADPH。据此,本研究推测:酿酒酵母LKF-1的F100代菌株的糖酵解途径中几个基因表达量下降,可能使葡萄糖进入糖酵解途径比例下降,而进入磷酸戊糖途径比例提升,从而有利于胞内储备更多NADPH,为之后清除胞内ROS提供还原力。糖酵解途径下调可能同时导致胞内丙酮酸产量降低,进而使相关代谢途径整体呈下调趋势。此外,在碳代谢(ko01200)、氨基酸的生物合成(ko01230)中,MET17基因编码O-乙酰高丝氨酸磺氢解酶,该酶是含硫氨基酸(甲硫氨酸和半胱氨酸)生物合成通路中的关键酶,而半胱氨酸是合成还原型谷胱甘肽的关键前体氨基酸,通过增强半胱氨酸供给提升细胞清除ROS的能力,最终表现为抗氧化胁迫耐受性的增强[33-34]。但是上述机制主要基于转录组数据及少量RT-qPCR验证结果,属于间接推测。本研究未直接测定胞内ROS水平、NADPH/NADP+比值及相关代谢物含量,机制解析仍停留在基因表达层面。后续研究需结合ROS荧光定量、NADPH/NADP+比值测定及代谢组学分析等实验加以验证,以进一步明确该推测机制的可靠性。
甘油磷脂(ko00564)和脂肪酸合成(ko01212)属于脂质代谢途径。当温度下降时,细胞膜结构也会发生变化。磷脂具有一个极性头部和两个非极性尾部(酰基链),是细胞膜的基本结构成分。鞘脂也是细胞膜中的主要成分之一。据报道,在低温环境下编码负责合成磷脂酰乙醇胺、磷脂酰胆碱和磷脂酰甘油的酶的基因显著下调,编码碱性神经酰胺酶的YPC1是鞘脂通路中显著上调的基因[35-37]。而本研究中酿酒酵母LKF-1的F100代菌株也有这样的表现。
碱基切除修复(ko03410)是遗传物质的修复途径。低温会使核酸二级结构不稳定,增加DNA复制、转录和翻译难度,易产生DNA损伤。酿酒酵母LKF-1的F100代菌株中POL32、UNG1基因高表达,有助于在低温环境下进行DNA损伤修复[38]。
这些调控可能通过精细调节酵母细胞碳水化合物代谢和脂类等重要代谢产物的合成与分解提高胞内的还原能力,重塑酵母新稳态,进而显著提高酵母在冷冻胁迫下的生存能力。
4 结 论
将酵母菌体培养24 h后于-20 ℃低温放置24 h后,再接入YPD培养基中培养24 h。如此循环100次,培育出耐冷冻酿酒酵母菌株。结果表明,F100代菌株在常规培养条件下与F0代菌株生长速率无显著差异,表明进化过程未造成适应性代价;经-20 ℃冻存处理后,其存活率显著高于F0代菌株,表明冷冻耐受性获得实质性提升。同时,F0代菌株在20%甘油保护剂条件下,与无甘油环境下的F100代菌株冻存后的生长性能相近。转录组学分析揭示了F100代菌株冷冻耐受性相关的差异表达基因显著富集于糖酵解/糖异生,碳代谢,氨基酸生物合成,甘氨酸、丝氨酸和苏氨酸代谢,果糖和甘露糖代谢等能量代谢通路,且该类通路中下调基因呈现高度重叠特征;同时,碱基切除修复相关基因在进化菌株中显著上调表达。上述代谢通路与修复基因的表达调控共同提升了酿酒酵母在冷冻环境下的存活能力。本研究系统揭示了酿酒酵母通过ALE获得冷冻耐受性的代谢与分子机制,为深入理解酵母低温适应的生物学本质提供了新视角,也为开发高性能冷冻面团专用酵母菌株奠定了理论基础。
[1] 韩淙琳. 冷冻面团品质影响因素及改良方法[J]. 粮油科学与工程,2024, 38(4): 30-32. DOI:10.3969/j.issn.1674-5280.2024.04.009.
[2] Meziani S, Kaci M, Jacquot M, et al. Effect of freezing treatments and yeast amount on sensory and physical properties of sweet bakery products[J]. Journal of Food Engineering, 2012, 111(2): 336-342.DOI:10.1016/j.jfoodeng.2012.02.015.
[3] Tao Han, Wang Pei, Wu Fengfeng, et al. Particle size distribution of wheat starch granules in relation to baking properties of frozen dough[J]. Carbohydrate Polymers, 2016, 137: 147-153. DOI:10.1016/j.carbpol.2015.10.063.
[4] 李海峰, 吕玉兰, 吴子君, 等. 冷冻面团中酵母菌抗冻机制研究进展[J]. 河南工业大学学报(自然科学版), 2023, 44(4): 130-137.DOI:10.16433/j.1673-2383.2023.04.017.
[5] 李逸, 田晓红, 谭斌, 等. 全麦冷冻面团研究进展[J]. 粮油食品科技,2024, 32(1): 59-65. DOI:10.16210/j.cnki.1007-7561.2024.01.008.
[6] 钟文倩, 颜倩倩, 胡瑞芹, 等. 雪蚤抗冻蛋白HhAFP在毕赤酵母中的表达及其抗冻作用[J]. 农业生物技术学报, 2024, 32(12): 2848-2858.DOI:10.3969/j.issn.1674-7968.2024.12.014.
[7] 耿嫦慧. 鱼载脂抗冻蛋白在毕赤酵母中的胞内表达[J]. 生物化工,2025, 11(1): 95-101. DOI:10.20284/j.cnki.swhg.2025.01.018.
[8] 周洁, 周惠明. 添加海藻糖对酵母抗冻能力的影响[J]. 食品工业科技, 2004(11): 64-66. DOI:10.3969/j.issn.1002-0306.2004.11.017.
[9] Zhu Zhengming, Zhang Juan, Ji Xiaomei, et al. Evolutionary engineering of industrial microorganisms: strategies and applications[J].Applied Microbiology and Biotechnology, 2018, 102(11): 4615-4627.DOI:10.1007/s00253-018-8937-1.
[10] 李建, 孔婧, 李圣龙, 等. 适应性实验室进化技术在微生物育种中的应用进展[J]. 生物工程学报, 2021, 37(1): 130-141. DOI: 10.13345/j.cjb.200225.
[11] Sandberg T E, Salazar M J, Weng L L, et al. The emergence of adaptive laboratory evolution as an efficient tool for biological discovery and industrial biotechnology[J]. Metabolic Engineering, 2019, 56: 1-16. DOI:10.1016/j.ymben.2019.08.004.
[12] 王媛, 臧亚杰, 徐彬艳, 等. 多菌种酵母混菌乙醇发酵特性分析[J].食品科学, 2025, 46(14): 93-102. DOI:10.7506/spkx1002-6630-20241224-198.
[13] 张乐, 崔金娜, 刘伟, 等. 酿酒酵母耐受机制研究进展[J]. 食品科学,2024, 45(3): 317-325. DOI:10.7506/spkx1002-6630-20230207-068.
[14] 牛力源, 孙晓诚, 刘静飞, 等. 香芹酚胁迫下酿酒酵母的生理特性和转录组分析[J]. 食品科学, 2024, 45(9): 75-83. DOI:10.7506/spkx1002-6630-20230621-170.
[15] Fletcher E, Feizi A, Bisschops M M M, et al. Evolutionary engineering reveals divergent paths when yeast is adapted to different acidic environments[J]. Metabolic Engineering, 2017, 39: 19-28. DOI:10.1016/j.ymben.2016.10.010.
[16] Kildegaard K R, Hallström B M, Blicher T H, et al. Evolution reveals a glutathione-dependent mechanism of 3-hydroxypropionic acid tolerance[J]. Metabolic Engineering, 2014, 26: 57-66. DOI:10.1016/j.ymben.2014.09.004.
[17] Caspeta L, Chen Yun, Ghiaci P, et al. Altered sterol composition renders yeast thermotolerant[J]. Science, 2014, 346: 75-78.DOI:10.1126/science.1258137.
[18] Almario M P, Reyes L H, Kao K C. Evolutionary engineering of Saccharomyces cerevisiae for enhanced tolerance to hydrolysates of lignocellulosic biomass[J]. Biotechnology and Bioengineering, 2013, 110(10): 2616-2623. DOI:10.1002/bit.24938.
[19] Hacısalihoğlu B, Holyavkin C, Topaloğlu A, et al. Genomic and transcriptomic analysis of a coniferyl aldehyde-resistant Saccharomyces cerevisiae strain obtained by evolutionary engineering[J]. FEMS Yeast Research, 2019, 19(3): foz021. DOI:10.1093/femsyr/foz021.
[20] 许银, 杨强, 张龙, 等. 高产乙酸乙酯酵母菌的筛选及其在清香型小曲白酒生产中的应用[J]. 中国酿造, 2021, 40(8): 76-80.DOI:10.11882/j.issn.0254-5071.2021.08.014.
[21] GB/T 20886.1—2021 酵母产品质量要求: 第1部分 食品加工用酵母[S].
[22] Kim D, Langmead B, Salzberg S L. HISAT: a fast spliced aligner with low memory requirements[J]. Nature Methods, 2015, 12: 357-360.DOI:10.1038/nmeth.3317.
[23] Pertea M, Pertea G M, Antonescu C M, et al. StringTie enables improved reconstruction of a transcriptome from RNA-seq reads[J].Nature Biotechnology, 2015, 33: 290-295. DOI:10.1038/nbt.3122.
[24] Trapnell C, Williams B A, Pertea G, et al. Transcript assembly and quantification by RNA-Seq reveals unannotated transcripts and isoform switching during cell differentiation[J]. Nature Biotechnology,2010, 28: 511-515. DOI:10.1038/nbt.1621.
[25] Liao Yang, Smyth G K, Shi Wei. featureCounts: an efficient general purpose program for assigning sequence reads to genomic features[J].Bioinformatics, 2014, 30(7): 923-930. DOI:10.1093/bioinformatics/btt656.
[26] Love M I, Huber W, Anders S. Moderated estimation of fold change and dispersion for RNA-seq data with DESeq2[J]. Genome Biology,2014, 15(12): 550. DOI:10.1186/s13059-014-0550-8.
[27] Benjamini Y, Hochberg Y. Controlling the false discovery rate:a practical and powerful approach to multiple testing[J]. Journal of the Royal Statistical Society Series B: Statistical Methodology, 1995,57(1): 289-300. DOI:10.1111/j.2517-6161.1995.tb02031.x.
[28] Teste M A, Duquenne M, François J M, et al. Validation of reference genes for quantitative expression analysis by real-time RT-PCR in Saccharomyces cerevisiae[J]. BMC Molecular Biology, 2009, 10(1):99. DOI:10.1186/1471-2199-10-99.
[29] Livak K J, Schmittgen T D. Analysis of relative gene expression data using real-time quantitative PCR and the 2–ΔΔCt method[J]. Methods,2001, 25(4): 402-408. DOI:10.1006/meth.2001.1262.
[30] König H, Unden G, Fröhlich J. Stress responses in wine yeast[M]//König H, Unden G, Fröhlich J. Biology of microorganisms on grapes, in must and in wine. Cham: Springer, 2017: 377-395. DOI:10.1007/978-3-319-60021-5_16.
[31] Laman Trip D S, Maire T, Youk H. Slowest possible replicative life at frigid temperatures for yeast[J]. Nature Communications, 2022, 13:7518. DOI:10.1038/s41467-022-35151-2.
[32] Aguilera J, Randez-Gil F, Prieto J A. Cold response in Saccharomyces cerevisiae: new functions for old mechanisms[J]. FEMS Microbiology Reviews, 2007, 31(3): 327-341. DOI:10.1111/j.1574-6976.2007.00066.x.
[33] Song Xueting, Kong Fanying, Liu Bingfeng, et al. Antioxidants alleviated low-temperature stress in microalgae by modulating reactive oxygen species to improve lipid production and antioxidant defense[J]. Bioresource Technology, 2024, 413: 131451. DOI:10.1016/j.biortech.2024.131451.
[34] Song Yaoyao, Zhang Tianyuan, Yu Di, et al. Acetylation of Glr1p by NatA enhances the cold tolerance of Saccharomyces cerevisiae ZX11[J].Food Bioscience, 2025, 68: 106365. DOI:10.1016/j.fbio.2025.106365.
[35] Yang Chuan, Dong Aoxue, Deng Li, et al. Deciphering the change pattern of lipid metabolism in Saccharomyces cerevisiae responding to low temperature[J]. Biochemical Engineering Journal, 2023, 194:108884. DOI:10.1016/j.bej.2023.108884.
[36] Puig-Castellví F, Bedia C, Alfonso I, et al. Deciphering the underlying metabolomic and lipidomic patterns linked to thermal acclimation in Saccharomyces cerevisiae[J]. Journal of Proteome Research, 2018,17(6): 2034-2044. DOI:10.1021/acs.jproteome.7b00921.
[37] Řezanka T, Kolouchová I, Gharwalová L, et al. Sphingolipidomics of thermotolerant yeasts[J]. Lipids, 2018, 53(6): 627-639. DOI:10.1002/lipd.12076.
[38] Thieringer H A, Jones P G, Inouye M. Cold shock and adaptation[J].BioEssays, 1998, 20(1): 49-57. DOI:10.1002/(sici)1521-1878(199801)20:1<49>::AID-BIES7>3.0.CO;2-N.