浓香型白酒是我国传统固态发酵酿酒工艺的典型代表,其独特风味的形成来自复杂的微生物驱动。酒醅作为发酵的核心载体,能够为窖池微生物提供营养物质与微生态环境[1]。酒醅的发酵过程依赖于窖池微生物的动态平衡,其质量直接决定白酒的产量和品质[2],目前,通过高通量测序与代谢组学关联分析初步揭示了浓香型白酒酒醅中丰富的微生物多样性,并明确了其对风味物质形成的关键作用[3-4]。
白酒酿造过程中,酒醅在窖池内呈现显著的分层分布特征,不同层次的酒醅微生物和风味物质存在显著差异[5-8]。余松柏等[9]研究表明,浓香型白酒酿造过程中,下层酒醅有机酸总含量高于上层和中层,乳酸、乙酸、丁二酸、丁酸、亚油酸是区分窖池中不同空间位置酒醅的关键差异物质。王轩等[10]研究发现,己酸乙酯、戊酸乙酯、正己醇、正丁醇、丁酸、乙酸为上、中、下层原酒共有的6种差异风味物质,且含量随着窖池深度增加而递增,而3-甲基丁醇则呈相反趋势,这种层间风味物质的差异直接导致原酒品质的分化。田瑞杰等[11]研究表明,各层酒醅中的细菌和真菌群落组成无明显差异,下层与中层酒醅、中层与上层酒醅之间的差异表达基因数量较多,且主要富集在RNA降解和糖酵解/糖异生通路,而各层酒醅之间的差异表达基因的功能大多为代谢活动;整体上,中层酒醅活性微生物菌群对RNA降解的影响最低,下层酒醅活性微生物菌群在代谢活动上的贡献最大。酒醅的层次差异影响微生物群落结构、功能及互作关系,对原酒风味品质产生显著影响[12-13]。现有研究多集中于不同层次酒醅的微生物组成差异,鲜有解析不同层次酒醅中驱动风味物质形成的微生物互作机制的研究报道。
本研究以浓香型白酒酿造过程中上、中、下层酒醅为研究对象,采用高通量测序技术解析各层次酒醅的微生物群落结构,利用随机森林算法解析表征上、中、下层酒醅间差异的生物标志物,基于共现网络分析探究细菌、真菌菌群间的互作关系,并通过PICRUSt2预测细菌、真菌菌群的代谢功能,以期解析浓香型白酒生产过程中上、中、下层酒醅的微生物群落结构演替规律,为浓香型白酒生产工艺优化提供技术支撑。
1 材料与方法
1.1 材料与试剂
酒醅样品采集于山东济南某浓香型白酒厂。
氢氧化钠、无水乙醇、浓硫酸、盐酸、冰乙酸、牛血清白蛋白(bovine serum albumin,BSA)、琼脂糖(均为分析纯) 上海麦克林生化科技股份有限公司;DNA提取试剂盒 美国MP Biomedicals公司;HiSeq Rapid SBS Kit v2、TruSeq DNA PCR-Free Sample Prep Kit 美国Illumina公司。
1.2 仪器与设备
MQL-61R立式全温振荡培养箱 上海旻泉仪器有限公司;AL204精密电子天平 梅特勒-托利多仪器(上海)有限公司;T100聚合酶链式反应(polymerase chain reaction,PCR)仪 上海伯乐生命医学产品有限公司;Clarus 690/Clarus 5Q 8T顶空固相微萃取-气相色谱-质谱(headspace solid-phase microextractiongas chromatography-mass spectrometry,HS-SPME-GC-MS)仪、DB-WAX毛细管色谱柱(60 m×0.25 mm,0.25 μm) 美国Agilent公司;LYNX 6000高速冷冻离心机、Qubit 4.0荧光定量仪 美国赛默飞科技有限公司。
1.3 方法
1.3.1 酒醅样品采集
选择3个生产中基酒质量长期稳定且品质相近的窖池(5、6、7号窖池)作为平行窖池,分别以入窖5、15、30、60 d为采样时间点,取窖池上层(S)、中层(Z)和下层(X)酒醅;每层在4个点位取样,混匀后分为3份平行样,装入无菌密封袋,共获得108个酒醅样品,以编号S_5、S_15、S_30为例,S代表上层酒醅,5代表入窖5 d取样。所有样品于-20 ℃保存待测。
1.3.2 理化指标检测
水分质量分数的测定:参考GB 5009.3—2016《食品安全国家标准 食品中水分的测定》中的直接干燥法;酸度的测定:酸碱滴定法;乙醇体积分数测定:蒸馏法[14];还原糖质量分数的测定:参考GB 5009.7—2016《食品安全国家标准 食品中还原糖的测定》中的直接滴定法。
1.3.3 微生物基因组提取及高通量测序
采用DNA提取试剂盒提取酒醅样品DNA后,采用0.8%琼脂糖凝胶电泳检验DNA质量。采用通用引物338F(5′-ACTCCTACGGGAGGCAGCAG-3′)和806R(5′-GGACTACHVGGGTWTCTAAT-3′)扩增细菌16S rRNA基因的V3~V4可变区,采用ITS1F(5′-CTTGGTCATTTAGAGGAAGTAA-3′)和ITS2R(5′-GCTGCGTTCTTCATCGATGC-3′)扩增真菌的ITS1区。PCR扩增体系:5×FastPfu缓冲液 4 μL、2.5 mmol/L dNTPs 2 μL、5 μmol/L上下游引物各0.8 μL、FastPfu DNA聚合酶0.4 μL、BSA溶液0.2 μL、DNA模板10 ng,双蒸水(ddH2O)补足至20 μL。PCR扩增条件:95 ℃预变性3 min;30次循环(95 ℃变性30 s,53 ℃退火30 s,72 ℃延伸45 s);72 ℃延伸10 min。采用荧光定量仪检测PCR产物浓度及纯度。检测合格后送至上海美吉生物医药科技有限公司进行Illumina MiSeq双端测序。
1.3.4 生物信息学分析
采用QIIME 2(v2023.7)对原始测序数据开展质量控制。使用DADA2算法对数据进行去噪、拼接和去嵌合体等处理并获得扩增子序列变体(amplicon sequence variant,ASV)[15]。分别基于GreenGenes数据库对 16S rRNA基因序列、UNITE数据库对ITS序列进行物种分类注释。
1.4 数据处理
采用SPSS 23.0软件进行统计分析;使用R-4.4.3软件基于Bray-Curtis算法对微生物群落进行聚类分析、随机森林分析;使用Gephi v.0.10.1软件绘制分子生态网络图。
2 结果与分析
2.1 浓香型白酒酿造过程中各层次酒醅理化指标
环境因子与微生物群落相互影响、密切相关[16]。由图1a可知,随着发酵时间在5~60 d内的延长,酒醅样品水分含量整体呈先上升后下降的变化趋势,并在发酵30 d达到最大值。发酵5~15 d时,各层次酒醅水分含量差异不显著;发酵30~60 d时,下层酒醅水分质量分数(66.03%~77.85%)始终高于中层(63.30%~72.17%)和上层(63.27%~71.34%),可能是由于窖池内水分向下迁移,发酵后期窖内温度升高,上、中层酒醅水分自然挥发,导致水分含量相对较低[17]。由图1b可知,发酵5~30 d,各层次酒醅酸度逐渐增加;发酵30~60 d后,酸度变化趋于平稳。上层酒醅酸度(2.56~2.98 mmol/10 g)在酿造过程中始终低于中层(2.78~3.15 mmol/10 g)与下层(2.83~3.21 mmol/10 g);发酵结束时,上、中、下层酒醅酸度分别为2.97、3.10、3.21 mmol/10 g。在白酒酿造过程中,窖池内中、下层酒醅处于低氧或厌氧环境,厌氧微生物大量繁殖[18],可促进乳酸、丁酸、己酸等有机酸的合成积累,故而中、下层酒醅酸度更高。
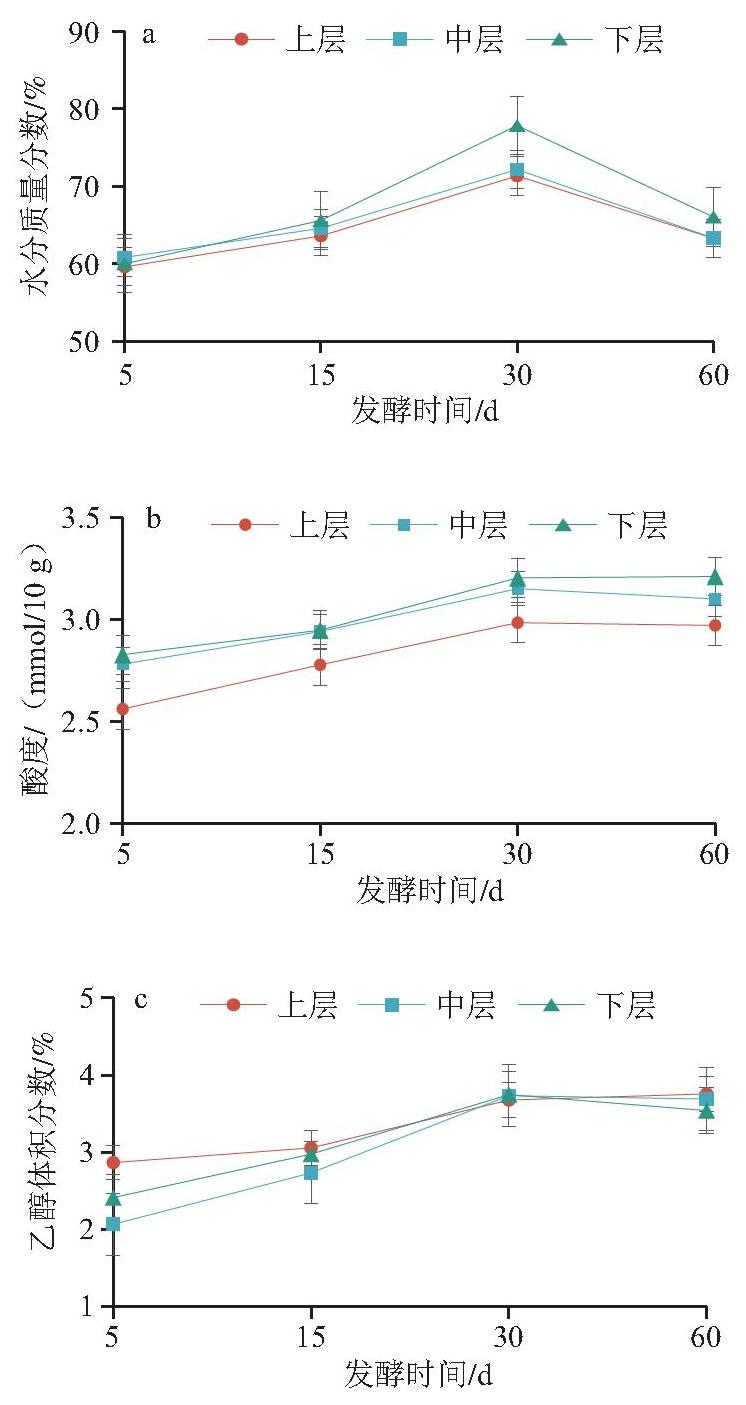
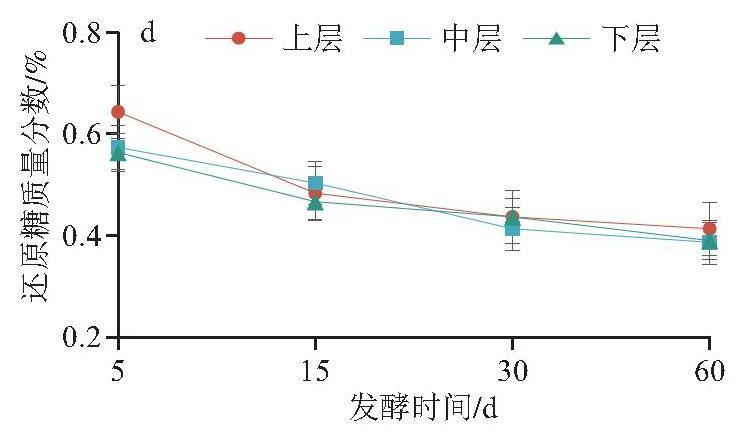
图1 浓香型白酒酿造过程中酒醅水分质量分数(a)、酸度(b)、乙醇体积分数(c)及还原糖质量分数(d)变化
Fig.1 Changes in moisture (a), acidity (b), ethanol (c), and reducing sugar (d) content of fermented grains during strong-flavor Baijiu brewing
由图1c可知,发酵5~30 d,各层次酒醅乙醇体积分数逐渐增加;发酵30~60 d后,乙醇体积分数变化趋于平稳,且各层次酒醅乙醇体积分数差异不大,发酵结束时,上、中、下层酒醅乙醇体积分数分别为3.76%、3.69%、3.54%。发酵前期窖池内温度升高,酵母菌发酵旺盛导致乙醇体积分数升高,而发酵后期窖池内营养物质减少,微生物互作关系和代谢处于动态平衡,乙醇体积分数趋向稳定[19]。由图1d可知,发酵5 d时,上层酒醅还原糖质量分数(0.64%)高于中层(0.57%)与下层(0.56%),还原糖在整个发酵过程中呈现下降趋势,尤其在发酵5~15 d时下降较快,发酵15~60 d下降速率趋缓;发酵结束时,上、中、下层酒醅还原糖质量分数分别为0.41%、0.38%、0.39%。在发酵前期,上层酒醅微生物群落将淀粉降解为还原糖的速率超过了还原糖的消耗速率,导致上层还原糖含量略高[20]。综上,在发酵过程中,下层酒醅水分含量、酸度较高,乙醇体积分数及还原糖含量与上层及中层酒醅差异不大,酒醅理化指标变化趋势与曾波[18]、王乐[21]等的研究结论一致。
2.2 浓香型白酒酿造过程中各层次酒醅微生物群落结构
2.2.1 各层次酒醅细菌群落组成
属水平下浓香型白酒酿造过程中各层次酒醅细菌群落结构如图2所示。不同酒醅共检出13个优势细菌属(相对丰度>1%),主要包括乳杆菌属(Lactobacillus)、醋杆菌属(Acetobacter)、棒状杆菌属(Corynebacterium) 等。发酵5 d时,上层酒醅优势细菌属主要为Lactobacillus、 唾液乳杆菌属(Ligilactobacillus)、Acetobacter、Corynebacterium等,其中Lactobacillus(33.80%)相对丰度高于中层(19.57%)和下层(14.08%),而Acetobacter(2.48%)、Corynebacterium(3.35%)相对丰度则低于中层(4.50%、6.83%)与下层(9.86%、13.43%),中、下层酒醅优势菌属主要为Lactobacillus、Acetobacter、Corynebacterium、八叠球菌属(Sporosarcina)、海洋芽孢杆菌属(Oceanobacillus)等,其中Sporosarcina和Oceanobacillus在上层酒醅中未检出,但在中层(8.12%、8.16%)、下层(12.76%、8.93%)酒醅相对丰度较高,为中、下层酒醅特有优势细菌属;发酵15 d,Lactobacillus逐渐成为各层酒醅中的绝对优势微生物(相对丰度>95%),上层酒醅优势菌属为Lactobacillus和Acetobacter,其相对丰度分别为85.07%和7.14%,而中层和下层酒醅中Lactobacillus相对丰度占绝对优势(相对丰度均>95%)。发酵30~60 d,各层酒醅细菌微生物群落结构无明显差异,均以Lactobacillus为绝对优势菌属。值得注意的是,Acetobacter仅存在于发酵前15 d,可能是由于发酵后期窖池内的厌氧环境导致Acetobacter消亡[22]。Lactobacillus相对丰度在发酵前30 d持续上升,成为酒醅发酵中的绝对优势微生物,发酵60 d相对丰度有所下降,这一变化规律与已有浓香型白酒酒醅微生物群落变化研究结论[23]一致。Lactobacillus能促进乳酸、乙酸等酸类物质积累[2],还可合成多种醇类及酚类化合物,贡献草木和花香调风味[24],其在发酵30~60 d酒醅中占据绝对优势地位,主要积累酸类、酚类、醇类等风味物质。
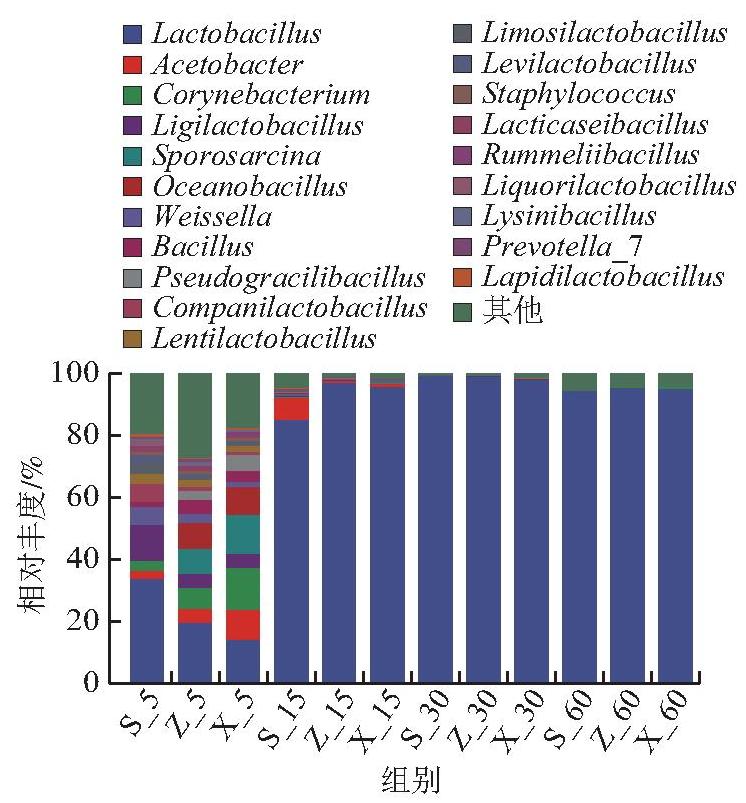
图2 属水平下浓香型白酒酿造过程中各层次酒醅细菌群落结构
Fig.2 Bacterial community structures of fermented grains from different layers at genus level during strong-flavor Baijiu brewing
2.2.2 各层次酒醅真菌群落组成
属水平下浓香型白酒酿造过程中各层次酒醅真菌群落结构如图3所示。不同酒醅样品共检出16个优势真菌属(相对丰度>1%),主要包括嗜热子囊菌属(Thermoascus)、毕赤酵母属(Pichia)、丝孢酵母属(Trichosporon)、酵母属(Saccharomyces)等。发酵5 d时,3层酒醅优势真菌属均主要为Thermoascus、Pichia、Saccharomyces等,但不同层酒醅真菌相对丰度存在差异,上层酒醅中Thermoascus(41.96%)和Saccharomyces(18.47%)相对丰度均高于中层(26.66%、9.84%)与下层(26.46%、9.58%),而Pichia(6.15%)相对丰度低于中层(24.97%)、下层(15.56%);发酵15 d时,Pichia在各层酒醅中的相对丰度均较高(35.75%~47.66%),Monascus在中层酒醅中的相对丰度(26.16%)高于上层(3.57%)、下层(2.13%)。发酵30 d时,上层优势菌真属主要为Thermoascus、Pichia和Saccharomyces,其中Thermoascus(50.65%)和Saccharomyces(9.48%)相对丰度高于中层(26.31%、2.28%)、下层(24.73%、0.86%);中、下层酒醅优势菌真属主要为Thermoascus、Pichia和Trichosporon,其中中层(23.68%)、下层(23.88%)酒醅Trichosporon相对丰度高于上层(1.07%),3层酒醅Pichia相对丰度无明显差异。发酵60 d时,上层酒醅优势真菌仅有3个,中层酒醅优势真菌属为4个,下层酒醅优势真菌属为6个。中层酒醅Thermoascus相对丰度(50.96%)低于上层(69.94%)、下层(62.44%)酒醅,而Trichosporon相对丰度(7.73%)高于上层(0.01%)和下层(2.06%)。酒醅真菌群落的多样性在酿造过程中同样呈下降趋势,优势真菌属多样性在发酵30 d后明显降低。上、中、下层酒醅真菌群落在发酵过程中存在明显的层间差异,且该差异随发酵进行呈动态变化。Pichia普遍具有高效的醇乙酰转移酶活性[25],能够催化乙醇与有关底物反应生成相应的乙酯,同时也能够代谢产生多种有机酸和醇类[26],为酯化反应提供前体物质。Thermoascus具有产纤维素酶、蛋白酶、淀粉酶及脂肪酶等酶类的能力[27]。
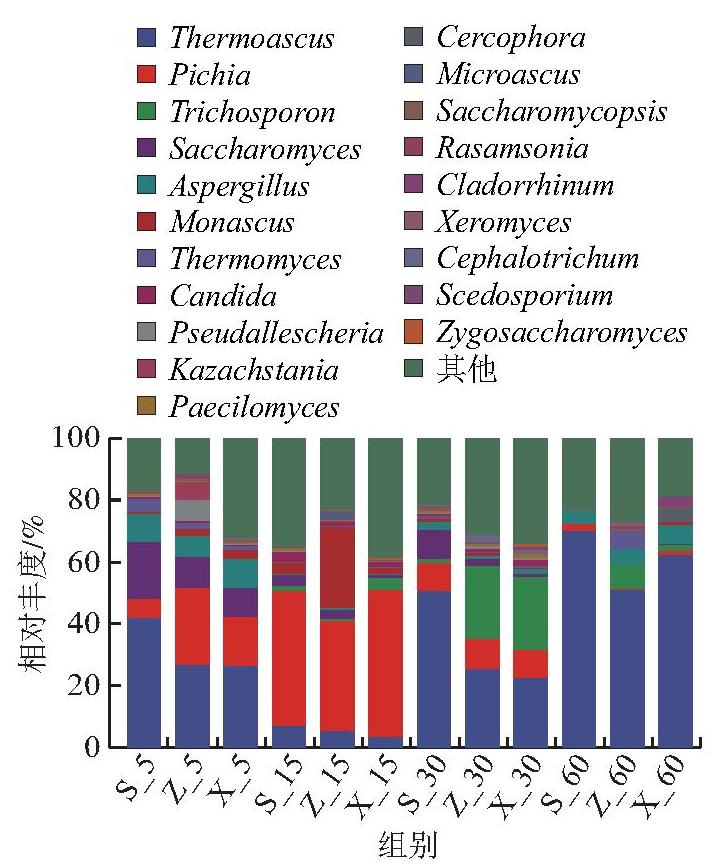
图3 属水平浓香型白酒酿造过程中各层次酒醅真菌群落结构
Fig.3 Fungal community structures of fermented grains from different layers at genus level during strong-flavor Baijiu brewing
综上,浓香型白酒发酵过程中,酒醅细菌与真菌群落的演替规律存在明显分化,细菌群落快速定向演替,酒醅微生物层间差异集中于发酵5 d;真菌群落演替速率相对平缓,层间差异在发酵30 d最为突出。
2.2.3 各层次酒醅微生物群落差异
为进一步探究各层次酒醅间微生物群落的差异,基于随机森林学习算法对其进行分类预测。各类群对群落差异的贡献程度由重要性评分表示,其中重要性评分排名前4的物种为组间差异标志性物种。由图4可知,发酵5 d时,微生物群落存在显著差异:Ligilactobacillus、魏斯氏菌属(Weissella)、Saccharomyces被鉴定为上层酒醅的标志性差异物种,而Acetobacter则为下层酒醅的标志性差异物种;发酵15 d时,Acetobacter为上层酒醅的标志性差异物种,红曲霉属(Monascus)为中层酒醅的标志性差异物种;在发酵30 d后,3层酒醅的细菌群落结构基本一致。发酵30 d上层酒醅真菌微生物群落结构与中、下层存在差异,上层酒醅中的Thermoascus和Saccharomyces为标志性差异物种,Trichosporon为中层和下层酒醅的标志性差异物种,这与田瑞杰等[11]的研究结果一致。Thermoascus真菌多为嗜热菌[28],能够适应窖池的高温环境,具有产纤维素酶、蛋白酶、淀粉酶、脂肪酶和酯化酶等酶类的能力[27,29],能够有效降解淀粉、蛋白质,产生糖类、氨基酸等前体物质[30]。符长彪等[31]研究发现,Trichosporon在窖池内部的相对丰度最高,表明深层窖池的环境比较适合该菌属定殖。随着发酵时间的延长,上、中、下3层酒醅样品的真菌多样性逐渐降低,可能是由于发酵30~60 d酒醅理化环境趋向恶化且营养成分减少[32],导致多数真菌难以适应环境胁迫而衰亡。本研究发现,酒醅细菌群落结构层间差异主要出现在发酵5 d,真菌群落结构层间差异主要出现在发酵30 d,发酵60 d的微生物群落层间差异较小。
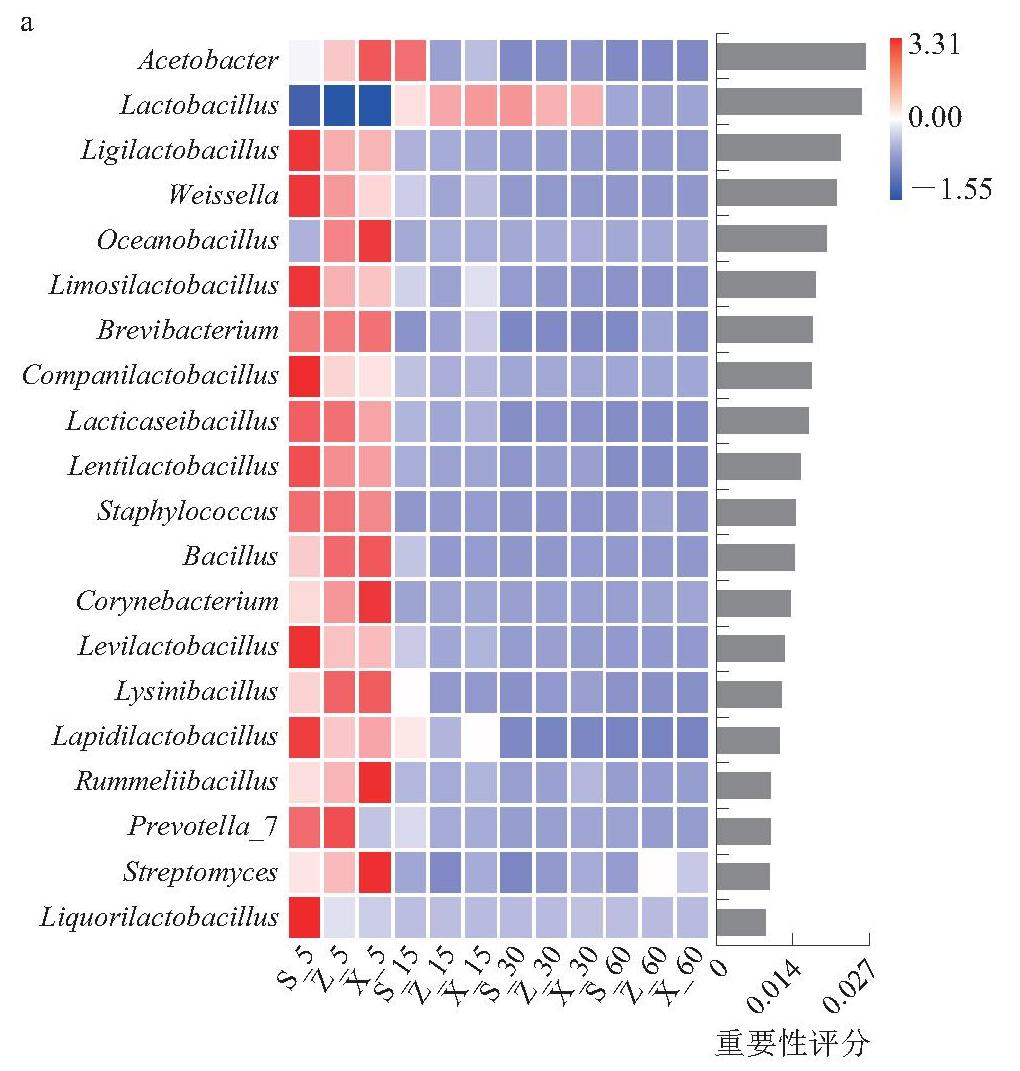
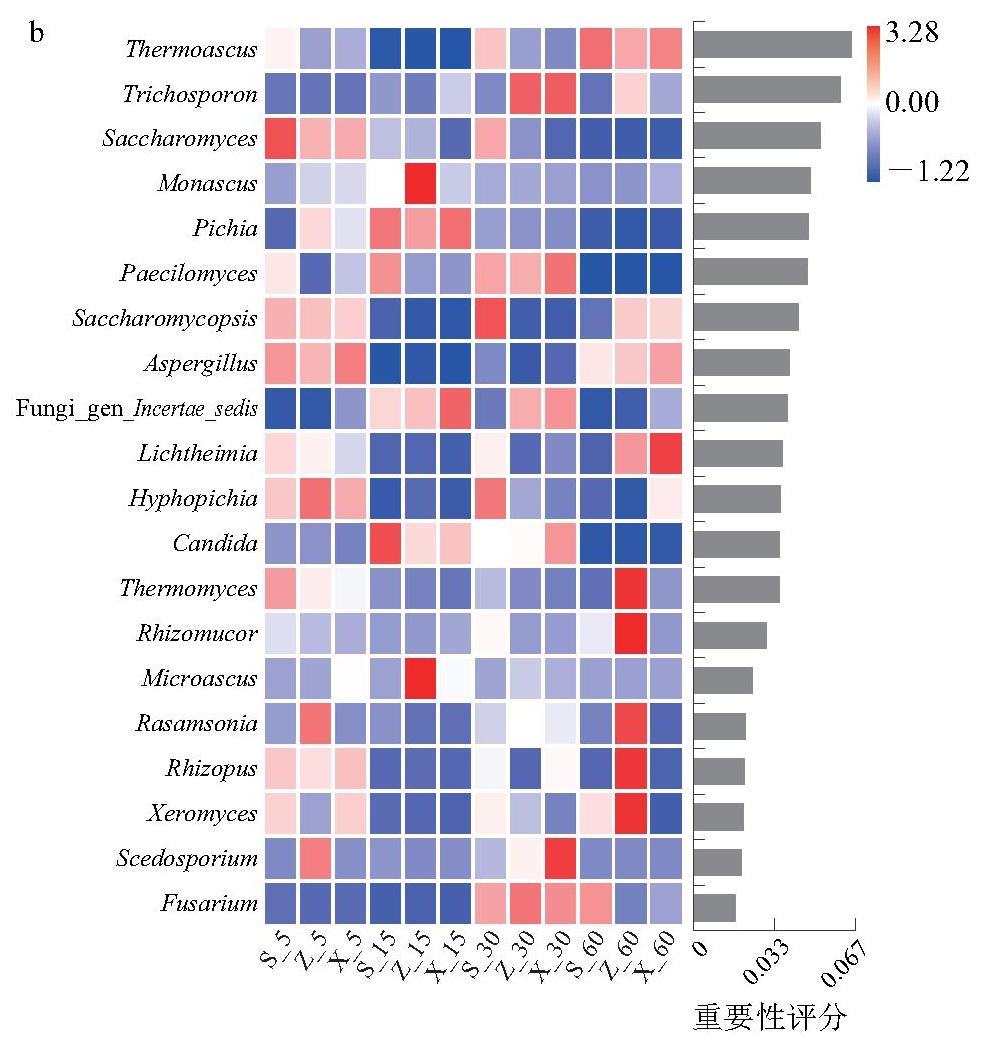
图4 属水平下各层次酒醅发酵过程中细菌(a)与真菌(b)随机森林分析
Fig.4 Random forest analysis of bacteria (a) and fungi (b) in fermented grains of various layers at genus level throughout fermentation
2.3 浓香型白酒酿造过程中各层次酒醅微生物群落共现网络分析
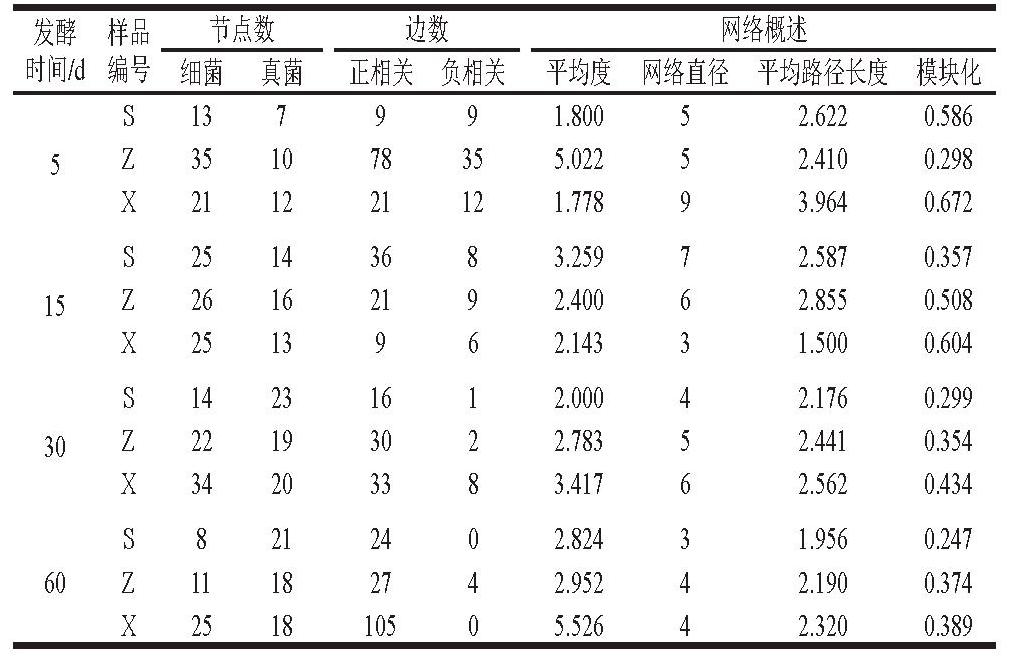
为解析浓香型白酒发酵过程中上、中、下层酒醅中平均相对丰度>1%的优势细菌属与真菌属间的互作关系,基于Spearman相关性分析(P<0.05、|r|>0.6)构建微生物共现网络[33],其中细菌与真菌节点数反映对应菌群的物种丰富度;边数表征微生物群落潜在互作关系的复杂程度;平均度越高,物种间的关联越紧密;网络直径越小,群落内信息流传递步骤越少,反之则网络层级结构相对复杂;平均路径长度用于衡量网络整体联通效率,平均路径长度越短表明微生物群落的生态反应效率越高;模块化代表网络的模块划分程度,高模块化的网络通常具有更高的生态稳定性[12]。
由表1可知,随着发酵的进行,不同层次酒醅的微生物共现网络呈现显著的时空演替特征。发酵5 d时,不同层次酒醅的微生物网络参数表现出明显差异,中层酒醅细菌及真菌生态网络丰富度更高,互作较复杂,其节点数和边数(45、113)远高于上层(20、18)和下层(33、33),且平均度较高(5.022),表明中层环境最适宜早期微生物的快速繁殖。发酵15 d时,各层节点数趋同(38~42),酒醅微生物群落总丰富度下降,物种间共现关系趋向互利共生,表明微生物在不同层次酒醅间差异减弱。发酵30~60 d,微生物群落生态网络的平均路径长度和网络直径逐渐减小,且发酵60 d时,上层酒醅的微生物网络节点数(29)、边数(24)、平均度(2.824)等拓扑指标均较低,下层酒醅的微生物网络边数(105)、平均度(5.526)较高。上述特征表明该发酵阶段网络以真菌为主导,信息和物质传递效率提高,形成了响应迅速、代谢流畅的高效共生系统。下层酒醅微生物群落抱团分布所呈现的“小世界效应”[34]随发酵进行逐渐减弱,相互作用增强,群落模块化之间的分布变得疏松。
表1 浓香型白酒酿造过程中各层次酒醅微生物群落共现网络核心拓扑参数
Table1 Core topological parameters of co-occurrence networks of microbial communities in fermented grains from different layers during strong-flavor Baijiu brewing
时间/d编号细菌真菌正相关负相关平均度网络直径平均路径长度模块化S137991.80052.6220.586 S25143683.25972.5870.357 X2513962.14331.5000.604 X34203383.41762.5620.434 X251810505.52642.3200.389发酵样品节点数边数网络概述5Z351078355.02252.4100.298 X211221121.77893.9640.67215Z26162192.40062.8550.508 S14231612.00042.1760.29930Z22193022.78352.4410.354 S8212402.82431.9560.24760Z11182742.95242.1900.374
综上,发酵过程中各层酒醅微生物物种丰富度呈下降趋势,但物种间共现关系趋向紧密。文悦等[12]研究证实,酒醅发酵过程中分子生态网络中的节点数量不断减少,与本研究结果基本一致,但该研究发现发酵后期微生物间共生关系减少、竞争加剧,与本研究结果存在差异,推测该差异主要归因于该研究发酵周期较长(90 d),长时间发酵加剧了种间竞争作用[35-36];此外,发酵环境、地域条件差异也可能导致微生物群落动态演替规律存在多样性。
将高平均度、高谐波中心性、高谐波紧密度中心性、高中介中心性[37-38]微生物判定为核心微生物。由图5可知,发酵5 d,各层酒醅共现网络差异较显著:上层酒醅的核心微生物为耐干霉属(Xeromyces)、Lactobacillus和嗜热真菌属(Thermomyces);中层酒醅以Aspergillus、Thermomyces和Pseudallescheria为核心微生物;下层酒醅由Paecilomyces、Sporosarcina等构成核心微生物。该阶段中、下层酒醅的核心菌群由高糖化力真菌主导,明确了中、下层酒醅在发酵启动阶段的糖化功能核心地位,与胡晓龙等[39]的研究结果一致,其证实酒醅发酵前期微生物上调的差异表达基因显著富集于糖酵解、葡萄糖分解代谢等过程,且相关基因在所有生物过程条目中占比较高。发酵15 d,各层酒醅微生物差异程度减弱但依然存在:Lactobacillus成为各层酒醅生态网络的核心微生物,但其共存的核心微生物仍具层间特异性,上层酒醅为Paecilomyces,中层酒醅为Monascus,下层酒醅为Candida和Acetobacter。值得注意的是,该阶段相对丰度较高的Pichia并未成为网络核心微生物,表明其在酒醅微生态中具有相对独立的生态功能[40]。发酵30~60 d,各层酒醅的生态网络差异显著减弱,Lactobacillus成为贯穿上、中、下层的绝对核心枢纽,构建了高度紧密的互营共生网络。这一演替特征是发酵环境压力与微生物生态互作共同作用的结果,核心驱动力为发酵过程中的理化环境变化:酸度与乙醇含量升高、营养物质不断消耗导致大多数好氧、不耐酸及不耐乙醇的微生物受到强烈抑制。发酵60 d,下层酒醅核心微生物除Lactobacillus外,还包括Thermomyces和Aspergillus,表明下层酒醅在发酵末期仍维持相对更复杂的核心功能模块,进一步论证了其作为稳定核心的特殊地位。
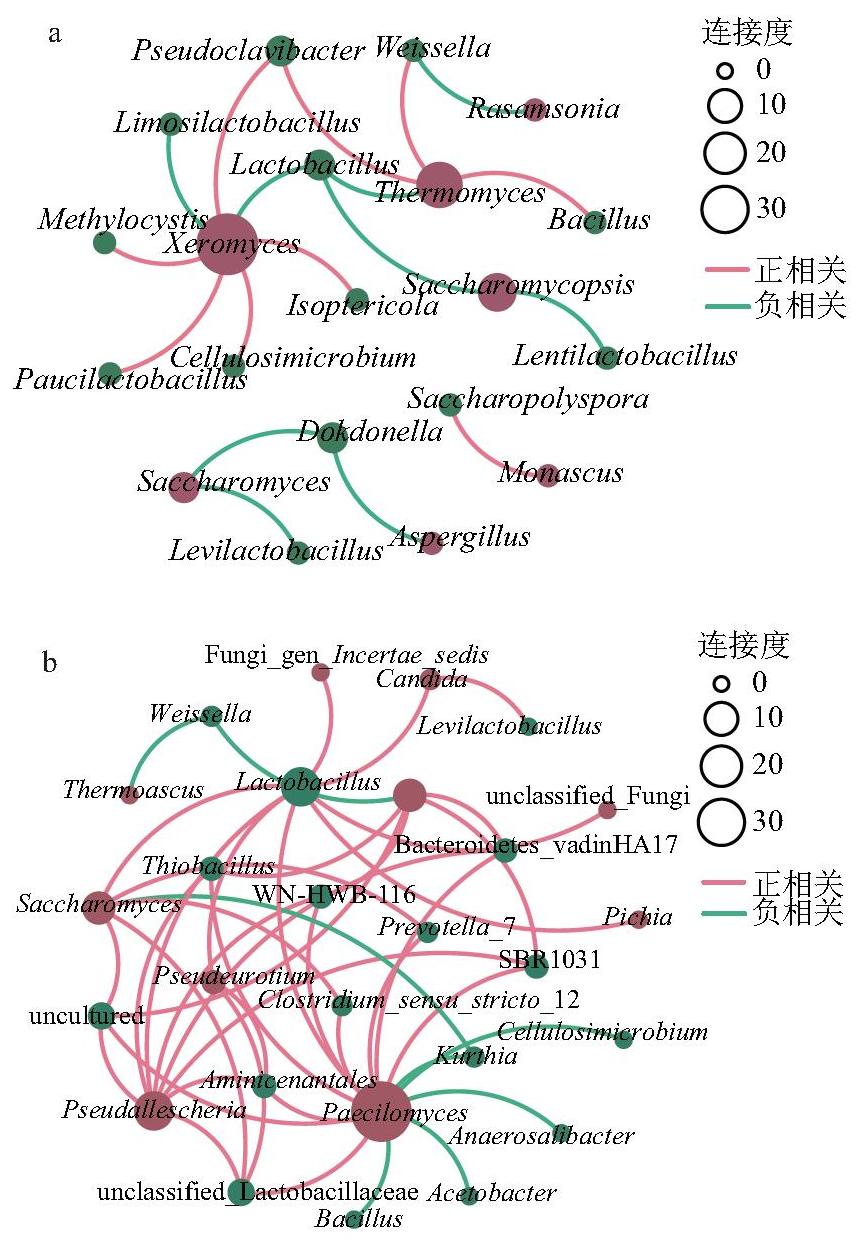
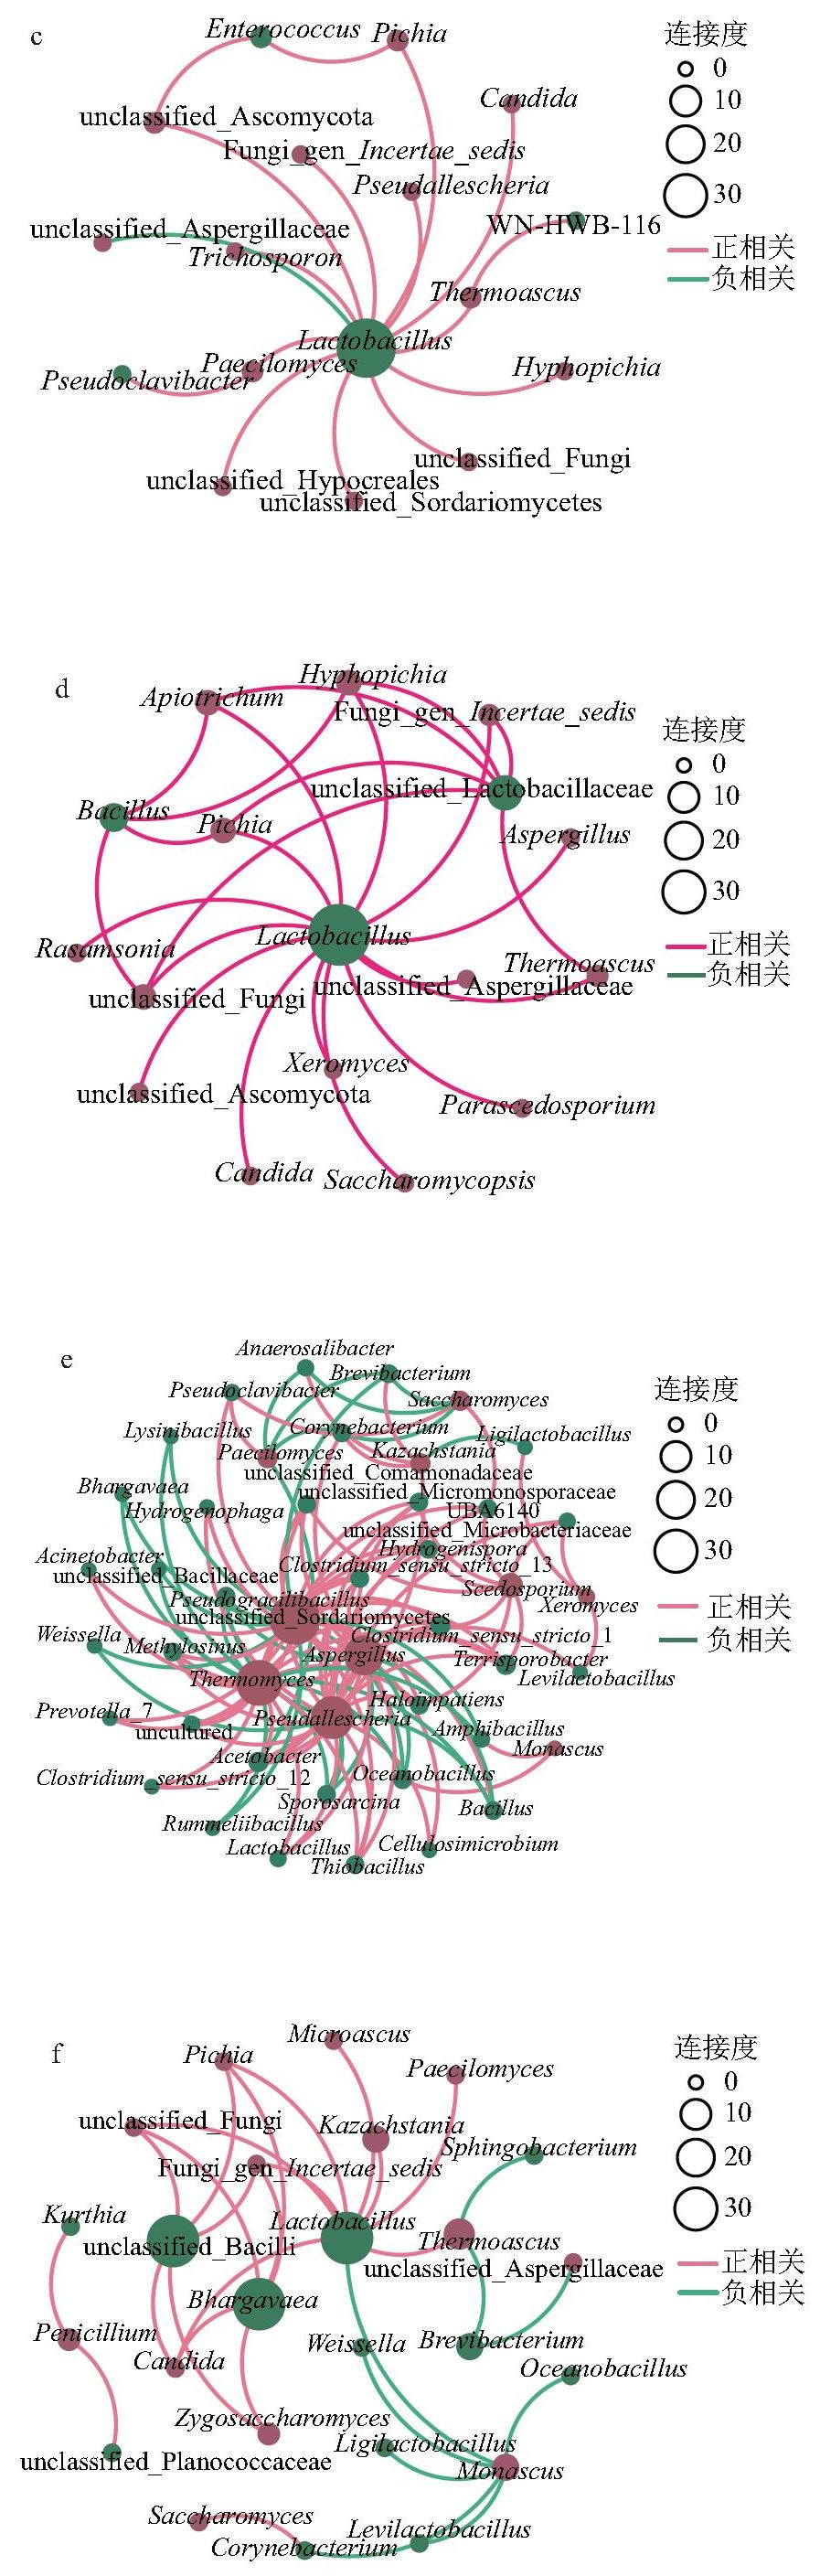
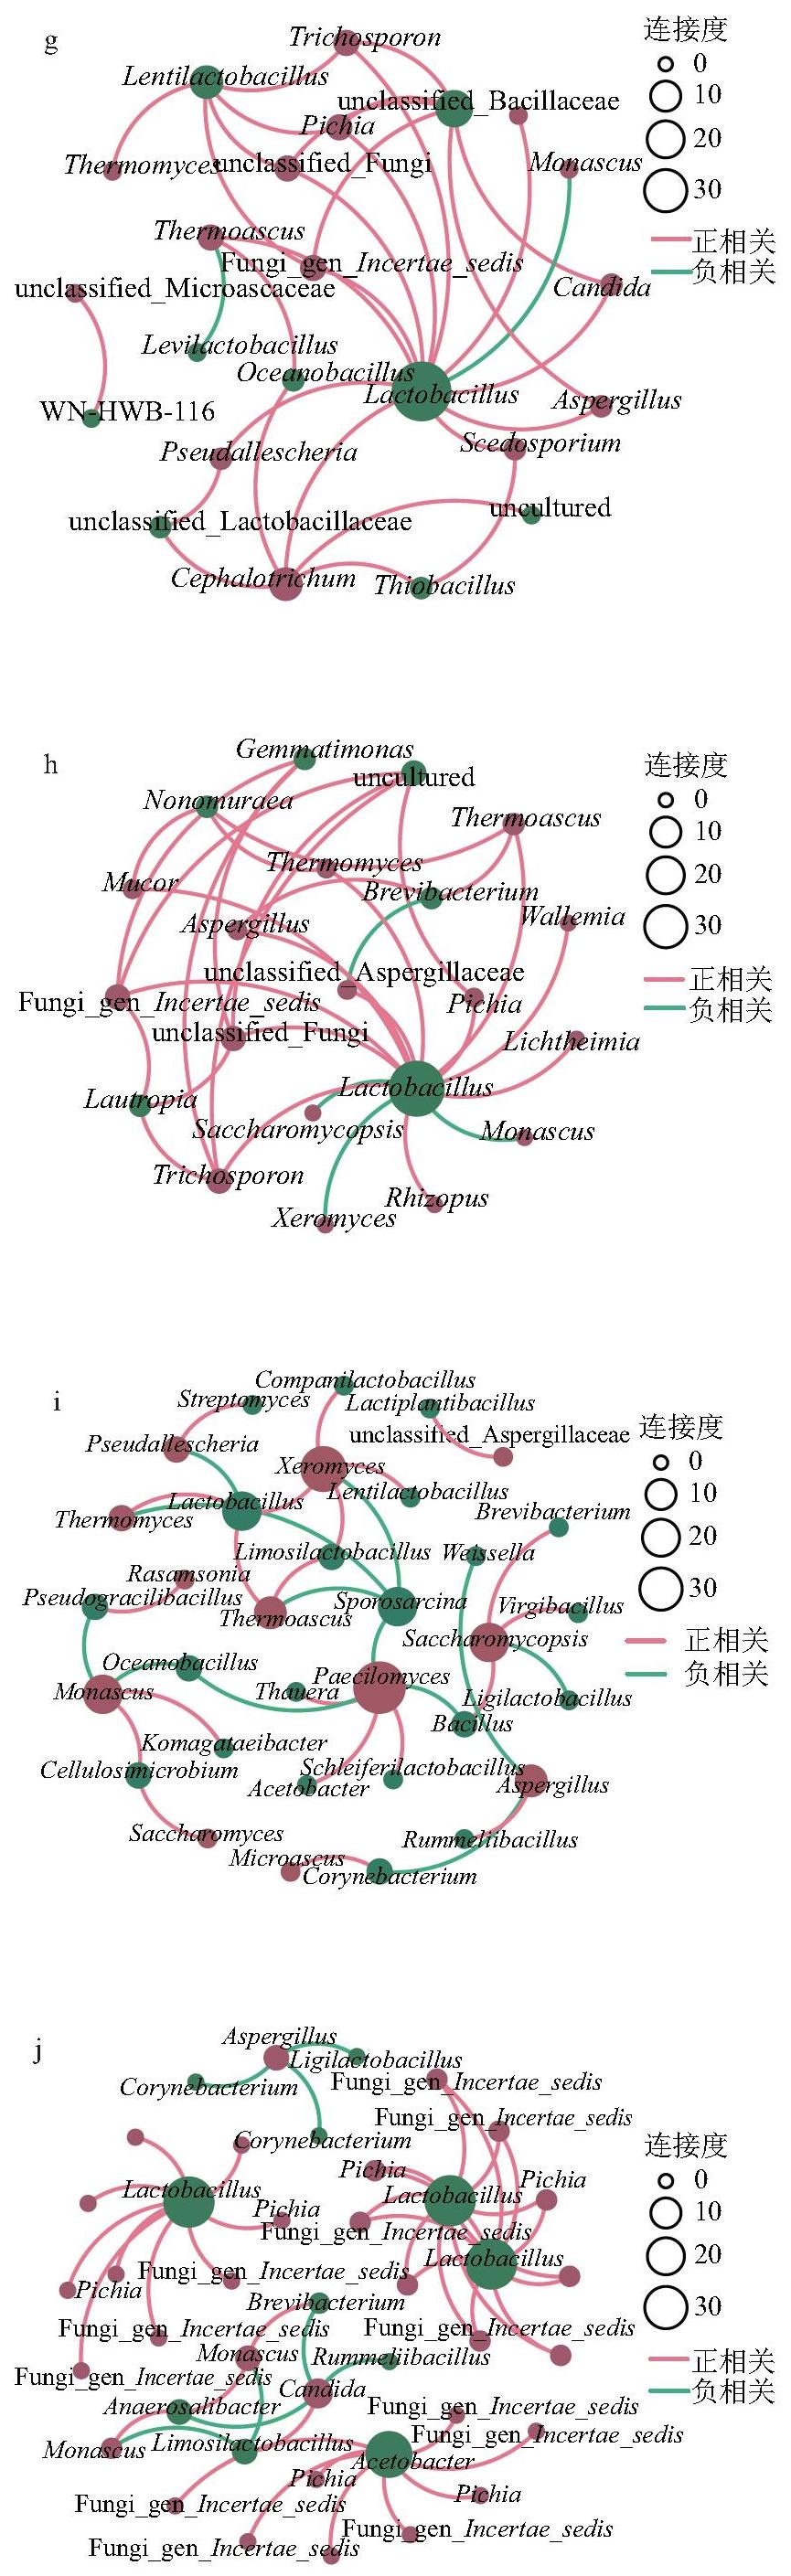
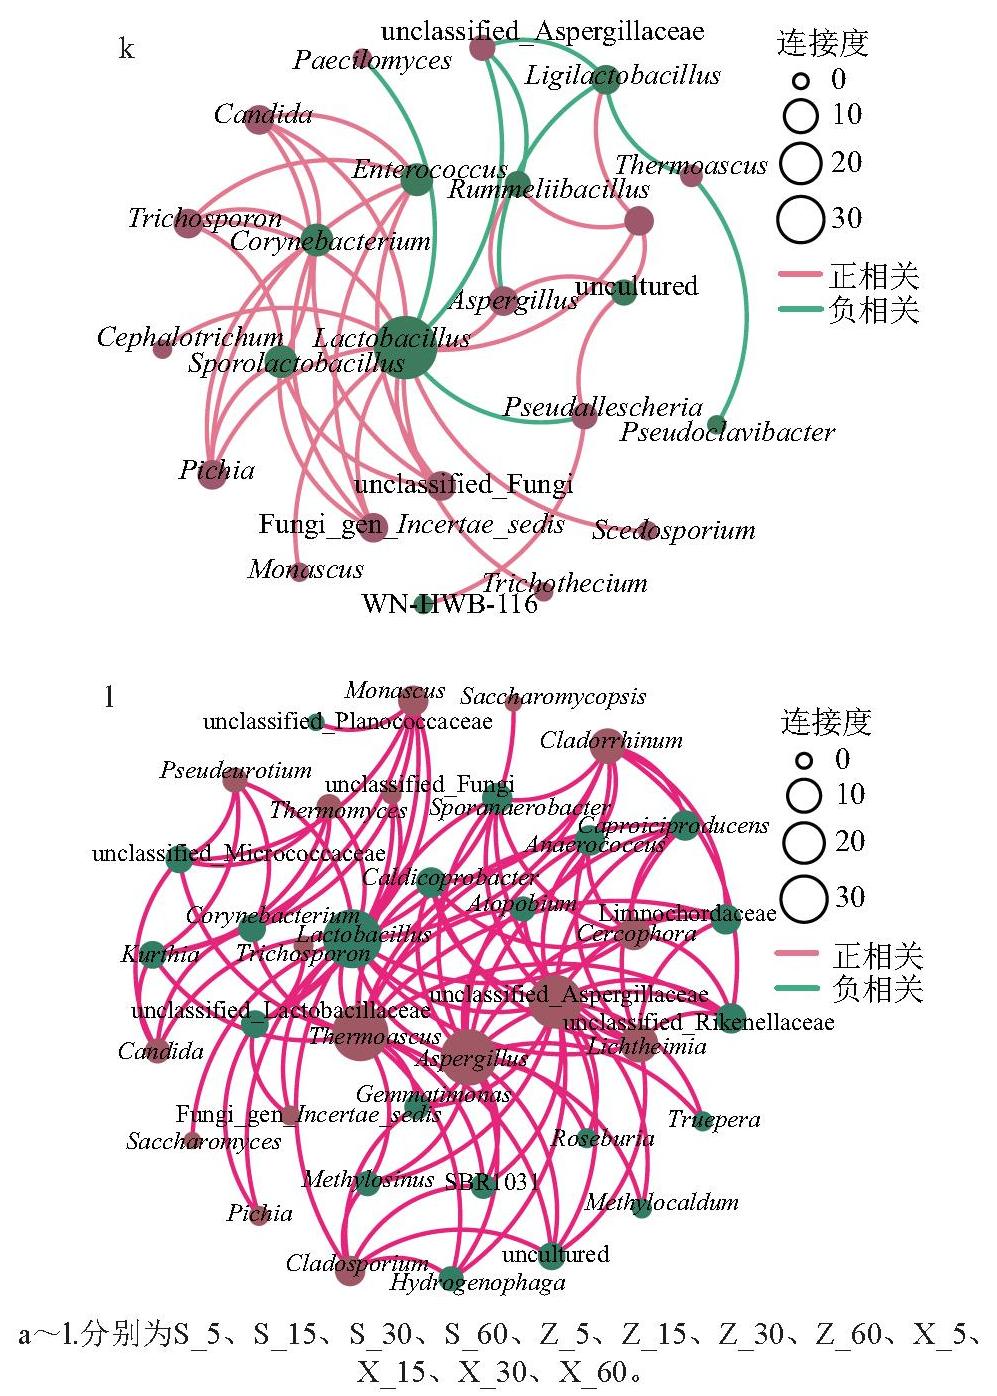
图5 属水平下浓香型白酒酿造过程中各层次酒醅微生物细菌及真菌共现网络图
Fig.5 Co-occurrence network diagrams of bacterial and fungal microbiota in fermented grains from different layers at genus level during strong-flavor Baijiu brewing
2.4 浓香型白酒酿造过程中各层次酒醅微生物群落功能预测
使用PICRUSt2软件分别对16S rRNA和ITS测序结果进行微生物群落功能预测,通过MetaCyc数据库获取代谢通路丰度,对预测丰度进行每百万计数归一化,使用MinPath[41]推断代谢通路,进而获得各样本中代谢通路的丰度数据。基于平均丰度排序选取丰度排名前35条代谢途径。
酒醅微生物群落的一级生物学功能主要分为生物合成、降解/利用/同化、前体代谢产物和能量产生。由图6a可知,酒醅细菌群落一级生物学功能以生物合成为主,细菌菌群丰度最高的代谢途径为Kdo2-脂质A生物合成超通路。磷脂酶代谢通路、丙酮酸发酵产丙酸I型通路、Kdo2-脂质A生物合成超通路等代谢途径的丰度随发酵时间延长而逐渐升高,发酵后期其在中、下层酒醅的丰度高于上层。由图6b可知,真菌菌群的一级生物学功能也以生物合成为主。丰度最高的代谢途径为有氧呼吸I和有氧呼吸II,酒醅微生物在酿造过程中的主要代谢途径较为一致,表明微生物的主要代谢功能保持相对稳定。真菌丰度较高的代谢途径:棕榈酸生物合成途径I在发酵15 d中层酒醅中的丰度明显高于上、下层。发酵30 d,酒醅真菌的腺苷核糖核苷酸从头生物合成、D-肌醇-(1,4,5)-三磷酸生物合成、腺苷核苷酸从头生物合成超通路I和鸟苷核苷酸降解途径II等代谢途径的丰度在不同层次酒醅中存在一定差异。
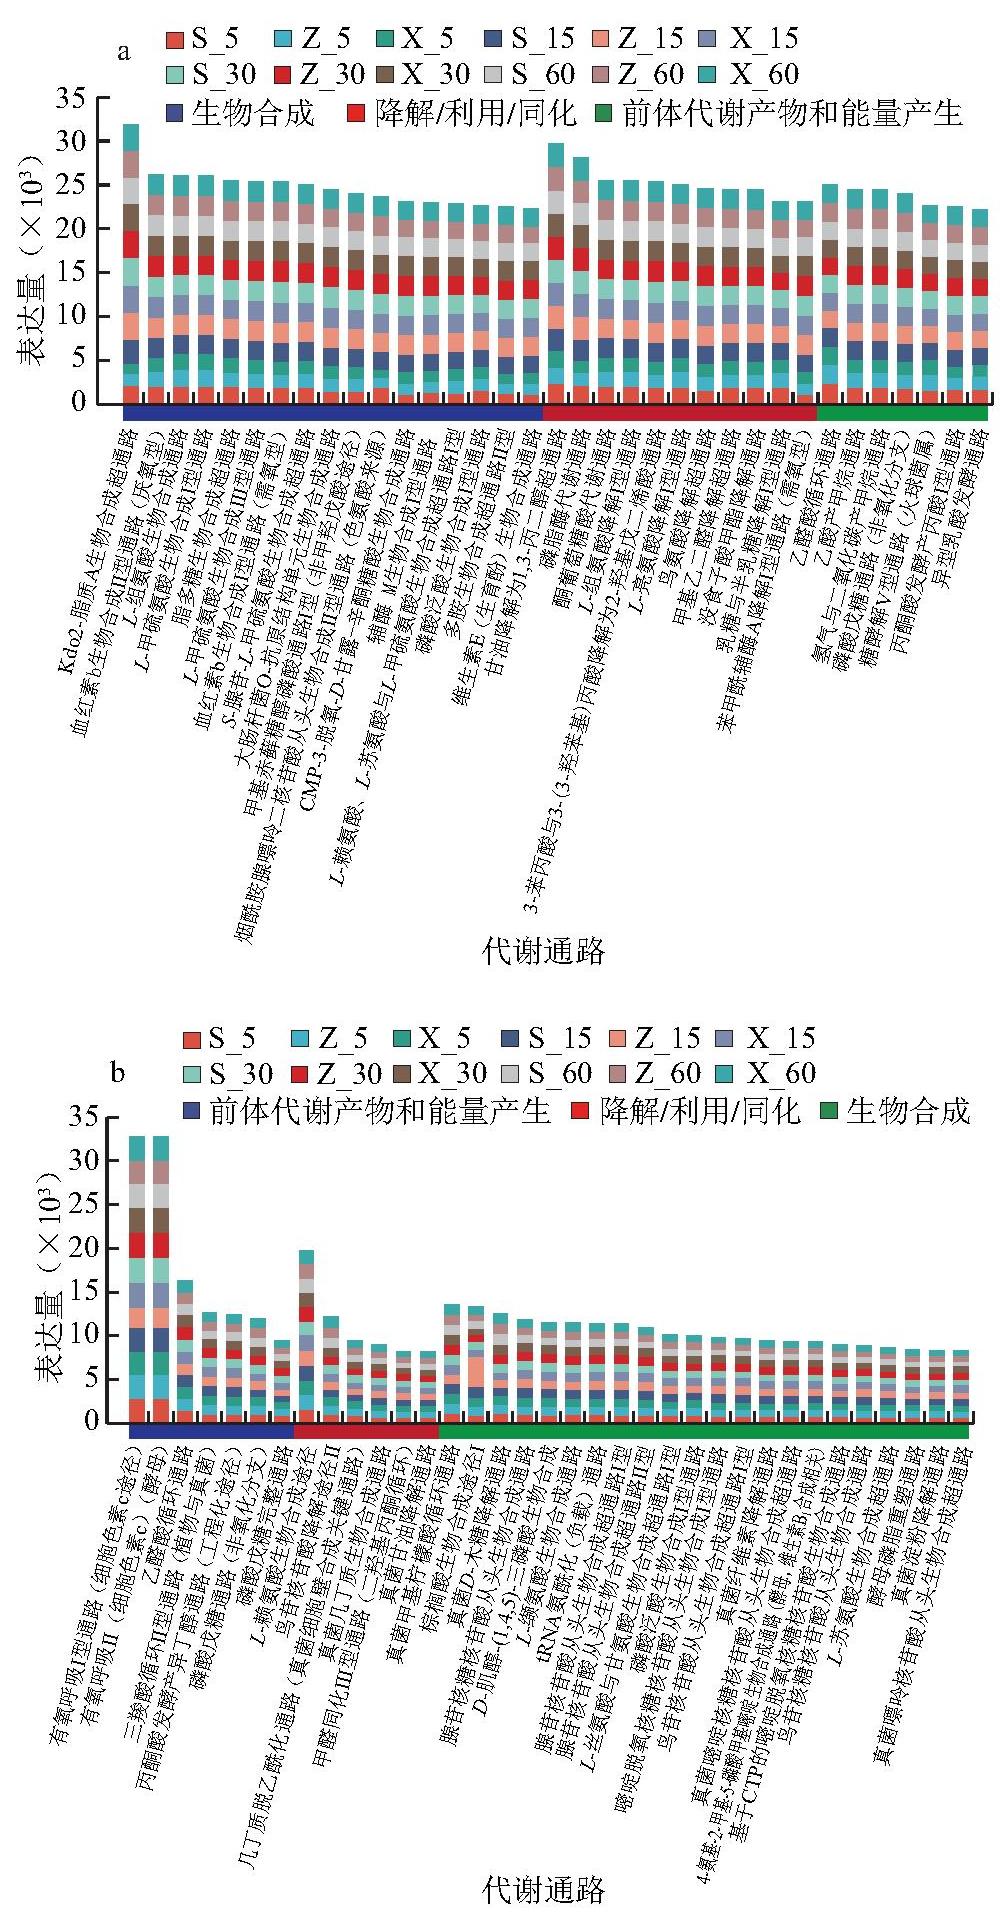
图6 各层次酒醅酿造过程中细菌(a)与真菌(b)群落的 主要功能预测
Fig.6 Major functional prediction of bacterial (a) and fungal (b)communities in fermented grains of different layers in the brewing process
综上,发酵中、后期,中、下层酒醅中与能量代谢、底物降解及风味前体物质合成相关的代谢通路活性显著高于上层,与该区域形成的紧密互营共生网络特征高度契合,直观体现了不同层酒醅的差异及其对微生物代谢的塑造作用。发酵中、后期,中、下层酒醅菌群能量代谢通路仍维持较高表达水平,这可能与其形成的更紧密的微生物互营共生网络有关,有助于其微生物群落在高酸度、高乙醇和低养分胁迫环境下稳定发挥代谢功能。
3 结 论
本研究对上、中、下层酒醅发酵过程中理化指标及微生物菌群进行分析,结果表明,下层酒醅水分、酸度较高,乙醇体积分数及还原糖含量与上、中层差异不大;不同酒醅共检出13个优势细菌属(相对丰度>1%)、16个优势真菌属,细菌群落层间差异在发酵5 d最为显著,15 d后Lactobacillus成为不同层次酒醅绝对优势菌属,而真菌群落层间差异在发酵30 d较为显著,60 d各层群落结构整体趋同;通过随机森林算法明确了不同层次酒醅在发酵过程中的差异菌群,发酵5 d上层酒醅以Ligilactobacillus、Weissella、Saccharomyces为标志性差异物种,下层为Acetobacter;发酵15 d上层酒醅标志性差异物种为Acetobacter、中层为Monascus;发酵30 d上层酒醅标志性差异物种为Thermoascus与Saccharomyces,中、下层为Trichosporon;细菌-真菌跨域共现网络分析证实,中层酒醅微生物生态互作网络在发酵5 d时较上、下层更为复杂,发酵30 d后,Lactobacillus成为上、中、下层酒醅微生物的核心枢纽,网络信息和物质传递效率提高;功能预测结果显示,酒醅微生物代谢功能以生物合成为主,全程保持相对稳定,发酵中、后期,中、下层酒醅中与能量代谢、底物降解及风味前体物质合成相关的代谢通路活性显著高于上层,与该区域形成的紧密互营共生网络特征高度契合。本研究揭示了浓香型白酒不同层次酒醅酿造过程中微生物群落的演替规律及其共现网络动态变化,但其互作具体的机制仍需进一步验证。
[1] Li Hui, Huang Jun, Liu Xinping, et al. Characterization of interphase microbial community in Luzhou-flavored liquor manufacturing pits of various ages by polyphasic detection methods[J]. Journal of Microbiology and Biotechnology, 2017, 27(1): 130-140. DOI:10.4014/jmb.1605.05036.
[2] Zhou Wen, Xia Yu, Zhao Yajiao, et al. Study on the effect of key genes ME2 and adhE during Luzhou-flavor Baijiu brewing[J]. Foods, 2022,11(5): 700. DOI:10.3390/foods11050700.
[3] 刘瑶, 田新惠, 马超, 等. 基于PacBio测序解析浓香型白酒酒醅发酵过程中细菌群落及其代谢特性变化[J]. 中国酿造, 2025, 44(1): 80-84. DOI:10.11882/j.issn.0254-5071.2025.01.012.
[4] 宋建阳, 梁莉莹, 岑定运, 等. 浓香型白酒发酵过程中酒醅微生物群落结构解析及其与风味物质的相关性[J]. 食品研究与开发, 2023,44(14): 86-92. DOI:10.12161/j.issn.1005-6521.2023.14.013.
[5] 王雪山, 杜海, 徐岩. 清香型白酒发酵过程中微生物种群空间分布[J]. 食品与发酵工业, 2018, 44(9): 1-8. DOI:10.13995/j.cnki.11-1802/ts.017334.
[6] 蒲领平. 浓香型白酒酒醅发酵时空差异性研究[D]. 宜宾: 四川轻化工大学, 2022. DOI:10.27703/d.cnki.gsclg.2022.000008.
[7] 胡晓龙, 王康丽, 余苗, 等. 浓香型酒醅微生物菌群演替规律及其空间异质性[J]. 食品与发酵工业, 2020, 46(10): 66-73. DOI:10.13995/j.cnki.11-1802/ts.023321.
[8] 敖灵, 梅军兰, 郎召伟, 等. 泸型酒酿造过程中各层酒醅挥发性物质变化规律[J]. 中国酿造, 2022, 41(5): 28-33. DOI:10.11882/j.issn.0254-5071.2022.05.006.
[9] 余松柏, 赵兴蓉, 邵燕, 等. 浓香型白酒酒醅发酵过程中30种有机酸空间与时间的分布规律[J]. 食品与发酵工业, 2024, 50(14): 297-304. DOI:10.13995/j.cnki.11-1802/ts.037022.
[10] 王轩, 张鲲, 秦辉, 等. 浓香型白酒窖内不同空间位置原酒风味物质初步分析[J]. 中国酿造, 2023, 42(11): 67-72. DOI:10.11882/j.issn.0254-5071.2023.11.011.
[11] 田瑞杰, 张勇, 冯大鸿, 等. 基于宏转录组学的浓香型白酒酒醅活性微生物群落空间异质性研究[J]. 轻工学报, 2022, 37(1): 1-11.DOI:10.12187/2022.01.001.
[12] 文悦, 张宿义, 宋攀, 等. 浓香型白酒酒醅发酵过程中微生物群落阶段性演替规律及形成机理[J]. 食品科学, 2025, 46(19): 144-157.DOI:10.7506/spkx1002-6630-20250417-141.
[13] 高俊杰. 浓香型酒醅发酵过程中挥发性风味物质及细菌菌群结构的动态变化研究[D]. 济南: 齐鲁工业大学, 2023. DOI:10.27278/d.cnki.gsdqc.2023.000212.
[14] 泸州老窖集团有限责任公司. 泸型酒技艺大全[M]. 北京: 中国轻工业出版社, 2011: 113-117.
[15] Callahan B J, McMurdie P J, Rosen M J, et al. DADA2: highresolution sample inference from Illumina amplicon data[J]. Nature Methods, 2016, 13(7): 581-583. DOI:10.1038/nmeth.3869.
[16] Ratzke C, Barrere J, Gore J. Strength of species interactions determines biodiversity and stability in microbial communities[J]. Nature Ecology &Evolution, 2020, 4(3): 376-383. DOI:10.1038/s41559-020-1099-4.
[17] 黄孟阳, 蔡小波, 秦辉, 等. 不同窖龄浓香型白酒发酵过程中酒醅理化指标及微生物群落结构分析[J]. 中国酿造, 2025, 44(8): 49-54. DOI:10.11882/j.issn.0254-5071.2025.08.008.
[18] 曾波, 饶家权, 邹永芳, 等. 浓香型白酒酒醅发酵过程中微生物群落结构演替及其与理化指标相关性[J]. 食品科学, 2024, 45(7): 111-118. DOI:10.7506/spkx1002-6630-20230804-030.
[19] 韩韶. 清香型酒醅发酵过程理化性质变化规律研究[J]. 中国食品工业, 2024(10): 104-106.
[20] Chen Liangqiang, Qin Xing, Wang Guozheng, et al. Oxygen influences spatial heterogeneity and microbial succession dynamics during Baijiu stacking process[J]. Bioresource Technology, 2024, 403: 130854. DOI:10.1016/j.biortech.2024.130854.
[21] 王乐, 魏功, 郭逸臻, 等. 北方浓香型白酒发酵过程中不同空间层次糟醅理化指标及风味物质的变化[J]. 中国酿造, 2024, 43(3): 63-71. DOI:10.11882/j.issn.0254-5071.2024.03.010.
[22] 尹倩倩. 封窖方式对泸型酒酿造中不同层酒醅品质差异的影响研究[D]. 无锡: 江南大学, 2022. DOI:10.27169/d.cnki.gwqgu.2022.000423.
[23] Pitiwittayakul N, Yukphan P, Sintuprapa W, et al. Identification of acetic acid bacteria isolated in Thailand and assigned to the genus Acetobacter by groEL gene sequence analysis[J]. Annals of Microbiology, 2015, 65(3): 1557-1564. DOI:10.1007/s13213-014-0994-9.
[24] Zhang Jing, Zhao Minhui, Chen Jing, et al. The improvement of Hovenia acerba-sorghum co-fermentation in terms of microbial diversity, functional ingredients, and volatile flavor components during Baijiu fermentation[J]. Frontiers in Microbiology, 2024, 14: 1299917. DOI:10.3389/fmicb.2023.1299917.
[25] 刘小改, 马美荣, 周林艳, 等. 高产乙酸乙酯酵母菌筛选及固态发酵应用研究[J]. 中国酿造, 2020, 39(10): 79-83. DOI:10.11882/j.issn.0254-5071.2020.10.016.
[26] 姚翠萍, 王和玉, 林琳, 等. 一株膜璞毕赤酵母的生理特性及其代谢产物研究[J]. 酿酒科技, 2011(7): 57-59.
[27] 吴树坤, 谢军, 卫春会, 等. 四川不同地区浓香型大曲微生物群落结构比较[J]. 食品科学, 2019, 40(14): 144-152. DOI:10.7506/spkx1002-6630-20180725-315.
[28] 张丽杰, 吴玉梅, 洪琦, 等. 高温大曲主体丝状真菌在原位条件的生长及产香功能特性研究[J]. 食品与发酵工业, 2026, 52(5): 165-173.DOI:10.13995/j.cnki.11-1802/ts.043039.
[29] 鲁彤, 赵微, 崔美林, 等. 利用分子对接分析橙色嗜热子囊菌QH-1酯酶的酯化特性[J]. 中国酿造, 2025, 44(1): 85-91. DOI:10.11882/j.issn.0254-5071.2025.01.013.
[30] 杨雄振, 郭玉杰, 涂涛, 等. 嗜热子囊菌Thermoascus crustaceus JCM12803来源的低温α-淀粉酶功能验证及其适冷机制分析[J].微生物学报, 2018, 58(12): 2161-2173. DOI:10.13343/j.cnki.wsxb.20180037.
[31] 符长彪, 明红梅, 张宿义, 等. 机械化与传统酿造方式下浓香型白酒酿造环境微生物群落结构对比分析[J]. 食品与发酵工业, 2023,49(4): 145-153. DOI:10.13995/j.cnki.11-1802/ts.031691.
[32] 王康丽. 基于宏转录组学的浓香型酒醅微生物群落多样性及代谢特征研究[D]. 郑州: 郑州轻工业大学, 2021. DOI:10.27469/d.cnki.gzzqc.2021.000030.
[33] 马世源, 李子健, 罗惠波, 等. 酿酒酵母对浓香型白酒酒醅微生物群落结构及功能的影响[J]. 中国食品学报, 2024, 24(2): 71-82.DOI:10.16429/j.1009-7848.2024.02.007.
[34] Zhang Hongxia, Wang Li, Wang Heyu, et al. Effects of initial temperature on microbial community succession rate and volatile flavors during Baijiu fermentation process[J]. Food Research International, 2021, 141: 109887. DOI:10.1016/j.foodres.2020.109887.
[35] 刘小刚. 浓香白酒糟长发酵期代谢机理解析及抗氧化醇溶肽的制备与鉴定[D]. 无锡: 江南大学, 2023. DOI:10.27169/d.cnki.gwqgu.2023.000107.
[36] Eberly J O, Bourgault M, Dafo J M, et al. Soil bacterial community response to cover crop introduction in a wheat-based dryland cropping system[J]. Frontiers in Sustainable Food Systems, 2022, 6: 948220.DOI:10.3389/fsufs.2022.948220.
[37] Wang Hualong, Chen Feng, Zhang Chuanlun, et al. Estuarine gradients dictate spatiotemporal variations of microbiome networks in the Chesapeake Bay[J]. Environmental Microbiome, 2021, 16(1): 22.DOI:10.1186/s40793-021-00392-z.
[38] Banerjee S, Schlaeppi K, Van Der Heijden M G A. Keystone taxa as drivers of microbiome structure and functioning[J]. Nature Reviews Microbiology, 2018, 16(9): 567-576. DOI:10.1038/s41579-018-0024-1.
[39] 胡晓龙, 田瑞杰, 李保坤, 等. 基于宏转录组学技术解析浓香型酒醅活性微生物群落结构及功能变化特征[J]. 食品科学, 2022, 43(10):124-132. DOI:10.7506/spkx1002-6630-20210324-293.
[40] Padhi P, Worth C, Zenitsky G, et al. Mechanistic insights into gut microbiome dysbiosis-mediated neuroimmune dysregulation and protein misfolding and clearance in the pathogenesis of chronic neurodegenerative disorders[J]. Frontiers in Neuroscience, 2022, 16:836605. DOI:10.3389/fnins.2022.836605.
[41] Ye Yuzhen, Doak T G. A parsimony approach to biological pathway reconstruction/inference for genomes and metagenomes[J]. PLoS Computational Biology, 2009, 5(8): e1000465. DOI:10.1371/journal.pcbi.1000465.