传统酿造类发酵食品是功能微生物的天然资源宝库,酒类、果醋、发酵果蔬饮品等产品均依靠酵母菌完成核心物质转化,菌株经长期自然驯化形成独特代谢能力与环境适应性,是酿造行业菌种开发与工艺创新的重要资源[1]。酵母菌作为酿造发酵过程中的核心功能菌,可通过糖代谢等物质转化过程生成酯类、高级醇等关键挥发性风味物质,直接决定发酵饮品香气层次与感官品质;其中高级醇生成量具有明显菌株特异性,适度积累可丰富酒体风味,过量生成则易造成风味劣变,因此筛选适配特定酿造体系的优良酵母菌株是提升发酵果酒品质的核心举措[2-3]。较于市售通用商业酵母,源自传统自然发酵体系的本土野生酵母更贴合原料发酵环境,代谢调控能力更强,在特色风味酿造产品研发中具备显著应用优势[4]。
刺梨(Rosa roxburghii Tratt.)果实富含抗坏血酸、多酚、超氧化物歧化酶等多种天然活性物质,兼具良好营养价值与生理活性。将刺梨原料发酵制成果酒,不仅能够有效弱化鲜果酸涩口感,还可最大限度保留其功能活性成分[5]。刺梨原汁有机酸含量高,发酵基质整体pH值为2.5~3.5,属于典型强酸性酿造环境;刺梨果酒发酵生产多选用通用商业酵母,该类菌株对强酸性基质适应性较差,无法定向调控风味物质合成,难以满足高品质特色刺梨果酒的工业化酿造需求。
贵州威宁火腿拥有数百年自然发酵历史,依托高海拔独特气候形成低温、微酸、多胁迫的天然发酵环境,为特色功能微生物富集驯化创造了优越条件[6-7]。已有研究从威宁火腿发酵体系中筛选鉴定出多株优势酵母与细菌,证实该体系内微生物普遍具备耐低温、耐酸、耐亚硝酸盐等优良抗逆特性[8-9],其耐酸生理特征与刺梨强酸性发酵基质高度契合。目前国内针对威宁火腿专属微生物资源的系统性挖掘仍较为匮乏,仅针对盘县火腿、宣威火腿等同类高原干腌火腿开展过微生物群落与功能菌株筛选研究[10-12],也进一步证实传统高原发酵肉制品蕴藏大量未开发的特色酵母资源,是选育刺梨专用酿造酵母的优质天然菌种来源。
本研究以贵州威宁传统发酵火腿为分离材料,从中分离筛选酵母菌株,结合形态学观察与分子生物学技术对菌株进行鉴定,对筛选菌株的生长特性、发酵胁迫耐受性及刺梨汁发酵产高级醇能力进行分析,以期为特色刺梨果酒酿造提供优良菌种资源,为西南地域特色果蔬发酵饮品的研发与产业化应用提供理论依据与技术支撑。
1 材料与方法
1.1 菌株、材料与试剂
商业酿酒酵母(Saccharomyces cerevisiae)Zymaflore X16 法国LAFFORT公司。
发酵火腿由贵州徐福绍芬火腿食品有限公司提供,原料为威宁本地优良品种‘乌金猪’后腿,经传统工艺腌制、发酵、晾挂制成;刺梨汁由贵州刺力王生物科技有限公司提供,原料为贵州本地主栽品种‘贵农5号’刺梨果实,经压榨、灭菌制成。
异戊醇、异丁醇、叶醇、糠醇、3-甲硫基丙醇、2-苯乙醇等高级醇标准品(均为色谱纯) 美国Sigma-Aldrich公司;其他试剂均为国产分析纯。
酵母浸出粉胨葡萄糖(yeast extract peptone dextrose,YPD)液体培养基:酵母提取物10 g、胰蛋白胨20 g、葡萄糖20 g、蒸馏水1 000 mL。YPD固体培养基在此基础上添加琼脂15 g。
麦芽汁培养基:麦芽提取物20 g、胰蛋白胨5 g、琼脂15 g、蒸馏水1 000 mL。
马铃薯葡萄糖琼脂(potato dextrose agar,PDA)培养基:取200 g去皮马铃薯,切小块,煮沸30 min,纱布过滤,滤液补足至1 L制成马铃薯浸出液,加葡萄糖20 g、琼脂15 g、蒸馏水1 000 mL。
WLN固体培养基:酵母提取物4 g/L、蛋白5 g/L、葡萄糖50 g/L、琼脂20 g/L、储存液A(磷酸二氢钾13.75 g/L、氯化钾10.625 g/L、氯化钙3.125 g/L、MgSO4·7H2O 3.125 g/L,4 ℃保存)40 mL、储存液B(氯化铁2.5 g/L、硫酸锰2.5 g/L,4 ℃保存)1 mL、储存液C(0.44 g溴甲酚绿溶于10 mL无菌蒸馏水和10 mL 95%乙醇中,4 ℃保存)1 mL、pH值自然、琼脂15~20 g/L。
LB液体培养基:胰蛋白胨10 g、酵母提取物5 g、NaCl 10 g、蒸馏水1 000 mL。
2,3,5-氯化三苯基四氮唑(2,3,5-triphenyltetrazolium chloride,TTC)上层培养基:TTC 0.5 g、葡萄糖5 g、琼脂15 g、蒸馏水1 000 mL;TTC下层固体培养基:葡萄糖10 g、胰蛋白胨2 g、KH2PO4 1 g、酵母提取物1.5 g、 MgSO4·7H2O 0.4 g、琼脂15 g、蒸馏水1 000 mL, pH 5.5~5.7。
以上培养基中TTC过滤灭菌,其他均于121 ℃高压蒸汽灭菌20 min。
1.2 仪器与设备
SPX-50恒温培养箱 绍兴市尚诚仪器制造有限责任公司;THD-200D恒温摇床、KLCZ-1220A超净工作台 北京亚泰科隆仪器技术有限公司;CX40光学显微镜 宁波舜宇仪器有限公司;T100聚合酶链式反应(polymerase chain reaction,PCR)仪 美国Bio-Rad公司;DYY-6C电泳仪 北京六一生物科技有限公司;HBS-1096A酶标仪 南京德铁实验设备有限公司;TRACE-1310气相色谱(gas chromatography,GC)仪 美国Thermo Fisher Scientific公司;TQ8040 NX气相色谱-质谱(gas chromatography-mass spectrometry, GC-MS)仪 日本岛津公司。
1.3 方法
1.3.1 菌株分离纯化与筛选
1.3.1.1 富集与分离纯化
分别采集威宁火腿表层及内部1.0~2.0 cm处组织各5 g,充分研磨后,在无菌条件下加入YPD液体培养基,于28 ℃、200 r/min恒温振荡富集培养1 d。将富集菌液进行10倍梯度稀释,稀释至10-4,取适量稀释菌液均匀涂布于YPD固体培养基平板,28 ℃恒温培养24 h[12]。
1.3.1.2 初筛
将分离纯化获得的单菌落接种于TTC下层固体培养基,28 ℃恒温培养24 h,倒入TTC上层培养基,避光继续培养2~3 d。培养基呈现红色代表菌株产乙醇能力较强,据此筛选显色程度较深的目标菌株[13]。
1.3.1.3 复筛
将初筛获得的菌株接种于YPD固体培养基,观察并记录菌落大小、形态、边缘规整度、表面质地及色泽等表观特征。结合发酵感官嗅闻法进一步复筛,筛选产香浓郁、风味表现优良的菌株[14]。
1.3.2 筛选菌株鉴定
1.3.2.1 形态学观察
将纯化菌株分别划线接种于YPD、PDA、麦芽汁、WLN及TTC固体培养基,30 ℃恒温培养24 h,观察并记录菌落形态特征与细胞显微结构。其中,YPD为酵母基础培养基,用于观察标准生长状态下的菌落与细胞形态;PDA用于观察菌株在真菌通用营养条件下的形态差异;麦芽汁培养基模拟酿造基质,反映菌株在发酵相关环境中的生长特征;WLN为酵母选择性鉴定培养基,辅助区分菌株种属;TTC为活性显色培养基,可同步观察菌落形态与代谢活性。
1.3.2.2 分子生物学鉴定
提取DNA,采用通用引物ITS1、ITS4,NL1、NL4[15]分别扩增菌株的ITS、26S rDNA序列。PCR扩增体系(25 μL):2×Taq PCR Master Mix 12.5 μL、10 μmol/L 正反向引物各2 μL、DNA模板2 μL,ddH2O补足至25 μL。PCR扩增条件均为:95 ℃预变性5 min;95 ℃变性30 s、55 ℃退火1 min、72 ℃延伸40 s,28个循环;72 ℃终延伸10 min。PCR产物经琼脂糖凝胶电泳检验合格后送至生工生物工程(上海)股份有限公司测序。测序结果利用NCBI平台开展BLAST序列比对,借助MEGA X 软件采用邻接法构建系统发育树[16]。
1.3.3 筛选菌株生长曲线测定
将筛选菌株活化培养至对数生长期,以商业菌株X16为对照,控制菌液OD600 nm值为1.0,按1%(V/V)接种量转接至100 mL YPD液体培养基,分别于18、24、30 ℃恒温摇床振荡培养72 h。每隔6 h定时取样,将菌液与0.1%亚甲基蓝染液混匀,室温避光染色5 min;将染色后菌液滴加至血球计数板,于光学显微镜下统计活细胞数量。以培养时间为横坐标、活细胞密度(viable cell density,VCD)为纵坐标绘制菌株生长曲线。
1.3.4 筛选菌株耐受性测定
将菌株活化培养至对数生长期(OD600 nm值为1.0,对应菌液浓度约为108 CFU/mL),以商业菌株X16为对照,分别考察乙醇体积分数(0%、3%、7%、11%、15%)[17]、异戊醇体积分数(0%、3%、9%、15%、21%)、初始pH值(2.8、3.2、3.6、4.0、4.4、5.3(自然pH值),采用酒石酸调节)、NaCl质量浓度(0、30、60、90、120 g/L)[18]、NaNO2质量浓度(0、50、100、150、200 mg/L)[19]、SO2质量浓度(0、50、150、250、350 mg/L),其中SO2胁迫体系采用偏重亚硫酸钾配制,目标质量浓度按SO2计,偏重亚硫酸钾与SO2的转化率为50%。
确保接种后所有培养基内菌液终浓度统一为106 CFU/mL;30 ℃、180 r/min恒温摇床培养72 h,测定菌液OD600 nm值,以此考察菌株对各胁迫条件的耐受性。
1.3.5 挥发性风味物质分析
将活化至对数生长期的酵母菌液接种至糖度为10 °Brix的无菌刺梨汁中,使发酵体系菌液终浓度为106 CFU/mL。30 ℃、200 r/min避光发酵5 d。发酵结束后蒸馏收集馏分,采用顶空固相微萃取结合GC-MS法分析挥发性风味物质。移取8 mL蒸馏液于40 ℃预热平衡5 min后,顶空吸附30 min,将萃取头置于色谱进样口,250 ℃解吸2 min。GC条件和MS条件参考李婷婷等[20]的方法。基于色谱保留时间与NIST 2023质谱库比对(匹配度≥80%)进行定性鉴定,采用峰面积归一化法计算各挥发性组分的相对含量。
1.3.6 高级醇含量分析
采用GC法测定高级醇含量[21]。选取9种高级醇标准品,以20%乙醇配制系列质量浓度梯度工作液(1、10、20、50、100、200、400 mg/L),待测。GC条件:TG-WaxMS毛细管柱(60 m×0.25 mm,0.25 μm);进样口温度250 ℃;分流比50∶1;吹扫流量5 mL/min;柱流量1 mL/min;检测器温度250 ℃;空气流量350 mL/min;氢气流量35 mL/min;尾吹流量40 mL/min。程序升温:初始温度50 ℃,保持5 min;以15 ℃/min升至120 ℃,保持5 min;再以20 ℃/min升至220 ℃,保持8 min。采用标准品比对结合保留时间定性,外标标准曲线法定量。
1.3.7 不同发酵条件对筛选菌株发酵产高级醇的影响
以200 mL刺梨汁为基础发酵体系,分别考察pH值(3、3.83、4、5、6、7)、蔗糖质量浓度(0、60、100、140、180 g/L)、接种量(103、104、105、106、107 CFU/mL)、酵母提取物添加量(0、10、20、30、40 g/L)及发酵温度(15、20、25、30、35 ℃)对菌株发酵产高级醇的影响;200 r/min发酵3 d,每组实验重复3次。发酵液经减压蒸馏、过滤后测定,基于标准曲线拟合方程计算高级醇含量。
1.4 数据处理
每个实验重复3次,结果以x±s表示,采用SPSS Statistics 27进行数据处理,采用Origin 2024、GraphPad Prism 10和TBtools-II软件绘图。
2 结果与分析
2.1 酵母菌的分离纯化及筛选
从贵州威宁传统发酵火腿样品中经富集、分离与纯化共获得7个菌株,编号为HT2401~2407。各菌株在YPD培养基上的菌落形态及TTC显色强度等基础特征如表1所示。菌株HT2407 TTC显色强度最高,还原代谢活性明显优于其他菌株,且发酵产香浓郁、特征风味突出。因此,选择该菌株进行后续分析。
表1 7菌株菌落形态及TTC显色强度
Table1 Colony morphology and 2,3,5-triphenyltetrazolium chloride staining intensity of seven yeast strains
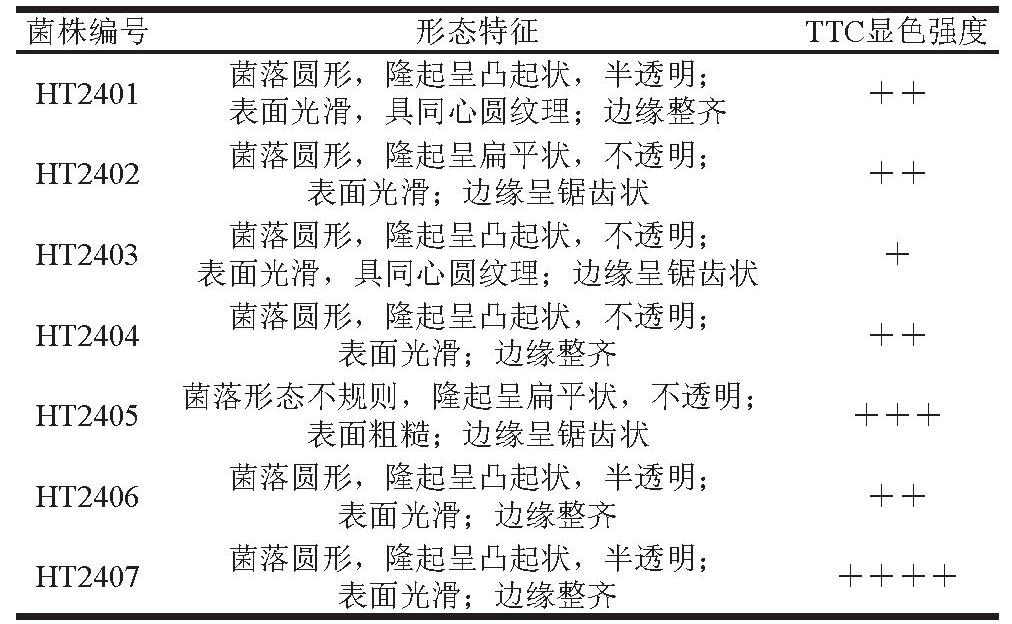
菌株编号形态特征TTC显色强度HT2401菌落圆形,隆起呈凸起状,半透明;表面光滑,具同心圆纹理;边缘整齐++HT2402菌落圆形,隆起呈扁平状,不透明;表面光滑;边缘呈锯齿状++HT2403菌落圆形,隆起呈凸起状,不透明;表面光滑,具同心圆纹理;边缘呈锯齿状+HT2404菌落圆形,隆起呈凸起状,不透明;表面光滑;边缘整齐++HT2405菌落形态不规则,隆起呈扁平状,不透明;表面粗糙;边缘呈锯齿状+++HT2406菌落圆形,隆起呈凸起状,半透明;表面光滑;边缘整齐++HT2407菌落圆形,隆起呈凸起状,半透明;表面光滑;边缘整齐++++
注:+. TTC显色程度,+越多表示颜色越深。
2.2 菌株HT2407鉴定
2.2.1 形态学观察
由图1可知,菌株HT2407在YPD培养基上呈圆形、乳白色、表面光滑饱满、边缘整齐;麦芽汁培养基上菌落略小,呈圆形、乳白色、表面光滑;在PDA培养基上呈圆形、浅黄色、隆起适中;在WLN培养基上菌落较大,呈圆形、乳黄色、表面光滑;TTC培养基上菌落呈明显红色、显色均匀,上述特征均符合酿酒酵母的典型菌落形态。在TTC平板上的深红色显色表明该菌株呼吸代谢酶活性高,具备较强的产乙醇潜力[22];显微观察显示,菌株HT2407细胞呈卵圆形,以出芽方式进行无性生殖,与酿酒酵母的细胞形态特征一致,初步判定其为酿酒酵母菌株。
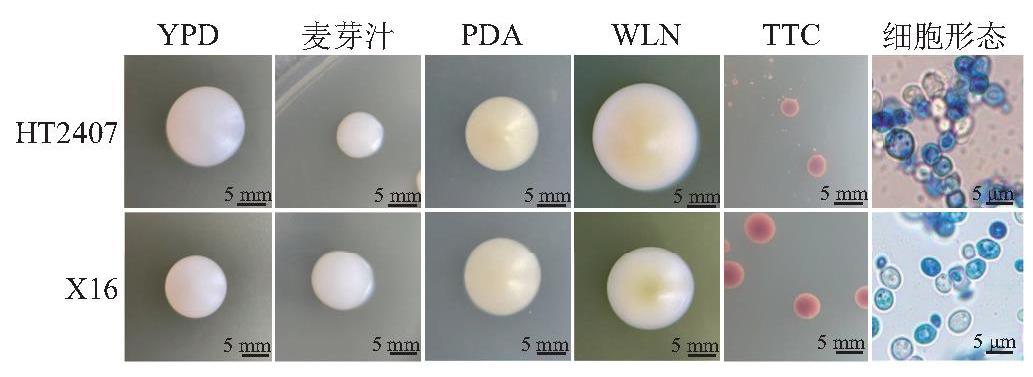
图1 菌株HT2407和X16在不同培养基中的菌落形态及显微形态
Fig.1 Colonial morphologies of strains HT2407 and X16 cultured on different media and microscopic morphologies of the two strains
2.2.2 分子生物学鉴定
由图2可知,菌株HT2407与酿酒酵母(Saccharomyces cerevisiae)聚于同一分支,序列相似性达98.73%,二者具有高度同源性,结合其形态特征及生理生化特性,将该菌株鉴定为酿酒酵母(S. cerevisiae)。
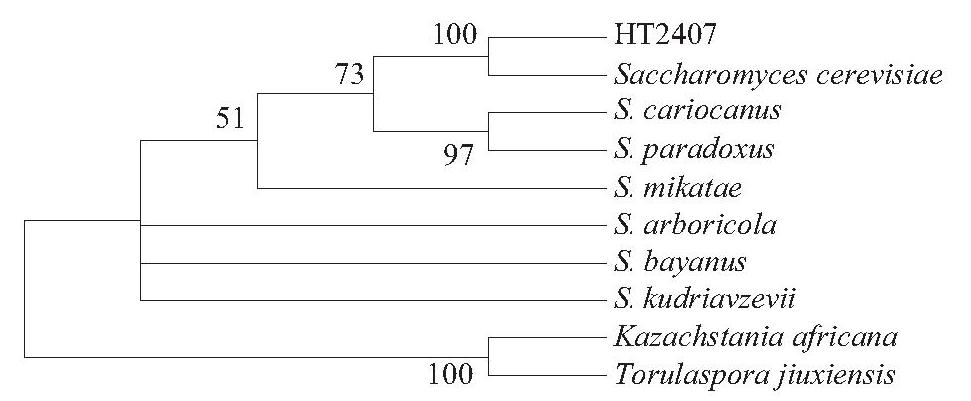
图2 基于ITS和26S rDNA串联序列构建的菌株HT2407系统发育树
Fig.2 Phylogenetic tree of strain HT2407 constructed based on concatenated ITS and 26S rDNA sequences
2.3 酿酒酵母HT2407在不同温度下的生长曲线
由图3可知,2株菌在18、24、30 ℃条件下均呈“增殖-达峰-衰减”的生长趋势。在18 ℃条件下,菌株HT2407的VCD于42 h达最高值(14.50×10⁴个/mL); 在24 ℃条件下,于24 h达最高值(14.02×10⁴个/mL); 在30 ℃条件下,于18 h达最高值(12.54×10⁴个/mL)。受高温导致生长周期缩短的影响,30 ℃条件下菌株监测至54 h时已完成完整生长周期,因此未继续延长至72 h。综上,菌株HT2407在18 ℃低温下生长性能优于商业酵母菌株X16,具备较好的低温发酵性能;24、30 ℃条件下,其峰值略低于菌株X16,但仍能维持较高的VCD,具有一定的温度适应性。
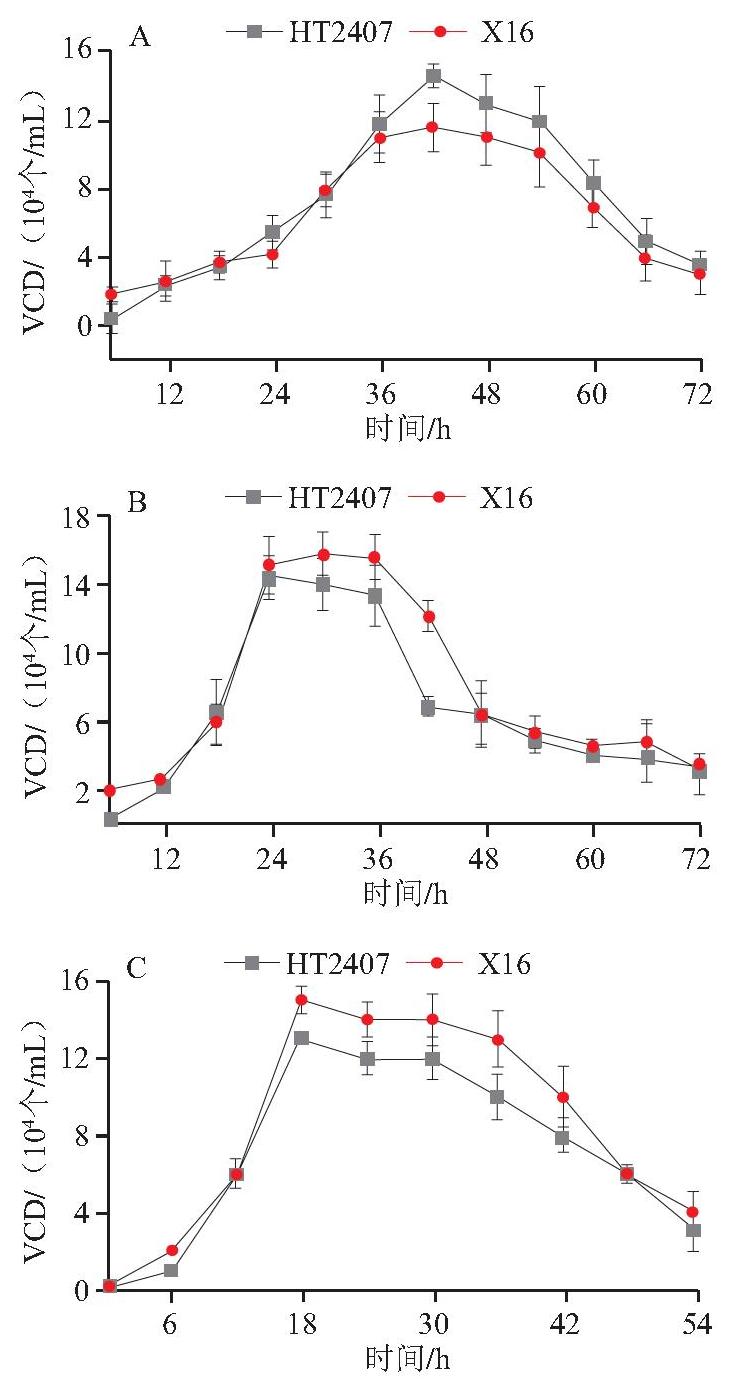
图3 菌株HT2407和X16在18(A)、24 ℃(B)及30 ℃(C)的VCD曲线
Fig.3 VCD curves of strains HT2407 and X16 at 18 (A), 24 (B) and 30 °C (C)
2.4 菌株HT2407的耐受性
由图4A可知,当NaNO2质量浓度为0~200 mg/L,菌株HT2407的OD600 nm值呈先升高后趋于稳定的趋势,OD600 nm值维持在1.2~1.5之间,与对照菌株X16无显著差异(P>0.05),在150~200 mg/L条件下,OD600 nm值仍保持在1.4。因此,其可耐受NaNO2质量浓度为200 mg/L。由图4B可知,当NaCl质量浓度为0~120 g/L,菌株HT2407的OD600 nm值呈显著下降趋势,NaCl质量浓度< 30 g/L时,OD600 nm值>1.0,与对照菌株X16存在显著差异(P<0.05),NaCl质量浓度≥60 g/L条件下,OD600 nm值降至0.6以下。因此,其可耐受NaCl质量浓度为30 g/L;由图4C可知,当异戊醇体积分数升至3%时,菌株HT2407的OD600 nm值急剧下降,异戊醇体积分数≥3%时,OD600 nm值趋于稳定,降至0.2以下。因此,其可耐受异戊醇体积分数为3%。由图4D可知,当乙醇体积分数为0%~7%时,OD600 nm值维持在1.3~1.4之间,与对照菌株X16差异不大,当乙醇体积分数升高至11%,菌株HT2407的OD600 nm值急剧下降,当乙醇体积分数≥11%,OD600 nm值稳定于0.2以下。因此,其可耐受乙醇体积分数为7%。由图4E可知,当SO2质量浓度为0~350 mg/L时,菌株HT2407的OD600 nm值呈小幅下降趋势,但OD600 nm值始终高于1.2,当SO2质量浓度为350 mg/L,OD600 nm值仍保持1.25。因此,其可耐受SO2质量浓度为350 mg/L。由图4F可知,当初始pH值在2.8~5.3范围内增加时,OD600 nm值缓慢上升,维持在1.1以上,当初始pH 2.8时,菌株HT2407的OD600 nm值最低,为1.1。因此,其可耐受初始pH值为2.8。由图4G可知,当葡萄糖质量浓度为20~400 g/L,菌株HT2407的OD600 nm值呈先升高后下降的趋势,稳定在1.3~1.8之间,当葡萄糖质量浓度为400 g/L,OD600 nm值为1.7。因此,其可耐受葡萄糖质量浓度为400 g/L。
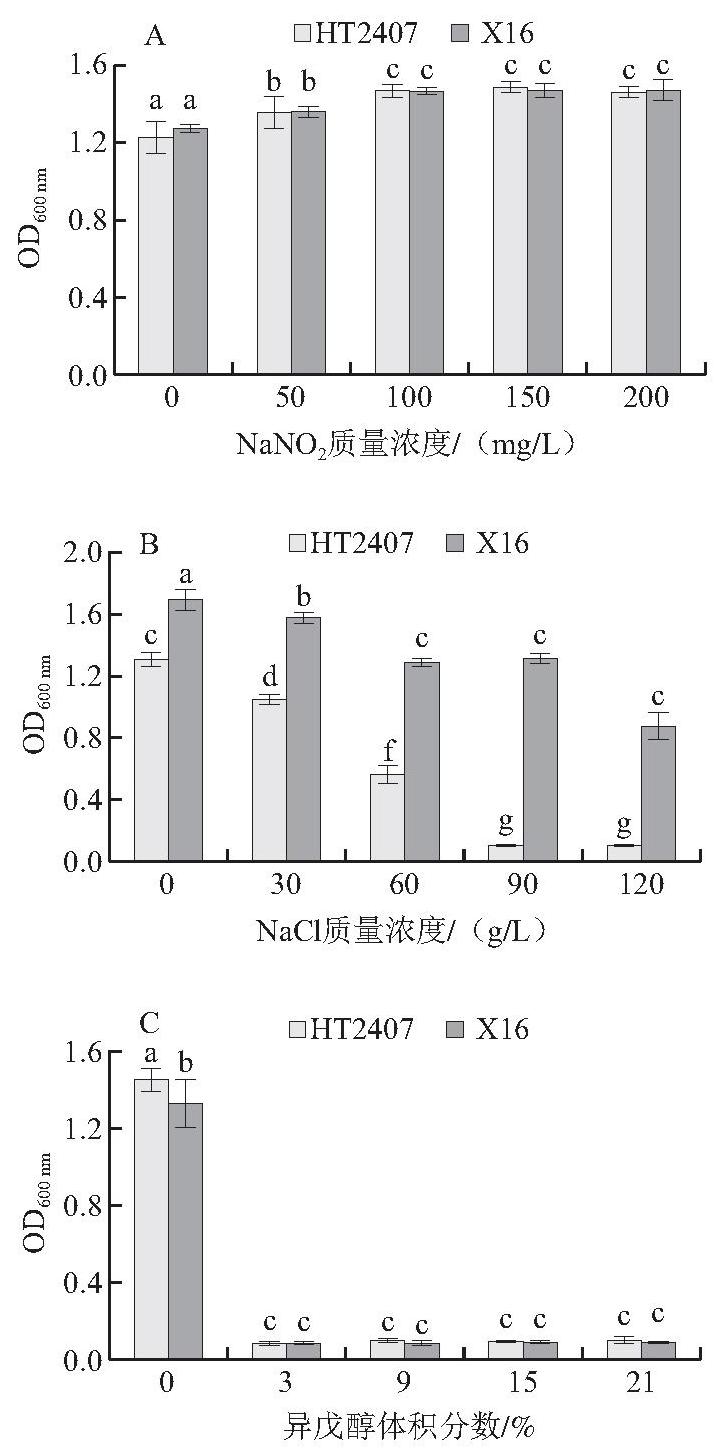
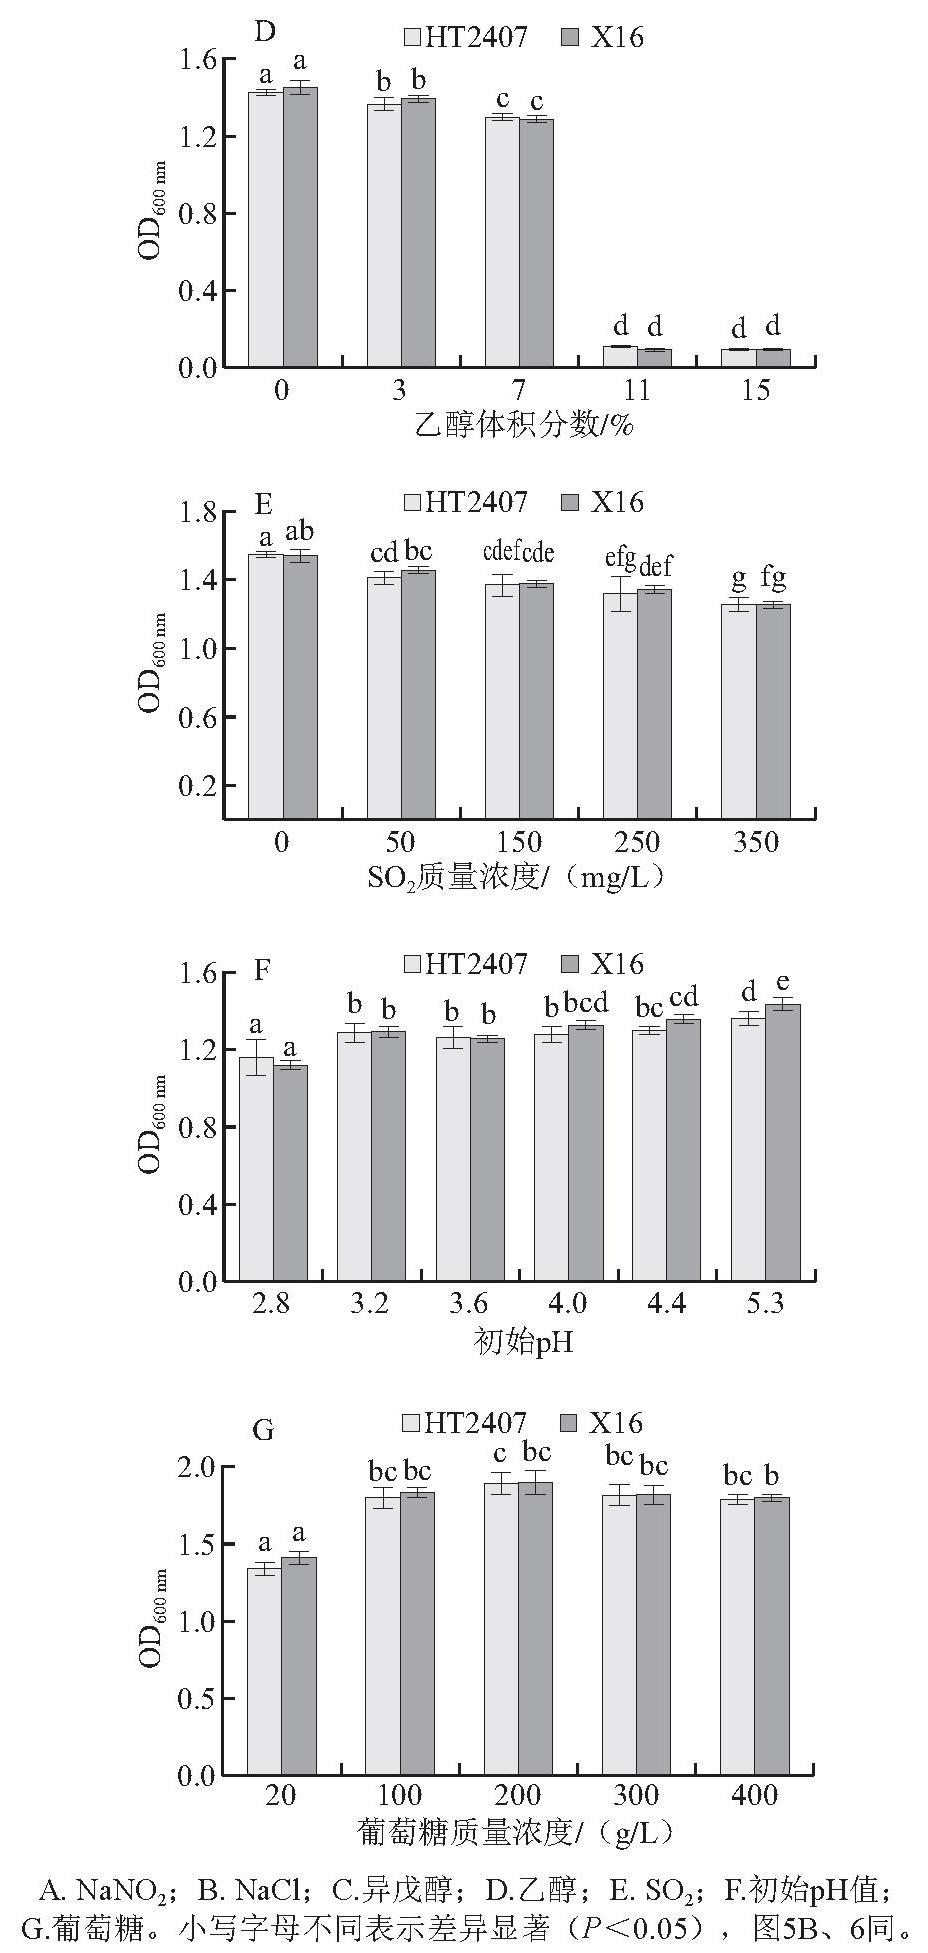
图4 酿酒酵母HT2407耐受性
Fig.4 Stress tolerance profiles of S. cerevisiae HT2407
2.5 菌株HT2407发酵刺梨汁的挥发性风味物质及高级醇
从菌株HT2407发酵刺梨汁中共鉴定出61种挥发性化合物,包括酯类(21种)、醇类(17种)、醛类(8种)、 酮类(5种)、酚类(2种)及其他类(8种),各类物质的种类分布见图5A。其中,酯类与醇类为主体风味物质,合计占总挥发性化合物种类的62.3%,是刺梨酒香气的核心贡献组分;酯类物质以乙酸乙酯、辛酸乙酯、乙酸异戊酯、月桂酸乙酯为代表,可赋予酒体典型的果香与酯香[23];醇类物质均为高级醇,共17种,占总挥发性物质种类的27.9%,是酒体醇香与风味复杂性的关键 来源[24]。
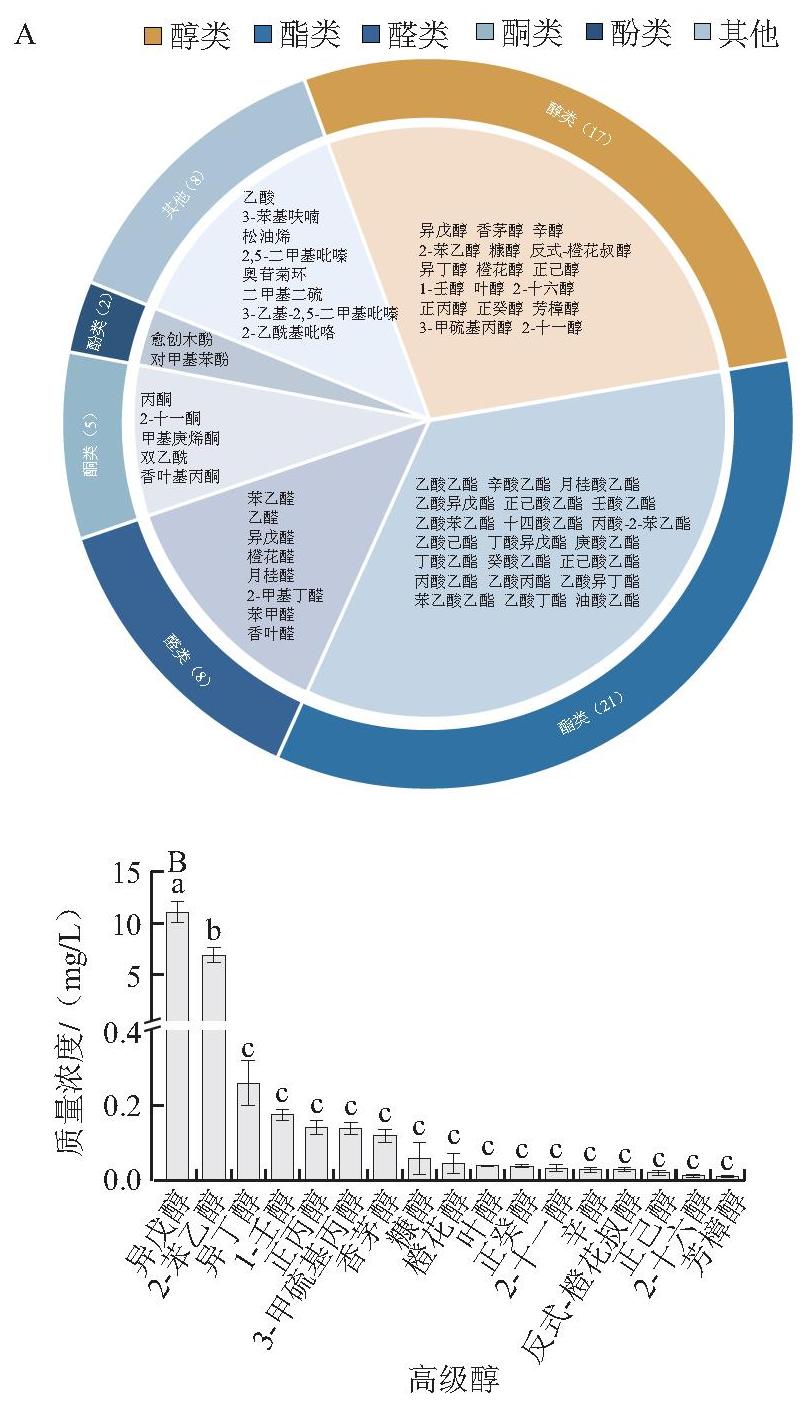
图5 酿酒酵母HT2407发酵刺梨汁的挥发性物质组成(A)和主要高级醇含量(B)
Fig.5 Total volatile compounds (A) and key higher alcohol concentrations (B) in R. roxburghii Tratt. juice fermented by S. cerevisiae HT2407
由图5B可知,17种高级醇按含量水平可分为3个层级:高含量核心组分为异戊醇和2-苯乙醇,质量浓度分别约为11 mg/L和7 mg/L,显著高于其他组分(P<0.05),分别赋予酒体典型的香蕉香气与玫瑰花香[25],为高级醇的主要贡献物质;中含量功能组分包括异丁醇、1-壬醇、正丙醇、3-甲硫基丙醇、香茅醇,质量浓度在0.1~0.3 mg/L之间,共同丰富酒体的花香与草本香层次[26];低含量辅助组分包括橙花醇、正己醇、辛醇、正癸醇、2-十六醇、2-十一醇、反式-橙花叔醇、糠醇、芳樟醇、叶醇,质量浓度均低于0.1 mg/L,虽占比不高,但对风味的细腻度与复杂度具有重要辅助作用[27]。综合各组分的含量水平与风味贡献,后续选取异丁醇、异戊醇、叶醇、糠醇、3-甲硫基丙醇、2-苯乙醇6种代表性高级醇开展因素调控研究。
2.6 不同发酵条件对筛选菌株发酵产高级醇的影响
由图6A可知,当初始pH值为3.83时,总高级醇质量浓度达到最高值(315.10 mg/L),其中异戊醇含量占高级醇产量的60%以上;初始pH值升高或降低时,总高级醇产量均下降,且异戊醇降幅最为明显。因此,菌株合成高级醇的最适初始pH值为3.83。由图6B可知,当未添加酵母提取物时,总高级醇质量浓度达到最高值(400.47 mg/L); 异戊醇、异丁醇等各主要高级醇组分产量均在此条件下达到最高。随着酵母提取物添加量增加,各组分含量呈同步持续下降趋势,表明外源氮源补充对高级醇合成具有显著抑制效应[28]。由图6C可知,当接种量为103 CFU/mL时,总高级醇质量浓度达到最高值(309.97 mg/L);异戊醇、叶醇、3-甲硫基丙醇等主要组分均同步达到峰值。随着接种量升高,总高级醇产量及各组分含量逐渐降低,表明低接种量更利于高级醇合成,高接种量会抑制副产物积累[29]。由图6D可知,当蔗糖质量浓度为180 g/L时,总高级醇质量浓度达到最高值(282.86 mg/L); 异戊醇、2-苯乙醇、糠醇等各主要高级醇组分均在此条件下达到较高水平。随着蔗糖质量浓度降低,高级醇积累量降低,表明180 g/L蔗糖为该菌株合成高级醇的最适糖浓度[28,30]。由图6E可知,当发酵温度为25 ℃时,总高级醇质量浓度达到最高值(144.24 mg/L);异戊醇、异丁醇、叶醇等主要组分均同步达到峰值。温度低于或高于25 ℃时,各高级醇组分产量均有不同程度下降,表明菌株合成高级醇的最适温度为25 ℃[31-32]。
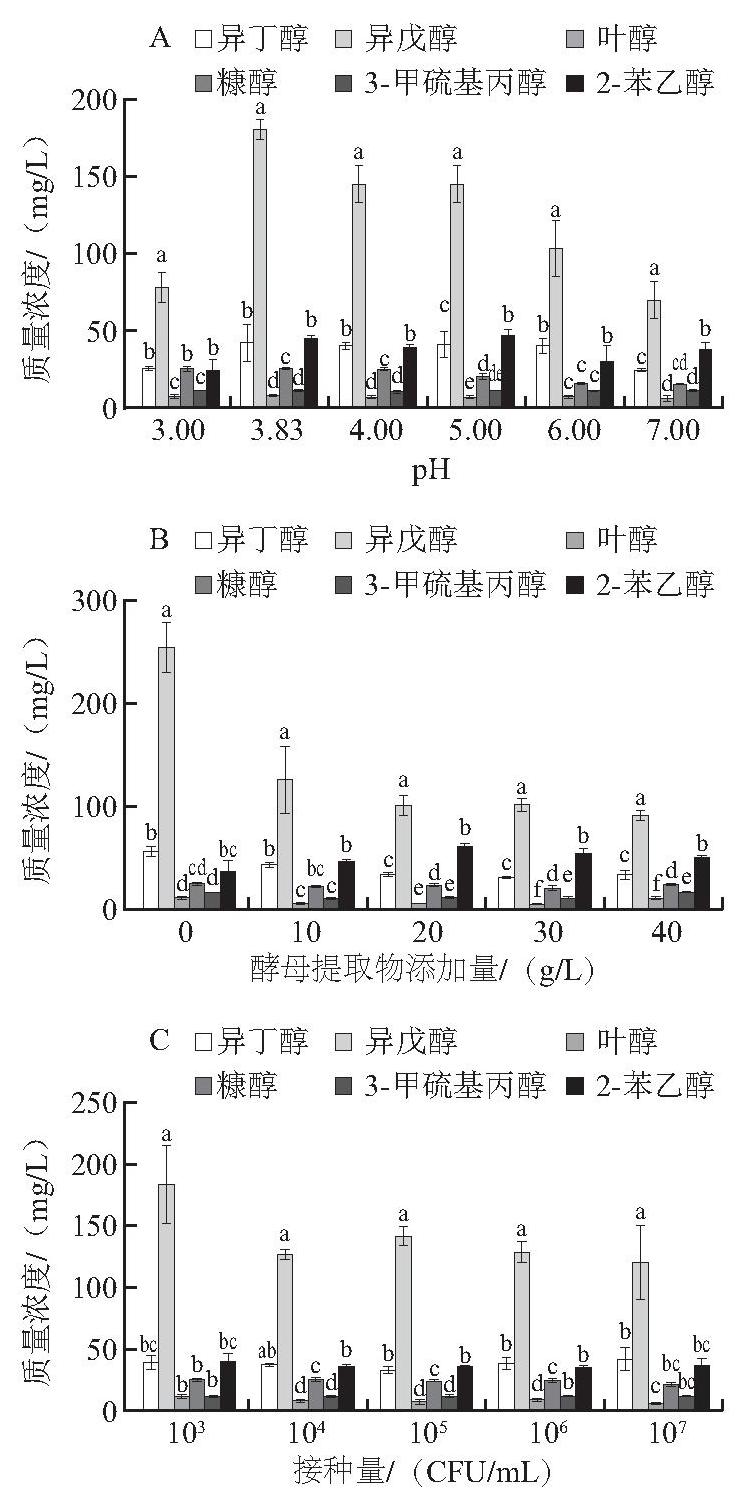
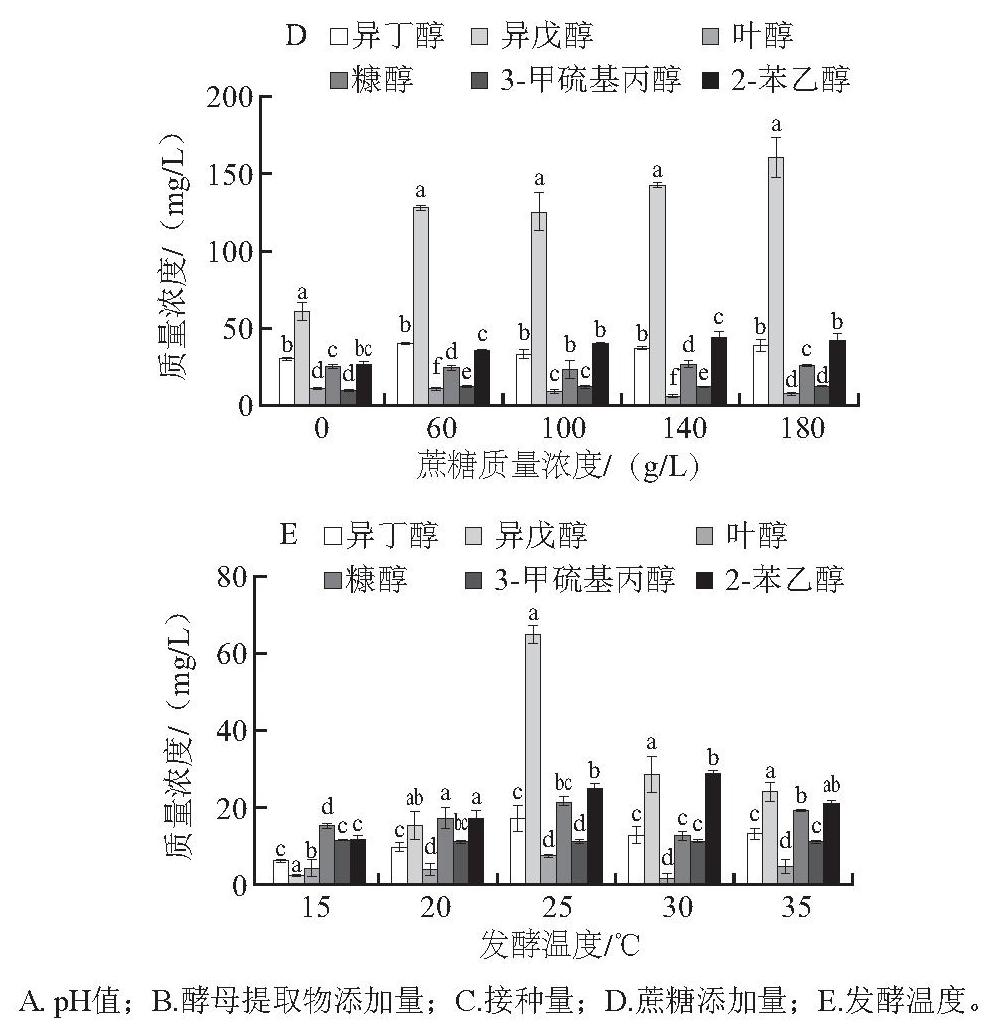
图6 不同发酵条件对酿酒酵母HT2407发酵刺梨汁产高级醇的影响
Fig.6 Effects of different fermentation parameters on higher alcohol production in R. roxburghii Tratt. juice fermented by S. cerevisiae HT2407
3 结 论
本研究从贵州威宁传统发酵火腿中分离筛选获得1株具有特定功能特性的酿酒酵母HT2407。该菌株在18 ℃条件下的VCD明显高于商业酿酒酵母X16,表现出一定的低温发酵适配性;同时对亚硝酸盐、SO2及酸性环境具有较强耐受性,具有相关发酵场景应用基础,仅在高盐(NaCl)及高醇类环境下耐受性较弱。该菌株发酵刺梨汁时可产生61种挥发性化合物,其中高级醇为主要代谢产物之一(共17种,占总挥发性物质的27.9%),酯类与醇类物质占比超过60%,构成发酵产物的主要挥发性成分。其产高级醇的最适工艺条件为:初始pH 3.83、不添加酵母提取物、发酵温度25 ℃、接种量103 CFU/mL、蔗糖质量浓度180 g/L,为后续定向调控风味物质合成提供依据。综上,菌株HT2407兼具低温发酵潜力、亚硝酸盐耐受性、挥发性成分生成能力及异戊醇高产特性,是1株具有特定应用潜力的酿酒酵母。该菌株的发掘不仅为刺梨果酒等特色发酵食品的开发提供了本土化菌种资源,也为生物能源领域异戊醇的绿色合成提供了候选菌株,为本研究成果的后续优化与产业化转化奠定了理论基础与技术支撑。
[1] 雷忠华, 陈聪聪, 陈谷. 基于宏基因组和宏转录组的发酵食品微生物研究进展[J]. 食品科学, 2018, 39(3): 330-337. DOI:10.7506/spkx1002-6630-201803049.
[2] 王靖雯, 赵谋明, 陈涛, 等. 高盐稀态酱醪中功能性酵母菌的筛选、鉴定及发酵特性[J]. 食品科学, 2021, 42(22): 91-97. DOI:10.7506/spkx1002-6630-20200809-118.
[3] 陈璐, 刘延琳, 秦义. 酿酒酵母高级醇代谢的转录调控研究进展[J]. 微生物学报, 2024, 64(12): 4669-4680. DOI:10.13343/j.cnki.wsxb.20240305.
[4] 陈倩, 李永杰, 扈莹莹, 等. 传统发酵食品中微生物多样性与风味形成之间关系及机制的研究进展[J]. 食品工业科技, 2021, 42(9): 412-419. DOI:10.13386/j.issn1002-0306.2020070365.
[5] 罗婧文, 龙明秀, 王辉, 等. 刺梨发酵优势菌种分离鉴定及其营养品质分析[J]. 粮食与油脂, 2025, 38(2): 133-138. DOI:10.3969/j.issn.1008-9578.2025.02.022.
[6] 吴阳, 罗欣. 贵州火腿风味研究进展[J]. 现代食品, 2023, 29(17): 80-82; 97. DOI:10.16736/j.cnki.cn41-1434/ts.2023.17.020.
[7] 蒋云升, 薛党辰, 董杰, 等. 干腌火腿中微生物生境与菌群关系的研究[J]. 食品科学, 2007, 28(9): 336-339. DOI:10.3321/j.issn:1002-6630.2007.09.080.
[8] 张诗意, 唐楠, 黄攀, 等. 威宁火腿中微生物的分离鉴定及其耐受特性[J]. 肉类研究, 2019, 33(8): 12-17. DOI:10.7506/rlyj1001-8123-20190625-147.
[9] 田甜甜, 孙军勇, 蔡国林, 等. 基于转录组学的酿酒酵母耐酸机制解析[J]. 食品与发酵工业, 2020, 46(6): 1-7. DOI:10.13995/j.cnki.11-1802/ts.023125.
[10] Mu Yu, Su Wei, Mu Yingchun, et al. Combined application of highthroughput sequencing and metabolomics reveals metabolically active microorganisms during Panxian ham processing[J]. Frontiers in Microbiology, 2020, 10: 3012. DOI:10.3389/fmicb.2019.03012.
[11] Cai Jiaming, Xing Lujuan, Zhang Wangang, et al. Selection of potential probiotic yeasts from dry-cured Xuanwei ham and identification of yeast-derived antioxidant peptides[J]. Antioxidants, 2022, 11(10): 1970. DOI:10.3390/antiox11101970.
[12] 任汝威, 吕霖, 王桂瑛, 等. 宣威火腿中产香酵母的筛选及其产香 特性[J]. 食品科学, 2026, 47(4): 105-114. DOI:10.7506/spkx1002-6630-20250823-165.
[13] 边名鸿, 万世旅, 代梅, 等. 产酒酵母的筛选鉴定及其在小曲中的应用[J]. 中国酿造, 2016, 35(3): 57-60. DOI:10.11882/j.issn.0254-5071.2016.03.013.
[14] 于志海, 岳利容, 王青, 等. 一株刺梨酿酒酵母的鉴定及酿酒潜力分析[J]. 食品与发酵工业, 2022, 48(1): 70-75. DOI:10.13995/j.cnki.11-1802/ts.029050.
[15] Bai Fengyan, Zhao Jianhua, Takashima M, et al. Reclassification of the Sporobolomyces roseus and Sporidiobolus pararoseus complexes, with the description of Sporobolomyces phaffii sp. nov.[J]. International Journal of Systematic and Evolutionary Microbiology, 2002, 52(6): 2309-2314. DOI:10.1099/00207713-52-6-2309.
[16] Kumar S, Stecher G, Li M, et al. MEGA X: molecular evolutionary genetics analysis across computing platforms[J]. Molecular Biology and Evolution, 2018, 35(6): 1547-1549. DOI:10.1093/molbev/msy096.
[17] 赵畅雯. 生香酵母发酵物香气特征及其在素肉制品中应用研究[D].邯郸: 河北工程大学, 2022. DOI:10.27104/d.cnki.ghbjy.2022.000779.
[18] 龚小会. 酵母产香特性及其对发酵肉制品风味品质的影响研究[D].贵阳: 贵州大学, 2022. DOI:10.27047/d.cnki.ggudu.2022.000350.
[19] 高绍金. 鲁氏酵母菌对发酵香肠的性能及品质影响研究[D]. 大庆:黑龙江八一农垦大学, 2019.
[20] 李婷婷, 黄名正, 唐维媛, 等. 刺梨汁中挥发性成分测定及其呈香贡献分析[J]. 食品与发酵工业, 2021, 47(4): 237-246. DOI:10.13995/j.cnki.11-1802/ts.025956.
[21] Yu Zhihai, Huang Guidan, Huang Xiaoyan, et al. A comparative study of yeasts for Rosa roxburghii wine fermentation[J]. Fermentation,2022, 8(7): 311. DOI:10.3390/fermentation8070311.
[22] 徐俊, 雍晓雨, 费文斌, 等. 基于TTC染色法的高活力酵母细胞定量筛选[J]. 食品与发酵工业, 2014, 40(7): 1-5. DOI:10.13995/j.cnki.11-1802/ts.2014.07.012.
[23] 刘沛通, 丁子元, 于庆泉, 等. 优良本土酿酒酵母的酿造特性研究[J].中国食品学报,2023, 23(1): 204-215. DOI:10.16429/j.1009-7848.2023.01.020.
[24] 李园子, 郭慧敏, 田伏锦, 等. 酒中高级醇调控的研究进展[J].食品研究与开发, 2024, 45(1): 160-169. DOI:10.12161/j.issn.1005-6521.2024.01.021.
[25] 闵卓, 蒋媛, 贾伟豪, 等. 不同原料苹果酒的酿造特性研究[J].中国酿造, 2022, 41(9): 61-67. DOI:10.11882/j.issn.0254-5071.2022.09.011.
[26] 田怀香, 熊娟涓, 于海燕, 等. 果酒中香气化合物的生物转化与调控机制研究进展[J]. 食品科学, 2022, 43(19): 36-47. DOI:10.7506/spkx1002-6630-20220412-131.
[27] 蔡坤, 吴武阳, 林雪. 果酒酿造工艺及香气成分研究进展[J]. 中国酿造, 2017, 36(11): 20-23. DOI:10.11882/j.issn.0254-5071.2017.11.005.
[28] 成婷, 邢爽, 刘治国, 等. 关键氨基酸对酿酒酵母高级醇代谢的影响[J]. 食品与发酵工业, 2024, 50(16): 16-22. DOI:10.13995/j.cnki.11-1802/ts.037418.
[29] 冶明珠, 白羽嘉, 李和旭, 等. 红枣果酒发酵中甲醇与高级醇变化规律的研究[J]. 食品与发酵工业, 2025, 51(18): 99-108. DOI:10.13995/j.cnki.11-1802/ts.041548.
[30] Yalcin S K, Ozbas Z Y. Effects of pH and temperature on growth and glycerol production kinetics of two indigenous wine strains of Saccharomyces cerevisiae from Turkey[J]. Brazilian Journal of Microbiology, 2008, 39(2): 325-332. DOI:10.1590/s1517-83822008000200024.
[31] 郑美瑜, 高浦, 陆胜民, 等. 发酵工艺对巨峰白兰地甲醇和高级醇含量的影响分析[J]. 酿酒科技, 2025(3): 38-43. DOI:10.13746/j.njkj.2024068.
[32] Salvadó Z, Arroyo-López F N, Barrio E, et al. Quantifying the individual effects of ethanol and temperature on the fitness advantage of Saccharomyces cerevisiae[J]. Food Microbiology, 2011, 28(6):1155-1161. DOI:10.1016/j.fm.2011.03.008.