油茶(Camellia oleifera Able.)是我国特有的木本油料树种,2025年,油茶年产量预计达到200万 t[1]。油茶粕作为油茶加工过程中的主要副产物,每生产1 t油茶油伴随0.75 t油茶饼粕的产生[2]。然而,目前油茶粕的利用率较低,除少量用作肥料或饲料外,大部分被直接丢弃,这不仅会造成资源浪费,也带来一定的环境压力。实际上,油茶粕富含粗蛋白、多糖、茶皂素及多酚类物质等多种生物活性成分,开发潜力巨大,其中多酚类物质尤为引人关注[3]。油茶多酚已被证实具有抗氧化、抗炎、抗菌等多种生理活性,在食品、保健品及化妆品领域展现出广阔的应用前景[4]。因此,采用绿色、高效的技术富集油茶粕多酚是实现其高值化利用、提升油茶产业链整体经济效益的关键途径之一。
固态发酵是指微生物在无游离水或含有少量游离水的固态基质上生长代谢的过程,具有节水、节能、易操作及后处理简单等优势[5]。在油料饼粕加工领域,该技术已成功应用于豆粕、菜籽粕等,通过微生物的酶系作用,能有效降解抗营养因子、释放结合多酚等活性物质,同时能有效改善基质的营养组成[6]。对油茶粕进行固态发酵处理,旨在利用特定微生物分泌的纤维素酶、淀粉酶、蛋白酶等多种水解酶破坏油茶粕原料的细胞壁致密结构,促进多酚的有效释放并增强其抗氧化活性[7]。
油茶粕的高值化利用是当前的研究热点,但现有工作多集中于通过固态发酵降解茶皂素或提高粗蛋白含量以改善饲用品质。周婕等[8]等采用黑曲霉-枯草芽孢杆菌-酿酒酵母混菌发酵,提高了油茶饼粕的蛋白质含量和抗氧化活性;罗彦玉等[9]发现利用枯草芽孢杆菌对油茶饼粕进行发酵能显著提高其粗蛋白、还原糖、黄酮含量;韩帅鹏等[10]则发现与水提、醇提、单菌发酵相比,混菌发酵在油茶粕的茶皂素提取与羟自由基清除能力方面效果最优。虽然少数研究观察到油茶粕发酵后总酚或黄酮含量有所提升,但主要以富集多酚为目标,系统优化油茶粕混菌固态发酵过程的研究仍较少。因此,本研究拟构建高效的混菌固态发酵体系,旨在提升油茶粕多酚含量与抗氧化活性、改善基质营养组成,为油茶粕作为功能性食品配料的高值化开发提供理论依据。
1 材料与方法
1.1 菌株、材料与试剂
植物乳植杆菌、戊糖片球菌、枯草芽孢杆菌、布拉迪酵母均保存于河南工业大学粮油食品学院实验室;米曲霉、黑曲霉、里氏木霉受赠于中国农业大学;酿酒酵母(SHMCC D12208)、米根霉(CICC 40282)上海保藏微生物有限公司。
油茶粕受赠于河南省联兴油茶产业开发有限公司;福林酚(分析纯)、没食子酸标准品、1,1-二苯基-2-三硝基苯肼(1,1-diphenyl-2-picrylhydrazyl,DPPH)、2,2′-联氮-双(3-乙基苯并噻唑啉-6-磺酸)(2,2′-azino-bis(3-ethylbenzothiazoline-6-sulfonic acid),ABTS)、2,4,6-三(2-吡啶基)-1,3,5-三嗪(2,4,6-tris(2-pyridyl)-s-triazine,TPTZ) 上海源叶生物科技有限公司;马铃薯葡萄糖琼脂(potato dextrose agar,PDA)培养基、MRS培养基、LB培养基、PDB培养基 北京奥博星生物技术有限责任公司;氯化钠、过硫酸钾、水杨酸、硫酸亚铁、无水碳酸钠 天津市科密欧化学试剂有限公司。
1.2 仪器与设备
HMJ-Ⅱ-250霉菌培养箱 上海跃进医疗器械有限公司;KQ-300超声清洗仪 昆山市超声仪器有限公司;T7紫外-可见分光光度计 翱艺仪器(上海)有限公司;TDL-5A低速离心机 江苏省金坛市医疗仪器厂;SHZ-82数显气浴恒温振荡器 常州亿通分析仪器制造有限公司。
1.3 方法
1.3.1 种子液的制备
植物乳植杆菌、戊糖片球菌、枯草芽孢杆菌、布拉迪酵母、酿酒酵母种子液制备:将冻存管解冻后涡旋混匀,按接种量1%吸取200 μL菌液,分别接种至装有20 mL相应培养基的锥形瓶中。其中,植物乳植杆菌和戊糖片球菌用MRS培养基、枯草芽孢杆菌用LB培养基、布拉迪酵母和酿酒酵母用PDB培养基。在37 ℃、180 r/min 条件下恒温振荡培养24 h以活化菌株。将活化后的菌株传代两次,最后一次传代的菌株接种至两个锥形瓶中,一瓶用于涂布计数,一瓶用于发酵(4 ℃保存)。将菌液活菌浓度稀释为1.0×10⁷ CFU/mL,备用。
米曲霉、黑曲霉、里氏木霉、米根霉种子液制备:将冻存管解冻后涡旋混匀,吸取100 μL菌液涂布于PDA平板。将接种后的固态培养基置于霉菌培养箱中,28 ℃、60%相对湿度下培养72 h以活化霉菌。活化后的菌株经两次传代后,用已灭菌的0.85 g/100 mL生理盐水冲洗孢子,制成孢子悬液。吸取孢子悬液置于已灭菌的50 mL锥形瓶中(放入5~10个玻璃珠),血球计数板计数,稀释为1.0×10⁷ CFU/mL的孢子悬液,备用。
1.3.2 油茶粕固态发酵样品的制备
将油茶粕粉碎后过40目筛,准确称取20.00 g样品置于150 mL三角瓶中。加入20 mL蒸馏水搅拌均匀,用透气膜封口,于121 ℃高压灭菌20 min。将灭菌后的样品置于无菌操作台,备用。
1.3.3 固态发酵菌株的筛选
单菌发酵:将各菌株按10 mL/100 g的接种量分别接入已灭菌的油茶粕样品,于30 ℃、60%相对湿度条件下固态发酵4 d。对照组除不接种外,其他操作与实验组相同。发酵结束后,将样品置于-18 ℃冷冻12 h以终止发酵。将冷冻处理后的样品置于培养皿中,于40 ℃烘箱内干燥24 h,粉碎后过40目筛,测定各组多酚含量,以筛选富集效果最佳的菌株。
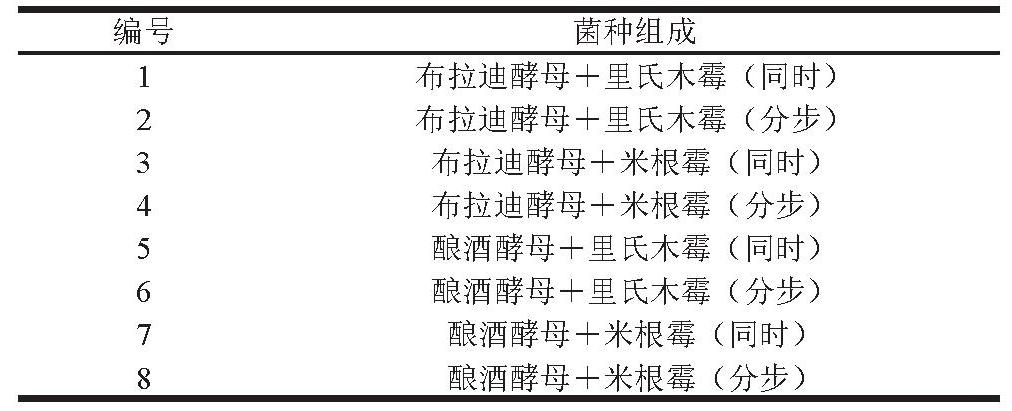
混菌发酵:按照表1菌种组成将不同混菌组合按体积比1∶1分别接入已灭菌的油茶粕样品中,控制总接种量为10 mL/100 g,并于30 ℃、60%相对湿度条件下发酵4 d。同时发酵为两种菌同时加入,共同发酵4 d;分步发酵,为第1种菌发酵2 d后,再加入第2种菌,共同发酵2 d。对照组除不接种外,其他处理与实验组相同。发酵结束后,将样品置于-18 ℃冷冻12 h以终止发酵。将冷冻处理后的样品置于培养皿中,于40 ℃烘箱内干燥24 h,粉碎后过40目筛,测定各组多酚含量,以筛选富集效果最佳混菌组合。
表1 混菌发酵组合菌种组成
Table1 Strain composition of mixed‑culture fermentation combinations
2布拉迪酵母+里氏木霉(分步)3布拉迪酵母+米根霉(同时)5酿酒酵母+里氏木霉(同时)6酿酒酵母+里氏木霉(分步)编号菌种组成1布拉迪酵母+里氏木霉(同时)4布拉迪酵母+米根霉(分步)7酿酒酵母+米根霉(同时)8酿酒酵母+米根霉(分步)
1.3.4 生长曲线绘制
布拉迪酵母生长曲线绘制:将布拉迪酵母种子液以1%(V/V)的接种量接种于PDB培养基,于37 ℃、180 r/min 条件下恒温振荡培养,每2 h取样一次,于600 nm波长处测定光密度值。
里氏木霉生长曲线绘制:采用干重法绘制里氏木霉生长曲线[11]。将里氏木霉冻存液接种至PDA平板活化并传代培养两次。用打孔器对菌株生长状态良好的平板进行取样,接种至装有50 mL PDB培养基的离心管中,于28 ℃,180 r/min条件下恒温振荡培养,分别于12、24、30、36、42、48、54、60、72、84、96、108、120 h取样。对培养液进行抽滤,将带菌丝的滤纸移入培养皿,60 ℃烘干至恒质量,根据干质量差绘制生长曲线。
1.3.5 活菌计数
将2.00 g发酵油茶粕样品、18 mL 0.85 g/100 mL生理盐水加入含玻璃珠的100 mL锥形瓶中,充分振摇使孢子分散,制得样品匀液。用生理盐水对其进行梯度稀释,选取适宜浓度梯度的样品匀液接种至对应培养基平板,30 ℃恒温培养3 d后,观察菌落生长状态并计数。
1.3.6 固态发酵条件优化
单因素试验:采用单因素轮换法依次考察布拉迪酵母与里氏木霉混菌体积比(1∶3、1∶2、1∶1、2∶1、3∶1)、接种量(5、10、15、20、25 mL/100 g)、料液比(1∶0.5、1∶1.0、1∶1.5、1∶2.0、1∶2.5,g/mL)和发酵时间(2、4、6、8、10 d)对油茶粕多酚含量的影响。
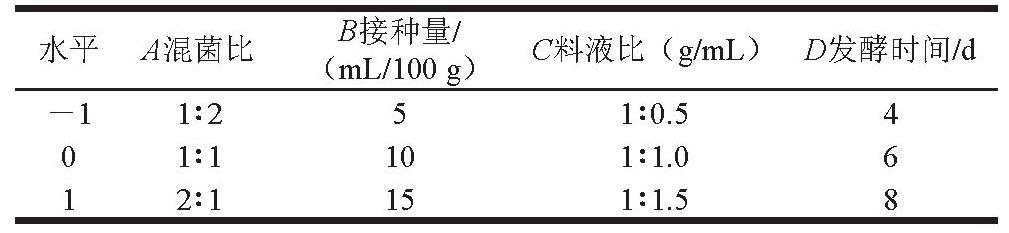
响应面试验:在单因素试验的基础上,应用Design-Expert 13软件进行响应面试验设计,以混菌比(A)、接种量(B)、料液比(C)、发酵时间(D)为变量因素,以多酚含量(Y)为响应值,设计4因素3水平响应面试验,对发酵工艺进行优化,详细参数见表2。
表2 响应面试验因素与水平
Table2 Factors and levels of response surface experiments
水平A混菌比B接种量/(mL/100 g)C料液比(g/mL)D发酵时间/d-11∶251∶0.5401∶1101∶1.0612∶1151∶1.58
1.3.7 多酚提取与测定
精密称取1.00 g油茶粕样品,加入10 mL 70%乙醇,涡旋混匀后300 W超声提取30 min,提取期间涡旋数次。提取液于3 500 r/min离心10 min,收集上清液。重复操作一次,合并上清液,并用70%乙醇定容至50 mL。
参考Zhou Xiaoli等[12]的方法,采用福林酚法进行多酚含量测定。准确移取0.5 mL待测液,依次加入2.5 mL 0.1 mol/L福林酚试剂与2.0 mL 7.5 g/100 mL碳酸钠溶液,混匀后于25 ℃避光反应60 min,在765 nm波长处测定吸光度。以0~140 μg/mL没食子酸标准溶液绘制标准曲线(y=0.005x+0.019 5,R2=0.995 9)。多酚含量以每克干基样品中没食子酸当量计,计算公式如下:
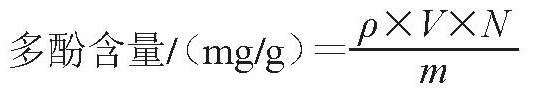
式中:ρ为没食子酸质量浓度/(μg/mL);V为样品体积/mL;N为稀释倍数;m为油茶粕粉末质量/g。
1.3.8 基本营养成分测定
水分含量测定采用GB 5009.3—2016《食品安全国家标准 食品中水分的测定》中的直接干燥法;灰分含量测定采用GB 5009.4—2016《食品安全国家标准 食品中灰分的测定》;蛋白质含量测定采用GB 5009.5—2025《食品安全国家标准 食品中蛋白质的测定》;脂肪含量测定采用GB 5009.6—2025《食品安全国家标准 食品中脂肪的测定》中的索氏提取法;粗纤维含量测定采用 GB/T 5009.10—2003《植物类食品中粗纤维的测定》;还原糖含量测定参照罗彦玉[13]的方法进行。
1.3.9 抗氧化活性测定
DPPH自由基清除活性参照Mohamed Ahmed等[14]的方法测定;ABTS阳离子自由基清除活性参照Le Tan等[15]的方法测定;羟自由基清除活性和总抗氧化活性参照孙菡峥[16]的方法测定。
1.4 数据处理
所有实验均作3个平行,结果用x±s表示,使用Design-Expert 13软件进行响应面分析,使用SPSS Statistics 27、Origin 2024软件进行数据分析及绘图。
2 结果与分析
2.1 油茶粕固态发酵菌种筛选
固态发酵能有效提高油茶粕中的多酚提取含量。如图1A所示,经不同菌株固态发酵后,油茶粕多酚含量均有所增加。其中,经米根霉、布拉迪酵母、酿酒酵母、里氏木霉发酵后,油茶粕多酚含量显著提升(P<0.05),与对照组相比分别提高20.17%、16.90%、16.77%、12.87%。
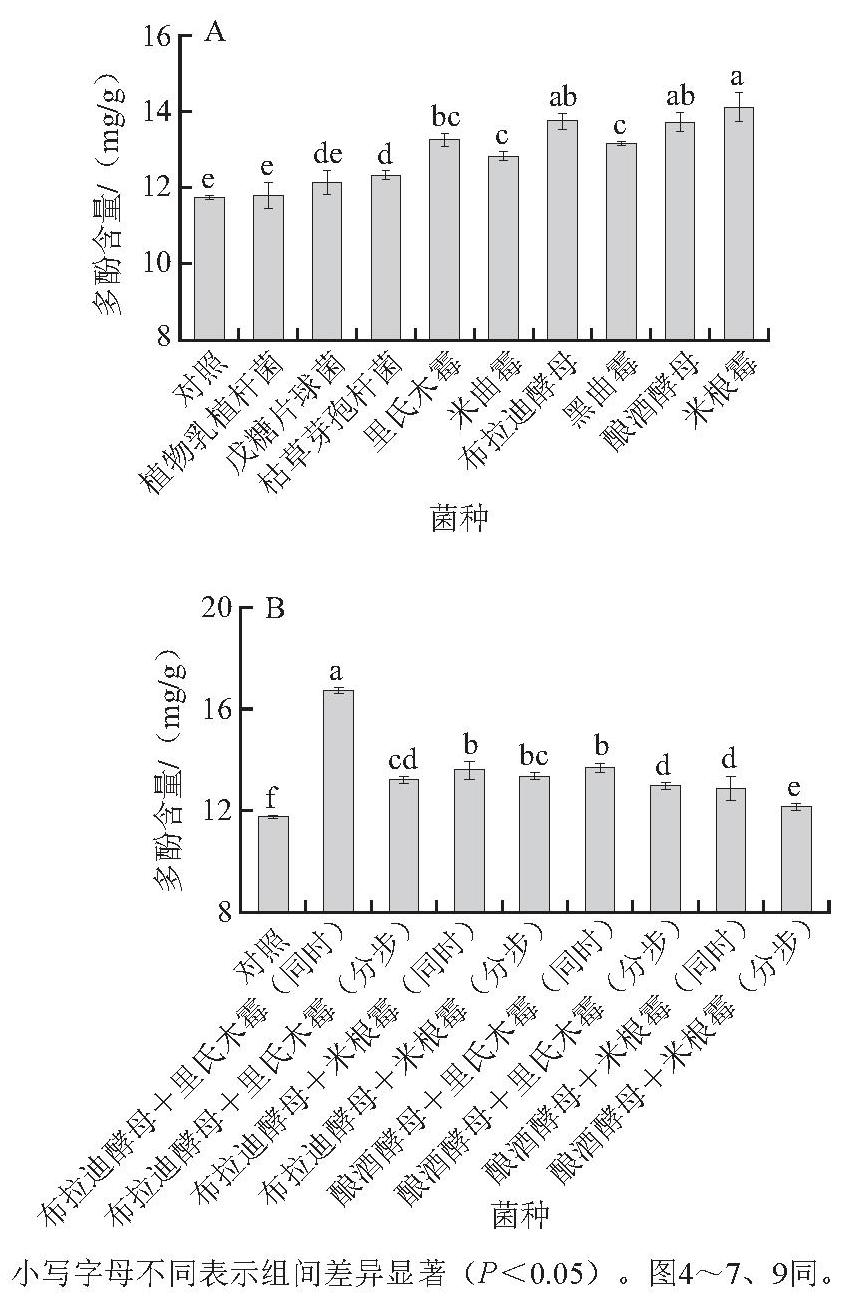
图1 单菌发酵(A)和混菌发酵(B)对油茶粕多酚含量的影响
Fig.1 Effects of single-strain fermentation (A) and mixed-strain fermentation (B) on polyphenol content of C. oleifera seed meal
为进一步提高油茶粕多酚含量,进行混菌发酵实验。如图1B所示,相同混菌组合下,同时发酵的效果几乎均显著优于分步发酵(P<0.05)。其中,布拉迪酵母和里氏木霉混合发酵提升多酚含量的效果最好,较对照组显著提高42.38%。类似地,张雪等[17]研究证实,米根霉与酵母菌混菌发酵可显著提高燕麦的多酚含量及抗氧化活性。李洋等[18]研究表明,酵母菌和霉菌混菌体系能够显著提升油茶粕饲料中的蛋白含量。这些研究表明,酵母菌与霉菌混菌体系能够有效提升不同基质的生物活性。相较于单一菌种发酵,混菌发酵能够充分发挥菌种间的互利共生关系,分泌更高效的复合酶系,从而更全面地释放不同菌种的生理潜能[19]。综上,本研究选择布拉迪酵母和里氏木霉(同时)混菌组合作为混菌发酵菌株,用于后续固态发酵条件的优化研究。
2.2 布拉迪酵母和里氏木霉的生长曲线
菌株的生长主要分为迟缓期、对数期和稳定期3个阶段:迟缓期内菌株适应新环境,增殖速率缓慢;进入对数期,菌株呈对数形式快速增殖;随后菌株生长较为稳定,进入迟缓期[20]。处于对数期的菌株生长速度快,代谢能力强,易于突变[21]。如图2A所示,培养0~8 h,布拉迪酵母生长缓慢,处于迟缓期;培养8~22 h,菌株呈对数快速增殖,进入对数生长期;培养22 h后,OD600 nm值变化较小,菌体生长趋于稳定,进入稳定期。如图2B所示,培养0~24 h,里氏木霉菌丝体干质量呈增长趋势,但增速较慢,处于生长迟缓期;培养24~84 h,里氏木霉菌丝体干质量增长迅速,处于生长对数期;培养84~120 h,里氏木霉菌丝体干质量变化较小,处于生长平稳期。本研究选择处于生长对数期的菌株进行固态发酵实验,即布拉迪酵母培养20 h、里氏木霉培养80 h。
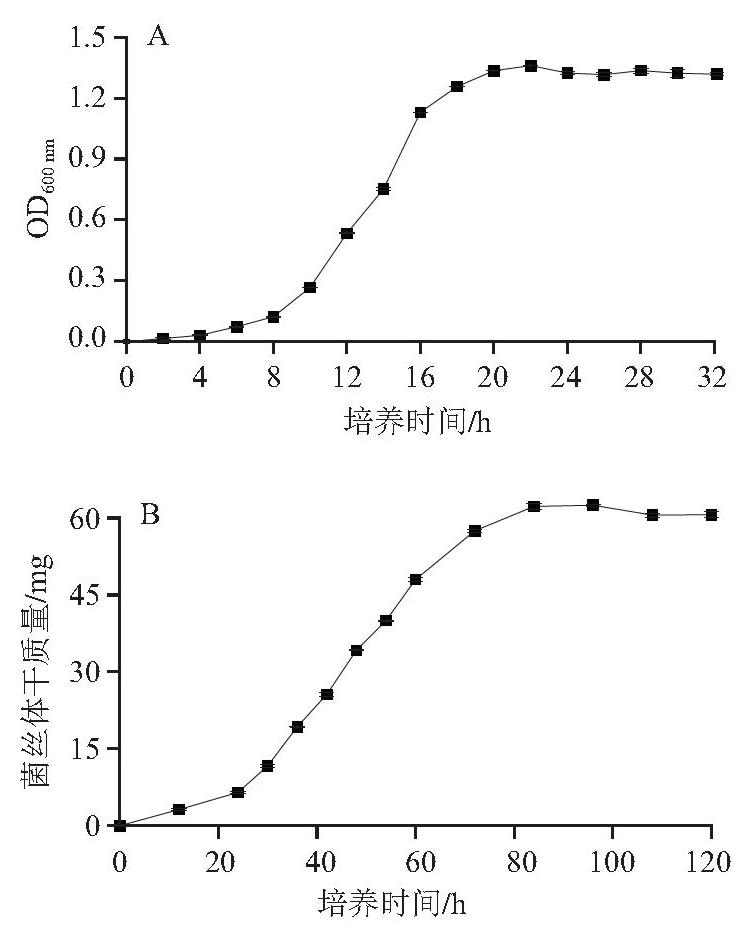
图2 布拉迪酵母(A)和里氏木霉(B)的生长曲线
Fig.2 Growth curves of S. boulardii (A) and T. reesei (B)
2.3 油茶粕固态发酵过程中活菌数变化
发酵是微生物与发酵基质进行复杂交互作用的过程,发酵过程中微生物生长情况与发酵效果紧密相关[22]。 如图3所示,在发酵过程中,布拉迪酵母和里氏木霉的活菌数均呈现先增后减的趋势。里氏木霉分泌的纤维素酶能够降解油茶粕中的纤维素,获取碳源,因此在发酵初期生长迅速,于4 d时达到生长峰值[23]。而布拉迪酵母稍微滞后,在发酵6 d达到生长峰值,这可能是由于发酵后期,其能利用里氏木霉释放的糖原进一步繁殖[24]。里氏木霉和布拉迪酵母在生长过程中发生协同作用,分泌大量水解酶,从而有效降解油茶粕原料的细胞壁结构,释放多酚化合物[25]。综上所述,两种菌在油茶粕底物上生长良好,能够为油茶粕多酚的释放提供有效的微生物支撑。
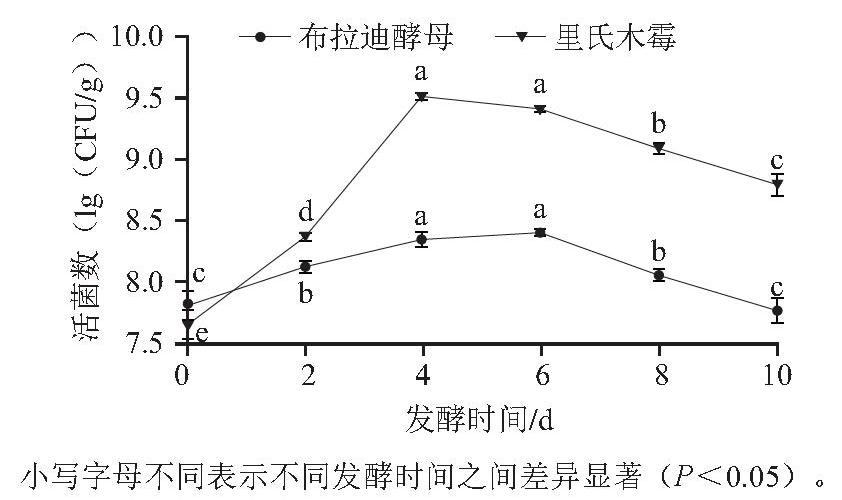
图3 发酵过程中布拉迪酵母与里氏木霉活菌数
Fig.3 Viable counts of S. boulardii and T. reesei during fermentation
2.4 油茶粕固态发酵工艺单因素优化实验结果
2.4.1 混菌比对油茶粕多酚含量的影响
混菌比是影响发酵效果的重要参数,其能通过影响菌种的生长代谢影响多酚释放效果[26]。如图4所示,当布拉迪酵母和里氏木霉比例由1∶3变至1∶1时,发酵后油茶粕多酚含量呈上升趋势,在混菌比1∶1时,油茶粕总多酚的含量达到最大值,为16.21 mg/g。随后,当布拉迪酵母和里氏木霉比例由1∶1变为3∶1时,发酵后油茶粕多酚含量下降。这是因为混菌比会通过影响微生物之间的协同作用或竞争性抑制作用影响多酚释放[27]。因此,选择布拉迪酵母和里氏木霉比例1∶2、1∶1、2∶1进行发酵条件优化响应面试验。
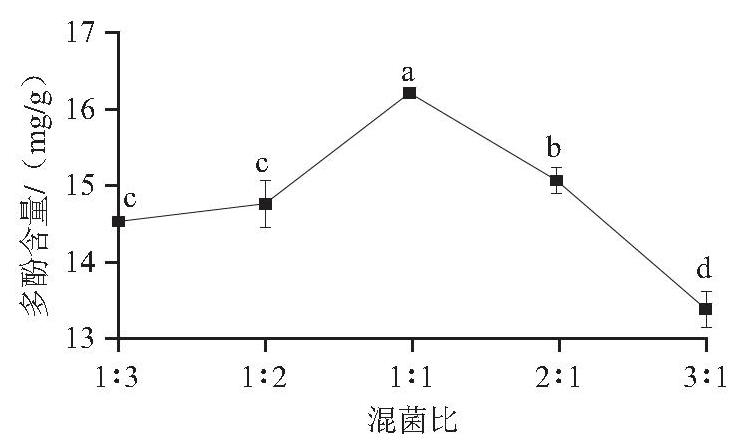
图4 混菌比对油茶粕多酚含量的影响
Fig.4 Effect of mixed strain ratio on polyphenol content of C. oleifera seed meal
2.4.2 接种量对油茶粕多酚含量的影响
如图5所示,接种量由5%提高至10%时,发酵后油茶粕多酚含量升高,这是由于接种量的增加使发酵更加充分,微生物通过生长代谢产生丰富的水解酶,有效破坏油茶粕基质的细胞壁结构,从而释放多酚[28]。当接种量为10%时,油茶粕多酚含量最高,达16.27 mg/g。随着接种量的继续增加,油茶粕多酚含量呈现下降趋势。这是由于过高的接种量会引发微生物对营养物质的激烈竞争,进而抑制其生长繁殖,最终影响多酚的合成与积累[29]。综上所述,选择接种量5%~15%进行发酵条件优化响应面试验。
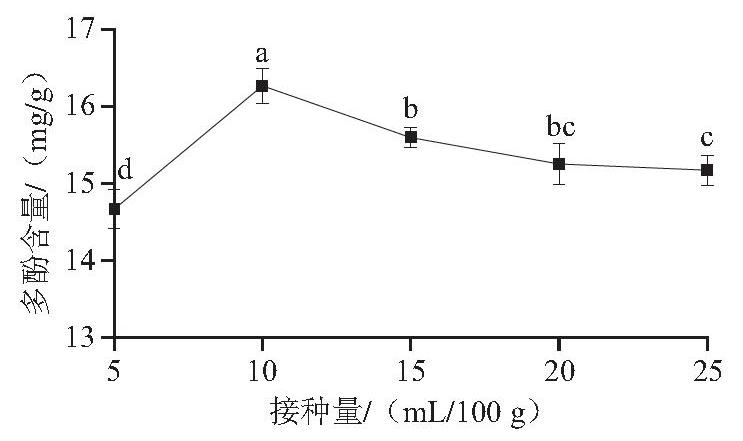
图5 接种量对油茶粕多酚含量的影响
Fig.5 Effect of inoculation dosage on polyphenol content of C. oleifera seed meal
2.4.3 料液比对油茶粕多酚含量的影响
如图6所示,随着料液比从1∶0.5降至1∶1.5,油茶粕多酚含量呈上升趋势,并在1∶1.5时达到峰值,为16.58 mg/g, 但与料液比1∶1.0时的含量无显著差异(P>0.05)。当料液比继续降低时,油茶粕多酚含量呈现下降趋势。在固态发酵过程中,料液比会通过影响溶解氧含量及营养物质传质速率影响发酵效果[30]。当料液比过高时,基质含水量不足,限制了微生物的生长代谢;而当料液比过低时,过多的液相则会填充物料孔隙,严重阻碍氧气的传递与扩散,导致发酵不充分[31]。因此,选择料液比为1∶0.5、1∶1.0、1∶1.5进行发酵条件优化响应面 试验。
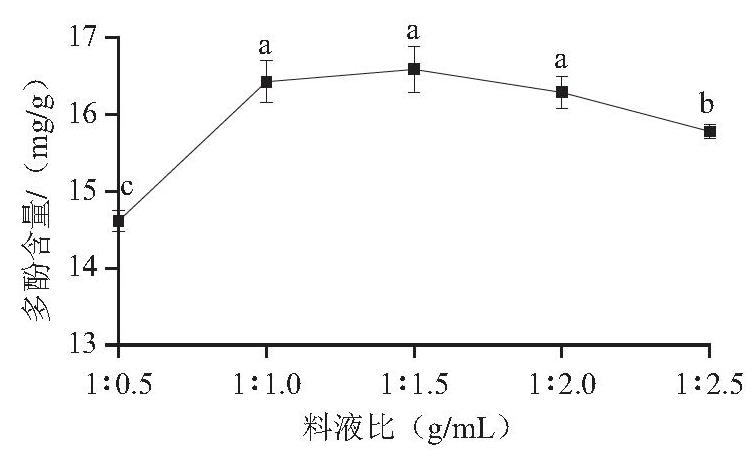
图6 料液比对油茶粕多酚含量的影响
Fig.6 Effect of solid-liquid ratio on polyphenol content of C. oleifera seed meal
2.4.4 发酵时间对油茶粕多酚含量的影响
如图7所示,在发酵2~4 d之间,随着发酵时间的延长,油茶粕多酚含量呈增加趋势,在4 d达到最大值,为16.53 mg/g,并在发酵6 d后保持稳定。此后,多酚含量快速下降。这一现象的出现可能是因为:在发酵初期,布拉迪酵母和里氏木霉快速繁殖,大量分泌水解酶,促进了多酚的释放;而随着发酵时间延长,培养基中的营养物质快速消耗,无法满足菌株正常代谢需求,菌株将多酚物质作为碳源进行分解,从而降低多酚含量[25]。因此,选择发酵时间4~8 d进行发酵条件优化响应面试验。
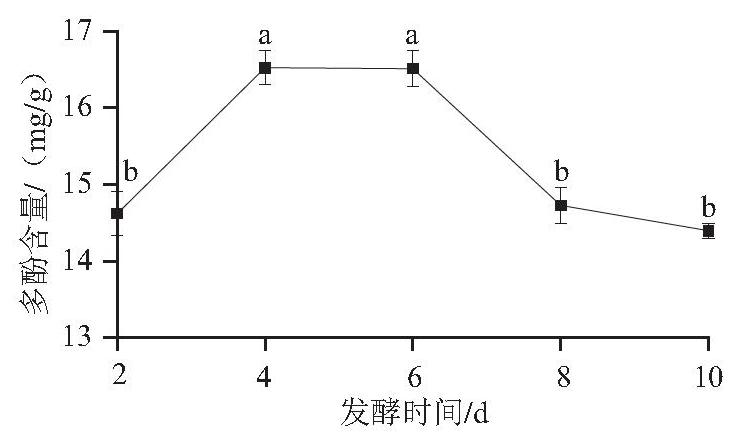
图7 发酵时间对油茶粕多酚含量的影响
Fig.7 Effect of fermentation time on polyphenol content of C. oleifera seed meal
2.5 油茶粕固态发酵工艺响应面优化实验结果
以单因素试验结果为基础,应用Design-Expert 13软件进行Box-Behnken试验设计,以混菌比(A)、接种量(B)、料液比(C)、发酵时间(D)为变量,以油茶粕多酚含量(Y)为响应值,设计4因素3水平响应面试验,结果如表3所示。将表3数据进行回归分析,所得二次多项式回归方程如下:Y=17.21+0.170 8A+0.680 8B+1.07C-0.329 2D+0.152 5AB+0.142 5AC-0.037 5AD-0.192 5BC-0.312 5BD+0.132 5CD-0.639 1A2-1.75B2-1.37C2-0.196 6D2。回归模型方差分析如表4所示。
表3 Box-Behnken试验设计及结果
Table3 Box-Behnken experimental design and results
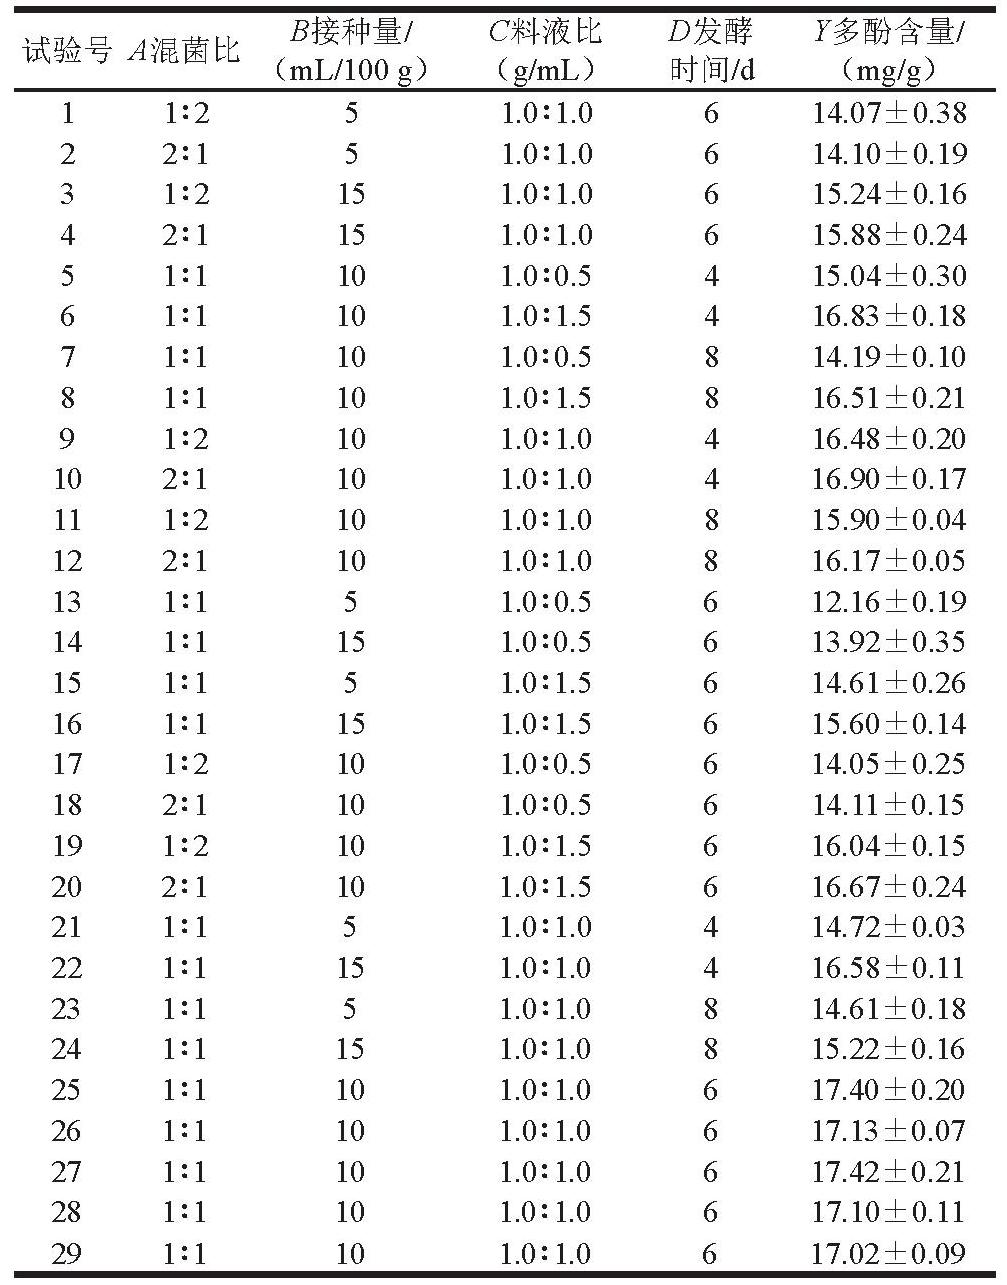
(mL/100 g)(g/mL)时间/d(mg/g)11∶251.0∶1.0614.07±0.3842∶1151.0∶1.0615.88±0.2461∶1101.0∶1.5416.83±0.1881∶1101.0∶1.5816.51±0.2191∶2101.0∶1.0416.48±0.20131∶151.0∶0.5612.16±0.19161∶1151.0∶1.5615.60±0.14182∶1101.0∶0.5614.11±0.15191∶2101.0∶1.5616.04±0.15211∶151.0∶1.0414.72±0.03221∶1151.0∶1.0416.58±0.11231∶151.0∶1.0814.61±0.18241∶1151.0∶1.0815.22±0.16261∶1101.0∶1.0617.13±0.07291∶1101.0∶1.0617.02±0.09试验号A混菌比B接种量/C料液比D发酵Y多酚含量/22∶151.0∶1.0614.10±0.1931∶2151.0∶1.0615.24±0.1651∶1101.0∶0.5415.04±0.3071∶1101.0∶0.5814.19±0.10102∶1101.0∶1.0416.90±0.17111∶2101.0∶1.0815.90±0.04122∶1101.0∶1.0816.17±0.05141∶1151.0∶0.5613.92±0.35151∶151.0∶1.5614.61±0.26171∶2101.0∶0.5614.05±0.25202∶1101.0∶1.5616.67±0.24251∶1101.0∶1.0617.40±0.20271∶1101.0∶1.0617.42±0.21281∶1101.0∶1.0617.10±0.11
表4 回归模型方差分析
Table4 Analysis of variance of the regression model
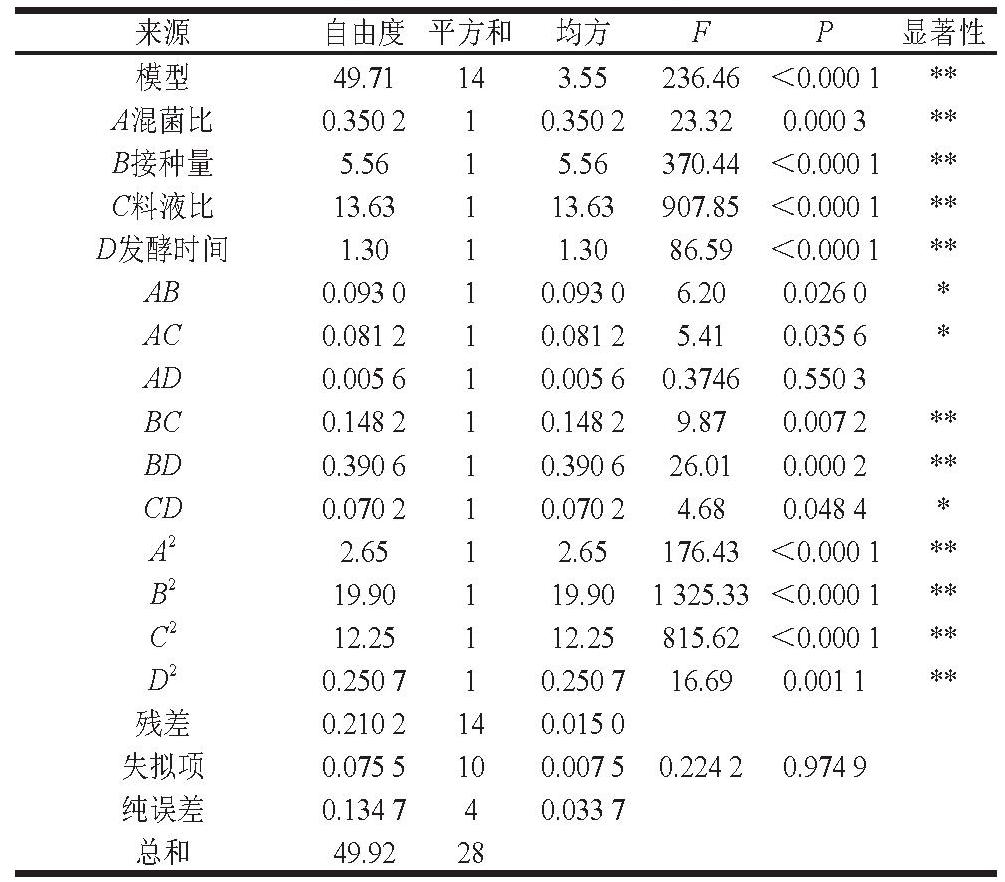
来源自由度平方和均方FP显著性模型49.71143.55236.46<0.000 1**A混菌比0.350 210.350 223.320.000 3**B接种量5.5615.56370.44<0.000 1**C料液比13.63113.63907.85<0.000 1**D发酵时间1.3011.3086.59<0.000 1**AB0.093 010.093 06.200.026 0*AC0.081 210.081 25.410.035 6*AD0.005 610.005 60.37460.550 3 BC0.148 210.148 29.870.007 2**BD0.390 610.390 626.010.000 2**CD0.070 210.070 24.680.048 4*A22.6512.65176.43<0.000 1**B219.90119.901 325.33<0.000 1**C212.25112.25815.62<0.000 1**D 20.250 710.250 716.690.001 1**残差0.210 2140.015 0失拟项0.075 5100.007 50.224 20.974 9纯误差0.134 740.033 7总和49.9228
注:*.显著(P<0.05);**.极显著(P<0.01)。
由表4可知,模型极显著(P<0.000 1),失拟项不显著(P=0.974 9>0.05),R2=0.995 8,说明模型拟合度和稳定性较好。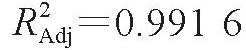 、
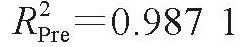 ,二者相差不足0.2,说明模型拟合度高,且新增变量对模型解释能力的贡献较小[32]。混菌比、接种量、料液比、发酵时间4个因素对多酚含量的影响均极显著;在交互作用方面,AB、AC、CD对多酚含量的影响显著,BC、BD对多酚含量的影响极显著;二次项对多酚含量的影响均极显著。
使用Design-Expert 13软件生成响应面图,如图8所示。响应面图可清晰呈现单一因素固定于中心水平时,另外2个因素对油茶粕多酚含量的影响。响应曲面陡峭程度能直观反映因素间交互作用的强弱,响应面投影可反映交互作用的显著性强弱,等高线呈椭圆形说明交互作用显著,当等高线趋于圆形时,表示2个因素的交互作用微弱或向不显著方向发展[33]。如图8所示,除AD响应面图外,其他曲面坡度均较陡,等高线呈椭圆形,说明交互作用显著,与方差分析结果一致。
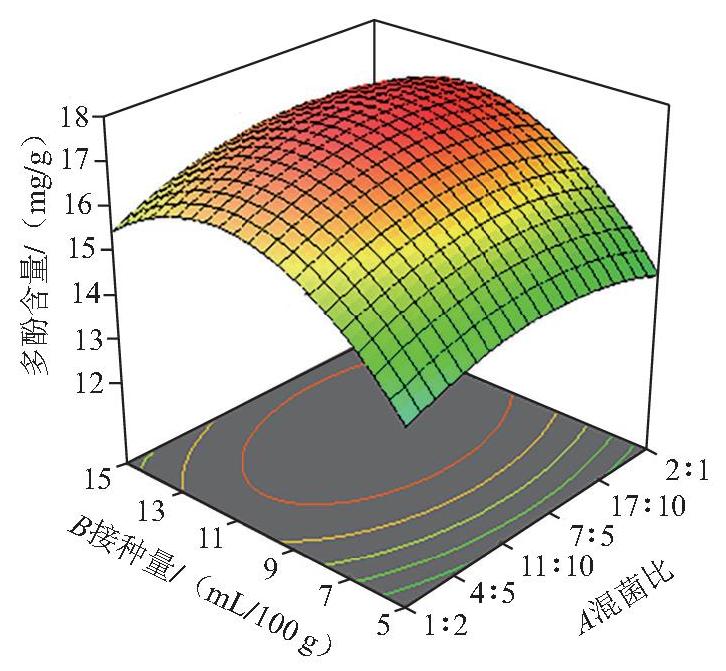
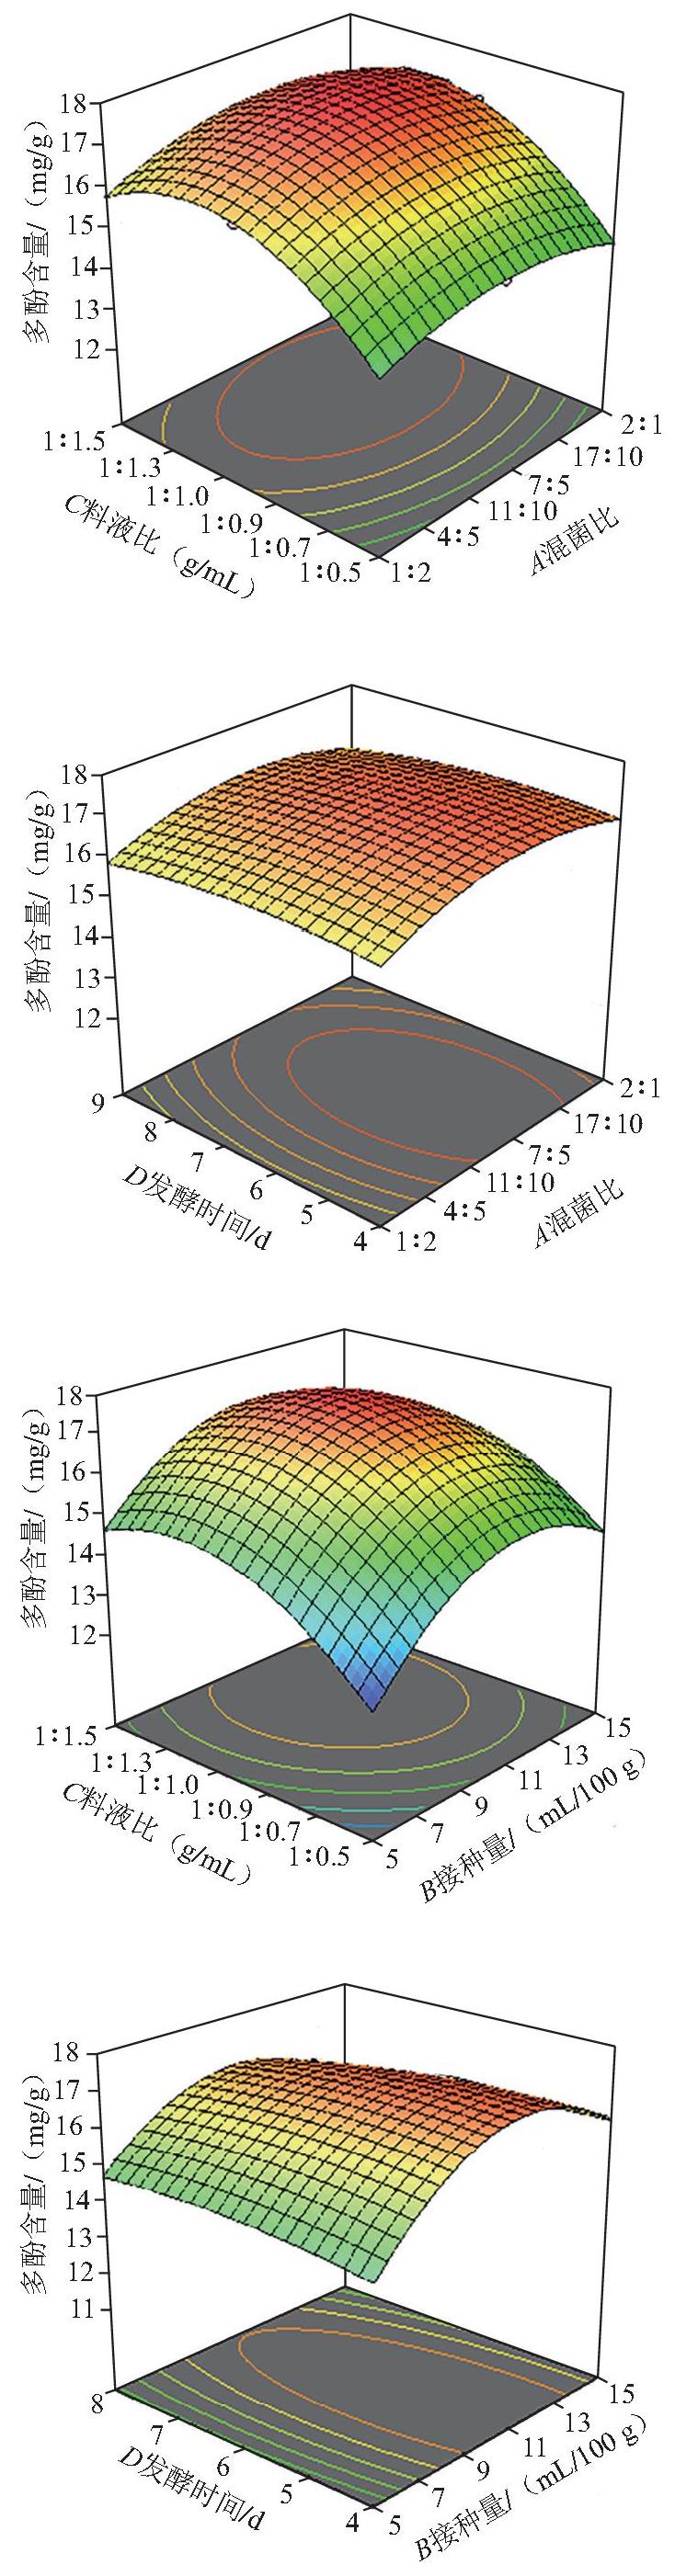
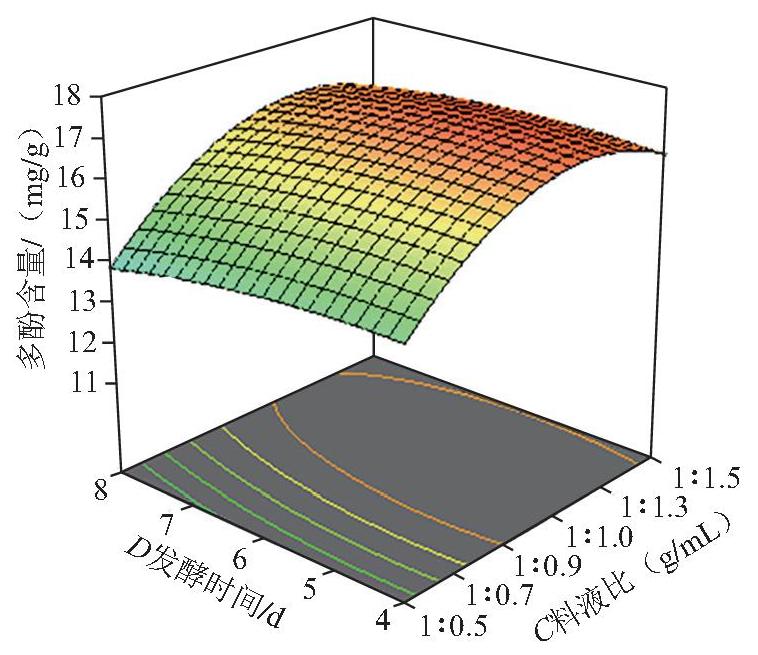
图8 各因素交互作用对多酚含量影响的响应面图
Fig.8 Response surface plots for interactive effects of various factors on polyphenol content
使用Design-Expert 13软件对模型进行分析,得到最佳固态发酵条件为:混菌比1∶1.424、接种量11.363 mL/100 g、料液比1∶1.167、发酵时间4.071 d,油茶粕多酚预测产量为17.663 mg/g。考虑到实际操作,调整发酵条件为:混菌比1∶1.4、接种量11 mL/100 g、料液比1∶1.17、发酵时间4 d,验证实验结果显示,油茶粕多酚实际产量为(17.77±0.33)mg/g,与对照组相比显著提高51.27%(P<0.05)。
2.6 固态发酵前后油茶粕基本营养成分变化
如表5所示,经布拉迪酵母与里氏木霉混合固态发酵后,油茶粕的基本营养成分发生显著变化。发酵后水分含量显著升高(P<0.05),这可能源于发酵过程导致的油茶粕结构蓬松化,使其持水能力增强[34]。蛋白质、脂肪及还原糖含量显著提高,而粗纤维含量显著下降 (P<0.05),表明发酵有效优化了油茶粕营养成分组成。蛋白质的增加主要源于微生物生物量的积累及其在生长代谢过程中分泌的多肽、酶蛋白等含氮物质[35-36]。脂肪含量的增加可能与微生物在发酵过程中的脂质合成代谢有关,此结果与王丽等[37]在油茶粕相关研究中的发现一致。粗纤维的降低与还原糖的升高直接对应,证实了发酵过程中纤维素酶等水解酶系将纤维素等大分子多糖降解为小分子还原糖的生物转化过程[38]。此外,抗营养因子茶皂素的含量显著降低(P<0.05)。综上所述,固态发酵能通过降低抗营养因子含量、提高营养物质含量的方式改善油茶粕的营养成分组成。
表5 固态发酵对油茶粕基本营养成分的影响
Table5 Effect of solid-state fermentation on basic nutritional components of C. oleifera seed meal
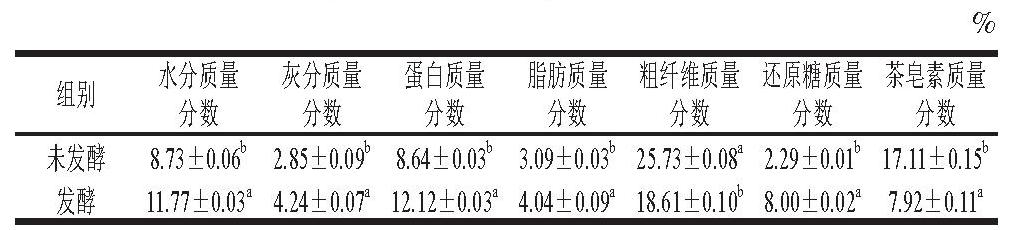
%组别水分质量灰分质量蛋白质量脂肪质量粗纤维质量还原糖质量茶皂素质量分数分数分数分数分数分数分数未发酵8.73±0.06 b2.85±0.09 b8.64±0.03 b3.09±0.03 b25.73±0.08 a2.29±0.01 b17.11±0.15 b发酵11.77±0.03a4.24±0.07a12.12±0.03a4.04±0.09a18.61±0.10b8.00±0.02a7.92±0.11a
注:同列小写字母不同表示组间差异显著(P<0.05)。表6同。
2.7 固态发酵前后油茶粕多酚抗氧化活性变化
酚类化合物基于其作为氢原子或电子供体的能力,通过向自由基转移氢原子或电子而表现出显著的抗氧化活性[39]。如图9所示,未发酵与发酵油茶粕多酚的体外抗氧化能力均呈现明显的剂量依赖性,即DPPH自由基、ABTS阳离子自由基、羟自由基清除能力及总抗氧化活性均随多酚质量浓度的升高而增强。如表6所示,发酵后油茶粕多酚对DPPH自由基与ABTS阳离子自由基的半抑制浓度(half maximal inhibitory concentration,IC50)显著低于发酵前(P<0.05),进一步证实发酵处理对其抗氧化能力的提升作用。综上,固态发酵可显著增强油茶粕多酚的整体抗氧化能力。
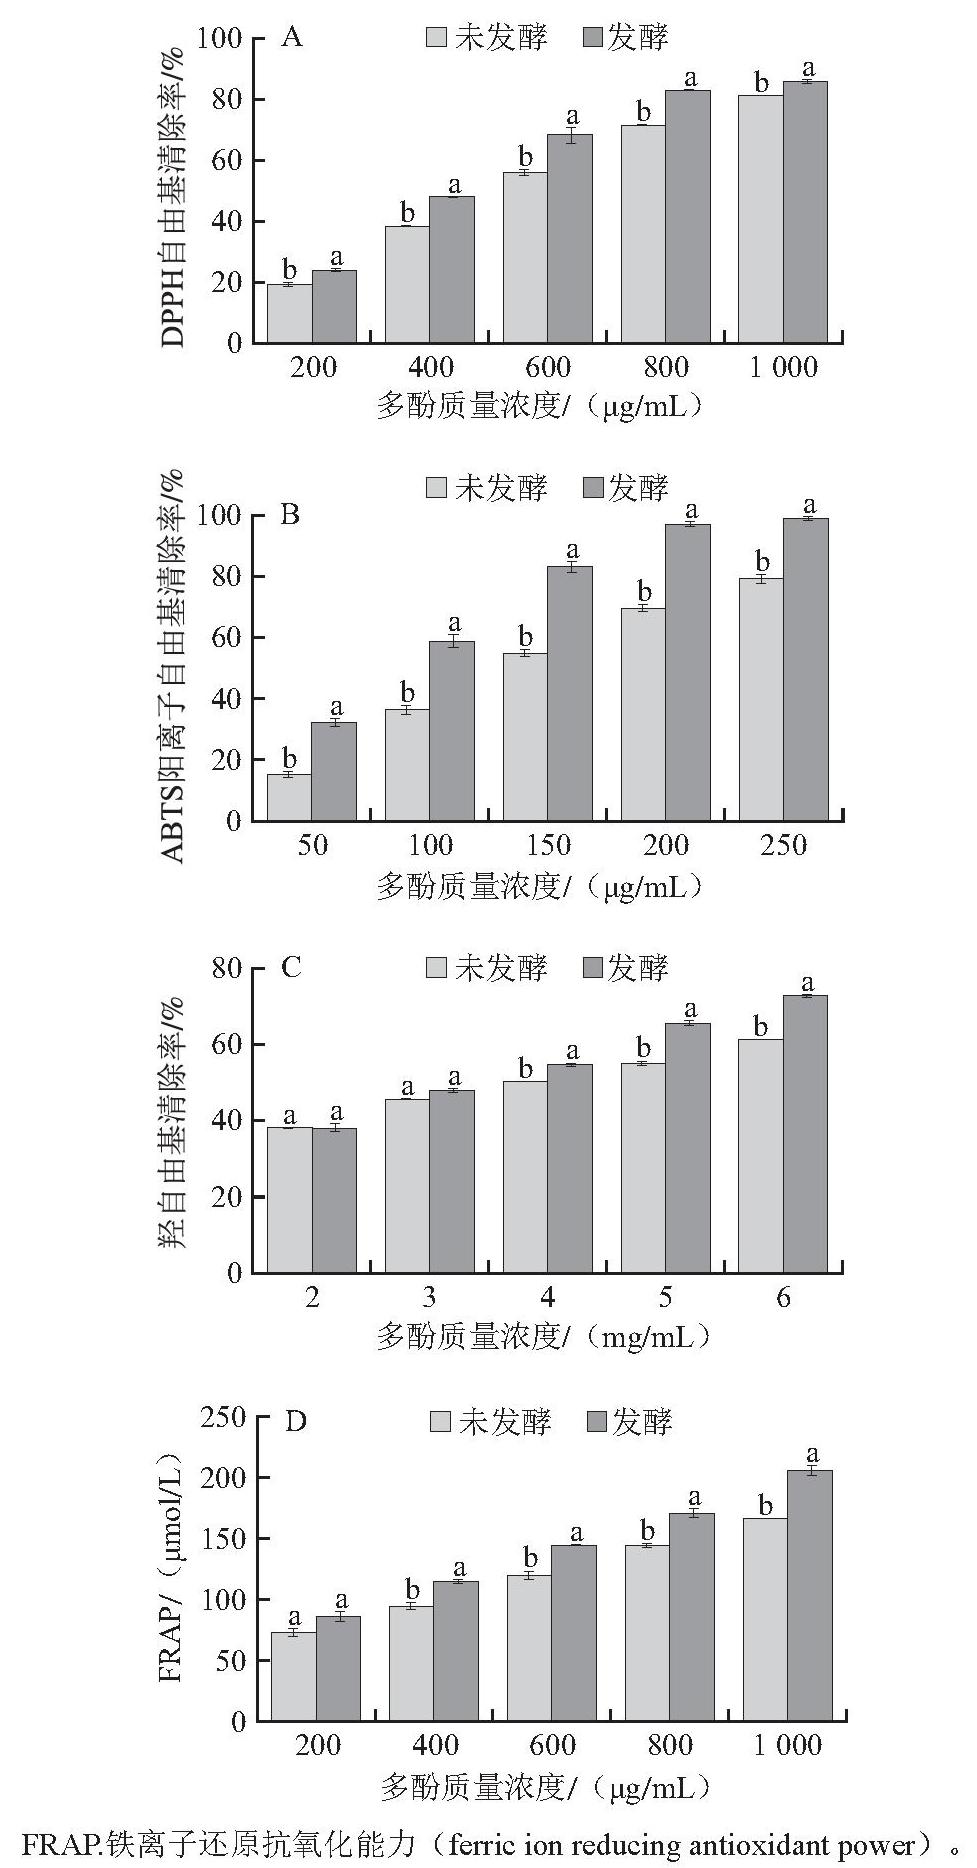
图9 固态发酵对油茶粕多酚DPPH自由基(A)、ABTS阳离子自由基(B)、羟自由基清除能力(C)和总抗氧化能力(D)的影响
Fig.9 Effect of solid-state fermentation on DPPH radical scavenging capacity (A), ABTS cation radical scavenging capacity (B), hydroxyl radical scavenging capacity (C) and total antioxidant capacity (D) of polyphenols extracted from C. oleifera seed meal
表6 发酵与未发酵油茶粕多酚IC50值
Table6 IC50 values of polyphenols from fermented and unfermented C. oleifera seed meal
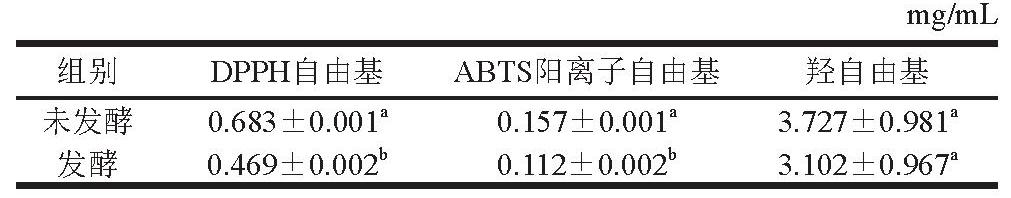
mg/mL组别DPPH自由基ABTS阳离子自由基羟自由基未发酵0.683±0.001a0.157±0.001a3.727±0.981a发酵0.469±0.002b0.112±0.002b3.102±0.967a
3 结 论
本研究以油茶粕为原料,首先通过单菌发酵筛选得到4株能有效提升多酚含量的菌株:米根霉、布拉迪酵母、酿酒酵母与里氏木霉。为进一步提高油茶粕多酚提取含量,构建了布拉迪酵母与里氏木霉的混菌固态发酵体系。通过单因素试验和响应面试验确定最优发酵条件为:混菌比1∶1.4、接种量11 mL/100 g、料液比1∶1.17、发酵时间4 d。在此优化条件下,油茶粕多酚提取含量可达到(17.77±0.33)mg/g,较未发酵组提高51.27%。固态发酵可有效改善油茶粕的营养成分组成,其中水分、灰分、蛋白质、脂肪及还原糖含量显著上升,而粗纤维、茶皂素含量显著下降(P<0.05)。同时,油茶粕多酚的DPPH自由基、ABTS阳离子自由基、羟自由基清除能力和总抗氧化能力得到显著提高(P<0.05)。综上所述,本研究构建了布拉迪酵母与里氏木霉混菌发酵体系,在提升多酚含量及改善营养成分的同时,提高了其抗氧化活性,为油茶粕作为功能性食品配料的高值化利用提供了有效策略。后续可进一步探究发酵多酚的其他功能活性,并深入解析混菌协同促进油茶粕多酚释放的具体机制。
[1] 朱静, 吕静, 陈龙, 等. 超声波辅助酶法提取油茶粕蛋白工艺优化及其功能活性[J]. 食品研究与开发, 2023, 44(18): 108-115.DOI:10.12161/j.issn.1005-6521.2023.18.015.
[2] Liu Xudong, Wu Yiying, Gao Yang, et al. Valorization of Camellia oleifera oil processing byproducts to value-added chemicals and biobased materials: a critical review[J]. Green Energy & Environment, 2024, 9(1): 28-53. DOI:10.1016/j.gee.2022.12.002.
[3] 刘海, 郭少海, 李慧, 等. 油茶饼粕综合利用研究进展[J].食品研究与开发, 2025, 46(5): 187-195. DOI:10.12161/j.issn.1005-6521.2025.05.025.
[4] 赵盈, 於天, 郑志刚, 等. 多酚在植物中的分布及其生物活性研究进展[J]. 中草药, 2023, 54(17): 5825-5832. DOI:10.7501/j.issn.0253-2670.2023.17.035.
[5] 袁锐华. 微生物固态发酵改善木薯营养价值和风味工艺研究[D].郑州: 郑州轻工业大学, 2025. DOI:10.27469/d.cnki.gzzqc.2025.000260.
[6] 刘沛龙, 刘昆仑, 杨趁仙, 等. 微生物发酵提升植物粕资源利用率的研究及应用进展[J]. 食品与发酵工业, 2025, 51(11): 385-394; 405.DOI:10.13995/j.cnki.11-1802/ts.040665.
[7] 李光耀, 柴新想, 程伟, 等. 固态发酵技术强化麸皮酚类物质释放的研究进展[J]. 食品与发酵工业, 2022, 48(9): 311-316. DOI:10.13995/j.cnki.11-1802/ts.029195.
[8] 周婕, 杨梦雨, 张赢, 等. 油茶饼粕多菌种固态发酵工艺优化及成分与抗氧化性分析[J]. 食品工业, 2025, 46(9): 68-76.
[9] 罗彦玉, 王磊, 邹春霞, 等. 枯草芽孢杆菌降解油茶饼中茶皂素及成分变化[J]. 食品与发酵工业, 2023, 49(17): 161-167. DOI:10.13995/j.cnki.11-1802/ts.033723.
[10] 韩帅鹏, 曾万祥, 伍丹惠, 等. 混菌发酵对油茶粕中茶皂素表面活性指标和抗氧化活性的影响[J]. 食品与发酵工业, 2024, 50(2): 119-125. DOI:10.13995/j.cnki.11-1802/ts.033752.
[11] 焦晨阳. 深绿木霉2-M-4-4对番茄早疫病的防治效果及与杀菌剂协同作用研究[D]. 哈尔滨: 东北农业大学, 2025. DOI:10.27010/d.cnki.gdbnu.2025.000295.
[12] Zhou Xiaoli, Qin Yumeng, Wang Yanli, et al. Phytochemical profile and antioxidant characteristics of bound and free phenolics from Rosa roxburghii Tratt[J]. Food Bioscience, 2024, 57: 103576. DOI:10.1016/j.fbio.2024.103576.
[13] 罗彦玉. 茶皂素降解菌株的筛选及其发酵油茶饼的应用研究[D].贵阳: 贵州大学, 2023. DOI:10.27047/d.cnki.ggudu.2023.003499.
[14] Mohamed Ahmed I A, Al Juhaimi F Y, Osman M A, et al. Effect of oven roasting treatment on the antioxidant activity, phenolic compounds, fatty acids, minerals, and protein profile of Samh (Mesembryanthemum forsskalei Hochst) seeds[J]. LWT-Food Science and Technology, 2020, 131: 109825. DOI:10.1016/j.lwt.2020.109825.
[15] Le Tan H, Ferrentino G, Morozova K, et al. Supercritical CO2 extraction and fractionation of turmeric polyphenols: antioxidant capacity and inhibition of lipid oxidation in sunflower oil[J]. Food Bioscience, 2025, 69: 106906. DOI:10.1016/j.fbio.2025.106906.
[16] 孙菡峥. 龙眼核多酚的分离纯化及抗氧化性能的研究[D]. 无锡:江南大学, 2019.
[17] 张雪, 边传周, 杨建平, 等. 米根霉和酵母菌组合发酵对燕麦总酚及体外抗氧化活性和理化指标的影响[J]. 粮食与油脂, 2021, 34(10):116-120. DOI:10.3969/j.issn.1008-9578.2021.10.028.
[18] 李洋, 李忠军. 多菌种发酵生产微生物蛋白饲料的菌种筛选研究[J]. 现代农业科技, 2017(5): 228-230. DOI:10.3969/j.issn.1007-5739.2017.05.147.
[19] Liu Na, Wang Yuan, An Xiaoping, et al. Study on the enhancement of antioxidant properties of rice bran using mixed-bacteria solidstate fermentation[J]. Fermentation, 2022, 8(5): 212. DOI:10.3390/fermentation8050212.
[20] 陈贤林. 生物膜型布拉迪酵母菌的制备及其益生效果研究[D].杭州: 浙江工商大学, 2021. DOI:10.27462/d.cnki.ghzhc.2021.000986.
[21] 聂新玲. 富硒酵母的菌种选育及其富硒条件优化[D]. 淮安: 淮阴工学院, 2023. DOI:10.27944/d.cnki.ghygy.2023.000142.
[22] 孙旺盛. 非酿酒酵母与乳酸菌发酵猕猴桃酒的制备及其代谢特征研究[D]. 杨凌: 西北农林科技大学, 2025. DOI:10.27409/d.cnki.gxbnu.2025.001557.
[23] 郑威. 稻秆多酚和多糖对里氏木霉产纤维素酶的影响[D]. 上海:上海大学, 2017.
[24] De Villa R, Roasa J, Mine Y, et al. Impact of solid-state fermentation on factors and mechanisms influencing the bioactive compounds of grains and processing by-products[J]. Critical Reviews in Food Science and Nutrition, 2023, 63(21): 5388-5413. DOI:10.1080/10408398.2021.2018989.
[25] Denardi De Souza T, Leal C A, Massarolo K C, et al. Profile of phenolic compounds released from rice bran by Rhizopus oryzae and Trichoderma reesei: their relation with hydrolases activity[J].Journal of Food Science, 2019, 84(6): 1382-1389. DOI:10.1111/1750-3841.14646.
[26] 郭珍红. 混菌固态发酵菜籽粕生产菜籽肽关键技术研究[D]. 郑州:河南工业大学, 2024. DOI:10.27791/d.cnki.ghegy.2024.000992.
[27] Pan Xin, Zhang Sai, Xu Xinxing, et al. Volatile and non-volatile profiles in jujube pulp co-fermented with lactic acid bacteria[J]. LWT-Food Science and Technology, 2022, 154: 112772. DOI:10.1016/j.lwt.2021.112772.
[28] 廖娟, 赵海姣, 王腾飞, 等. 复合乳酸菌发酵藜麦富集多酚工艺优化及其体外模拟消化特性[J]. 食品工业科技, 2025, 46(19): 232-240.DOI:10.13386/j.issn1002-0306.2024090289.
[29] Sala A, Vittone S, Barrena R, et al. Scanning agro-industrial wastes as substrates for fungal biopesticide production: use of Beauveria bassiana and Trichoderma harzianum in solid-state fermentation[J].Journal of Environmental Management, 2021, 295: 113113.DOI:10.1016/j.jenvman.2021.113113.
[30] 李宇航, 史可, 李研东, 等. 混菌固态发酵食叶草饲料工艺研究[J]. 中国饲料, 2025(21): 162-170. DOI:10.15906/j.cnki.cn11-2975/s.2024080060-10.
[31] Abdel-Aty A M, Barakat A Z, Bassuiny R I, et al. Antioxidantpolyphenols of saw palmetto seeds: statistical optimized production and improved functional properties under solid-state fermentation by Trichoderma reesei[J]. Journal of Food Measurement and Characterization, 2023, 17(2): 1132-1143. DOI:10.1007/s11694-022-01675-w.
[32] 高燕, 刘昆仑, 朱晓艾, 等. 黑苦荞固态发酵富集总酚、总黄酮工艺优化及其抗氧化活性研究[J]. 河南工业大学学报(自然科学版),2024, 45(4): 1-10; 28. DOI:10.16433/j.1673-2383.202312120003.
[33] 王芙蓉, 赵益梅, 李靖, 等. 苦丁茶米酒的发酵工艺条件优化[J].中国酿造, 2023, 42(2): 205-209. DOI:10.11882/j.issn.0254-5071.2023.02.034.
[34] 路士熠, 孙卫宁, 李凯歌, 等. 纤维素酶协同植物乳植杆菌P-8发酵法改善糙米的储藏特性[J]. 食品科学, 2025, 46(21): 251-257.DOI:10.7506/spkx1002-6630-20250606-032.
[35] 张寒. 基于多菌株发酵菜籽粕制备工艺优化及营养价值研究[D].武汉: 武汉轻工大学, 2024. DOI:10.27776/d.cnki.gwhgy.2024.000521.
[36] Dai Chunhua, Ma Haile, He Ronghai, et al. Improvement of nutritional value and bioactivity of soybean meal by solid-state fermentation with Bacillus subtilis[J]. LWT-Food Science and Technology, 2017, 86: 1-7.DOI:10.1016/j.lwt.2017.07.041.
[37] 王丽, 赵晨, 何贝贝, 等. 油茶籽粕中茶皂素脱除工艺研究[J]. 动物营养学报, 2025, 37(11): 7941-7954. DOI:10.12418/CJAN2025.646.
[38] 余青松, 马欣龙, 陈玉霞, 等. 茯苓菌固态发酵香菇柄基质的酶活力、营养成分及抗氧化活性变化[J]. 华中农业大学学报, 2024,43(4): 230-238. DOI:10.13300/j.cnki.hnlkxb.2024.04.025.
[39] Degrain A, Manhivi V, Remize F, et al. Effect of lactic acid fermentation on color, phenolic compounds and antioxidant activity in African nightshade[J]. Microorganisms, 2020, 8(9): 1324.DOI:10.3390/microorganisms8091324.