酱香型白酒,作为中国3大白酒香型之一,因其独特的香气和复杂的风味广受消费者青睐,在中国酒类市场中占据核心地位[1]。酱香型白酒主要以高粱为原材料,通过多轮蒸煮、发酵和蒸馏的复杂工艺精制而成。据不完全统计,其每年产生的末次酒糟约达1亿 t,大量堆积不仅造成资源浪费,还带来环境负担[2]。末轮次酒糟酸度高、含水量大、易腐败变质,且成分复杂,不仅预处理难度大,集中收集运输成本也较高[3]。同时,末轮次酒糟直接利用附加值偏低,企业经济效益有限,其含有的醇、醛、酸等有害物质也限制了其在农牧业中的应用[4];若预处理不当还易引发环境污染,长期以来多被当作废弃物处理[5]。因此,如何在克服其利用瓶颈的基础上实现高值化利用,减少环境污染并提升其经济价值,仍是一个待解决的难题。然而,末轮次酒糟富含粗蛋白质、氨基酸及多种功能活性物质,在多肽制备与高值化利用方面具有较大开发潜力。
多肽是一类对人体健康有益的活性分子,其分子质量低、易于消化和吸收,并表现出良好的药理学活性,其在小肠上部极化上皮细胞层的顶端侧被摄取后,可通过激活不同信号通路发挥有益作用[6],其特有的理化性质与生物活性源于其独特的氨基酸组成、序列和空间结构等,现已成为药物开发领域的重要候选分子、临床医学中对症干预的有效手段及保健食品领域的关键功能成分[7]。多肽按功能活性可分为抗癌肽、抗菌肽、降压肽、抗氧化肽、抗炎肽和免疫调节肽等[8],根据来源可分为天然存在的、水解蛋白质产生的和人工合成的活性肽。天然活性肽具有高稳定性和高靶标亲和力,但因技术经济性不高难以用于工业化生产;人工合成活性肽存在药效短、副作用大和成本高等特点;经酶解法和微生物发酵法水解蛋白质产生的活性肽,具有口服生物利用度高、不良反应少和安全等特点[9]。其中,酶解法所使用的蛋白酶,因酶切位点专一,只能水解含有特定氨基酸残基的蛋白原料,所以限制了水解产物中肽段的序列、长度及结构多样性[10]。此外,酶解法受限于酶解条件要求高、大规模生产设施投入大等生产因素;而微生物发酵法的核心在于菌株具有丰富的蛋白酶体系及多元酶切位点[11],通过选用不同类型微生物菌株及调控发酵条件,可使其分泌特异性蛋白酶以降解蛋白质生成多肽,或通过生物合成途径直接合成多肽,从而获得不同于酶解法的新型多肽。该法制备的多肽具有低分子质量、高生物活性等优势,为其在食品、生物医药等领域的产业化应用奠定了基础,发展前景广阔[12]。因此,微生物发酵是一种经济、可持续性的多肽制备方法[13-14]。
微生物发酵法中,不同微生物的蛋白质水解系统存在差异,致使其水解产物的功能活性表现不同。Sanjukta等[15]发现不同枯草芽孢杆菌发酵获得的2种大豆肽具有不同的生物利用度;Seo等[16]利用多种微生物水解蛋白质,获得具有抗炎、抗氧化和抑制血管紧张素转换酶(angiotensin-converting enzyme,ACE)能力的多肽。因此,微生物发酵法是制备特定活性多肽的有效途径,可作为酒糟高值化利用的解决方案。目前,酒糟发酵菌种主要包括酿酒酵母(Saccharomyces cerevisiae)、产阮假丝酵母(Candidautilis)、植物乳植杆菌(Lactiplantibacillus plantarum)、枯草芽孢杆菌(Bacillus subtilis)等,而这些研究多集中于不同菌种组合发酵白酒酒糟制备高蛋白饲料的工艺优化[17-18],鲜见利用微生物发酵制备酒糟多肽的相关报道。因此,本研究以分离自酱香型白酒酒糟的产蛋白酶菌株为研究对象,通过初筛和复筛获得具有高产蛋白酶能力的优良菌株,并通过形态学观察和分子生物学方法对其种属进行鉴定。以多肽质量浓度为响应值,采用单因素法和响应面试验优化法对双菌协同发酵条件进行优化,并进一步分析多肽的生物活性,从而实现酒糟高值化利用与生物菌种资源开发。
1 材料与方法
1.1 材料与试剂
菌株采自湖南湘窖酒业有限公司酱香型白酒酿酒车间,包括墙面、地面、机械表面及4、5、6轮次酒醅;多肽制备用酒糟取自该公司酱香型白酒酿酒车间8轮次发酵酒醅蒸馏取酒后的废弃酒糟。
L-酪氨酸、福林酚、酪素、三氯乙酸(trichloroacetic acid,TCA)、1,1-二苯基-2-三硝基苯肼(1,1-diphenyl-2-picrylhydrazyl,DPPH)、2,2′-联氮-双(3-乙基苯并噻唑啉-6-磺酸)(2,2′-azino-bis(3-ethylbenzothiazoline-6-sulfonic acid),ABTS)、马尿酰组氨酰亮氨酸(N-carbamoyl histidyl leucine,HHL)、ACE、淀粉、 α-淀粉酶、3,5-二硝基水杨酸、对硝基苯酚-α-D-吡喃半乳糖苷、α-葡萄糖苷酶、牛血清白蛋白(均为分析纯) 北京索莱宝科技有限公司;谷胱甘肽、卡托普利和、阿卡波糖(均为分析纯) 国药集团化学试剂有限公司。
富集培养基:牛肉膏1 g、蛋白胨1 g、氯化钠1.5 g、蒸馏水100 mL,121 ℃高压蒸汽灭菌20 min。
LB琼脂培养基:蛋白胨10 g、酵母膏粉5 g、氯化钠5 g、葡萄糖1 g、琼脂15 g、蒸馏水1 000 mL,121 ℃高压蒸汽灭菌15 min。LB液体培养基:LB培养基中不添加琼脂。
酵母浸出粉胨葡萄糖(yeast extract peptone dextrose,YPD)琼脂培养基:酵母浸粉20 g、葡萄糖20 g、蛋白胨10 g、琼脂20 g、蒸馏水1 000 mL,115 ℃高压蒸汽灭菌20 min。YPD液体培养基:YPD培养基中不添加琼脂。
马铃薯葡萄糖琼脂(potato dextrose agar,PDA)培养基:马铃薯浸粉300 g、葡萄糖20 g、氯霉素0.1 g、琼脂15 g、蒸馏水1 000 mL,121 ℃高压蒸汽灭菌15 min。PDA液体培养基:PDA培养基中不添加琼脂。
筛选培养基:磷酸二氢钾0.306 g、硫酸镁0.5 g、氯化锌0.014 g、磷酸氢二钠1.07 g、氯化钠0.16 g、氯化钙0.002 g、硫酸亚铁0.002 g、酪蛋白4 g、琼脂20 g、蒸馏水1 000 mL,121 ℃高压蒸汽灭菌20 min。
1.2 仪器与设备
UV-2600紫外-可见分光光度计 日本岛津公司;HR-T16M台式高速冷冻离心机 湖南赫西仪器装备有限公司;PE28 pH计、UV5Nano超微量分光光度计 梅特勒-托利多仪器(上海)有限公司;DH-360恒温培养箱、YA28X6T全自动灭菌锅 北京科伟永兴仪器有限公司;PowerPac HC电泳仪 美国Bio-Rad公司; GH-420隔水培养箱 上海雅荣生化设备仪器有限公司;DZKW-4电热恒温水浴锅 北京中科奥博科技有限公司;YH-M100001电子分析天平 永康市五鑫衡器有限公司;GWA-UN1超纯水器 北京普析通用仪器有限责任公司,ÄKTA Pure 25蛋白质分离纯化层析系统瑞典Cytiva公司。
1.3 方法
1.3.1 产蛋白酶菌株筛选
产蛋白酶菌株富集培养:参考郑莹等[19]的方法,称取5 g酱香型白酒酒糟样品置于装液量20 mL/250 mL的0.9 g/100 mL生理盐水中,30 ℃、200 r/min振荡培养30 min;取1 mL菌悬液于装液量为50 mL/250 mL富集培养基中,相同条件培养1 d,用接种针挑取形态不同的单菌落转接至斜面培养基上,-20 ℃冰箱保存。
产蛋白酶菌株初筛:将保存菌株接种至100 mL对应液体培养基上,37 ℃培养72 h制备种子液。在筛选培养基中加入200 μL活化后的种子液,均匀涂布至培养基表面,37 ℃培养72 h后,用游标卡尺测定水解圈直径(D)与菌落直径(d),计算二者比值(D/d),挑选D/d值大于2.0的菌株进入蛋白酶活复筛阶段。
产蛋白酶菌株复筛:将初筛菌株接种至100 mL对应液体培养基中,37 ℃振荡培养72 h后,12 000 r/min离心10 min,得粗酶液。
1.3.2 高产蛋白酶菌株鉴定
形态学鉴定:分别将复筛获得的2株高产蛋白酶菌株划线接种至对应固体培养基上,置于28 ℃恒温培养箱中培养72 h,利用光学显微镜观察菌落形态(颜色、质地、凸起等)、细胞形态(形状、大小、产孢结构等),对菌株进行初步分类。
分子生物学鉴定:将菌悬液送至生工生物工程(上海)股份有限公司,委托其进行内转录间隔区(internal transcribed spacer,ITS)基因测序,基于BLAST将测序结果与NCBI数据库中的模式菌株ITS基因序列进行同源性比对,获取高相似度序列,构建系统发育树,确定目的菌株种属。
1.3.3 末轮次酒糟多肽制备
酒糟样品经真空干燥后研磨成粉,过40目筛。参考杨淼等[20]的方法并略作调整,末轮次酒糟粉末与蒸馏水按质量体积比1∶10(g/mL)混合,向体系中添加1 g葡萄糖作为碳源,定容至100 mL并置于250 mL锥形瓶内,灭菌(121 ℃、20 min),冷却,接种10%(V/V)菌种种子液(2菌株按体积比1∶1混合,其中酿酒酵母活菌数0.1×107~1.0×107 CFU/mL,米曲霉0.1×106~1.0×106孢子/mL),发酵后离心(8 000 r/min、10 min),取上清液,30 kDa超滤,取滤液真空冷冻干燥,即得多肽冻干粉。多肽冻干粉经纯水溶解后,采用蛋白质分离纯化层析系统完成多肽组分的初步分离。分离条件:Superdex Peptide凝胶柱(300 mm×10 mm);波长220 nm;流速0.5 mL/min,按出峰时间收集多肽组分。
1.3.4 多肽制备工艺单因素试验
按末轮次酒糟多肽制备工艺流程开展单因素试验,设定混菌发酵条件为:混菌种子液接种量(3%、5%、7%、9%、11%)、初始pH值(4.2、4.6、5.0、5.4、5.8)、发酵温度(25、27、29、31、33 ℃)、发酵时间(80、88、96、104、112 h)、米曲霉与酿酒酵母接种比例(0∶1、1∶0、1∶3、1∶2、1∶1、2∶1、3∶1,V/V);发酵结束后,分别测定滤液多肽质量浓度,以确定各单因素适宜水平。
1.3.5 多肽制备工艺响应面试验
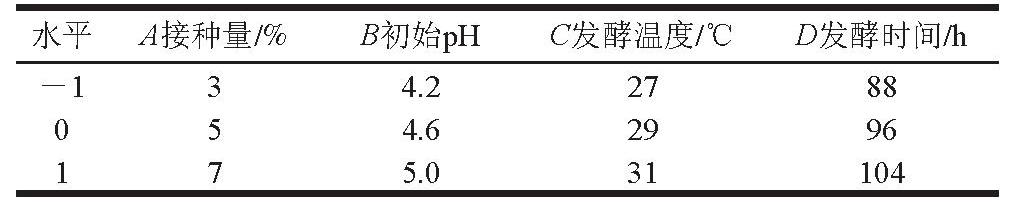
基于单因素试验与接种比例结果,利用响应面法对末轮次酒糟多肽制备工艺进行优化,将接种量(A)、初始pH值(B)、发酵温度(C)、发酵时间(D)分别设置3个水平,以多肽质量浓度(Y)为响应值,使用Design-Expert 13.0软件设计Box-Behnken试验,构建二次回归数学模型。响应面设计因素水平见表1。
表1 液态发酵制备多肽响应面试验因素水平
Table1 Factor and level design of response surface tests for peptide preparation via liquid-state fermentation
水平A接种量/%B初始pHC发酵温度/℃D发酵时间/h-134.22788054.62996175.031104
1.3.6 多肽质量浓度及蛋白酶活性测定
参考张立娟等[21]的方法,采用双缩脲法测定样品多肽质量浓度。取超滤膜滤液5 mL,加入5 mL 10%(m/m)TCA,充分混匀后,静置10 min,8 000 r/min离心10 min,去除大分子蛋白,1 mL样品溶液加入4 mL双缩脲试剂。1 mL纯水和4 mL双缩脲试剂作空白调零,室温反应30 min,于540 nm波长处测定吸光度,以吸光度(y)为纵坐标,牛血清白蛋白质量浓度(x,mg/mL)为横坐标,绘制标准曲线(y=0.047 2x+0.009 3,R2=0.997 9),基于此计算滤液多肽质量浓度。
依据GB/T 23527.1—2023《酶制剂质量要求 第1部分:蛋白酶制剂》测定蛋白酶活性。以L-酪氨酸制作标准曲线并建立回归方程,以吸光度(y)为纵坐标, L-酪氨酸质量浓度(x,mg/mL)为横坐标,回归方程为y=0.012x-0.006 1(R2=0.997 4)。以1 mL液体酶在40 ℃、一定pH值条件下,1 min水解酪素产生1 μg酪氨酸为1个酶活性单位(U/mL);依据GB 5009.5—2025《食品安全国家标准 食品中蛋白质的测定》中的凯氏定氮法测定蛋白质含量。
1.3.7 抗氧化活性测定
DPPH自由基清除能力测定参照本实验室已建立的方法[22]并稍作修改。取500 µL 样品与500 µL 0.2 mmol/L DPPH自由基溶液(95%乙醇溶解)混合,室温避光反应30 min后,在517 nm波长处测定吸光度。以谷胱甘肽为阳性对照,DPPH自由基清除率按式(1)计算:
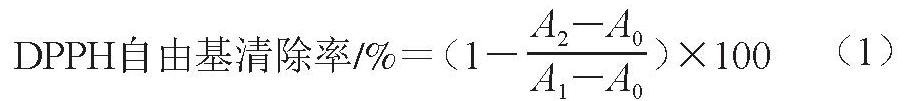
式中:A0为500 µL样品在不含DPPH自由基时的吸光度;A1为95%乙醇(不含多肽)在DPPH自由基存在下的吸光度;A2为500 µL样品在DPPH自由基存在下的吸光度。
ABTS阳离子自由基清除能力测定参照本实验室已建立的方法[22],制备ABTS阳离子自由基原液(含7 mmol/L ABTS和2.45 mmol/L过硫酸钾),避光放置14 h。将ABTS阳离子自由基原液与0.5 mmol/L磷酸盐缓冲液(pH 7.4)混合、稀释,使其在734 nm波长处的吸光度为0.70±0.05,即为ABTS阳离子自由基工作液。取200 µL样品与3 mL ABTS阳离子自由基工作液混合,避光反应6 min后,测定734 nm波长处吸光度。以谷胱甘肽为阳性对照,ABTS阳离子自由基清除率按式(2)计算:
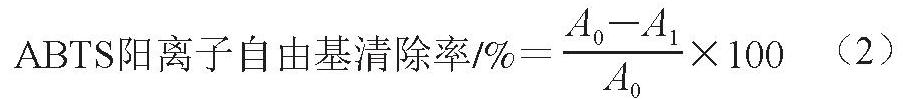
式中:A0为200 µL缓冲液与3 mL ABTS阳离子自由基工作液的吸光度;A1为200 µL样品与3 mL ABTS阳离子自由基工作液的吸光度。
1.3.8 ACE抑制率测定
ACE抑制率测定参照Lund等[23]的方法并略作调整。用100 mmol/L硼酸盐缓冲液配制6.5 mmol/L HHL溶液,吸取125 μL于1.5 mL EP管中,加入50 μL样品溶液,37 ℃预热5 min后,立即与50 μL ACE溶液(0.02 U/mL)混合,37 ℃恒温水浴反应60 min,加入125 μL 1 mol/L HCl终止反应,再加入750 μL乙酸乙酯抽提马尿酸,上下颠倒振荡1 min,500×g离心5 min。吸取500 μL上清液转移至新EP管中,60 ℃干燥至乙酸乙酯完全挥发,加入1.5 mL纯水充分溶解管壁残留的马尿酸抽提物,在228 nm波长处测定吸光度,每个样品平行测定3次,取平均值。以硼酸盐缓冲液作为对照组、卡托普利为阳性对照,空白组预先加入HCl溶液终止反应,ACE抑制率按式(3)计算:
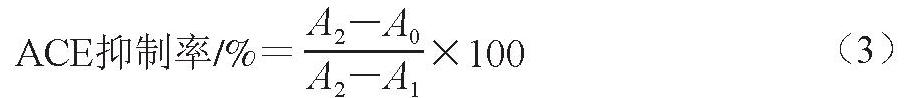
式中:A0为实验组吸光度;A1为空白组吸光度;A2为对照组吸光度。
1.3.9 α-淀粉酶与α-葡萄糖苷酶抑制率测定
α-淀粉酶抑制率测定参照罗钧匀等[24]的方法。样品管中加入300 μL样品和400 μL 2 U/mL α-淀粉酶溶液,样品空白管以磷酸缓冲液替代α-淀粉酶溶液,空白试管以磷酸缓冲液替代样品。37 ℃孵育10 min后,各试管加入300 μL 5 g/100 mL可溶性淀粉溶液,振荡混匀后37 ℃孵育15 min,加入2 mL 3,5-二硝基水杨酸溶液,煮沸10 min,冷却后定容至10 mL,在540 nm波长处测定吸光度。α-淀粉酶抑制率按式(4)计算:
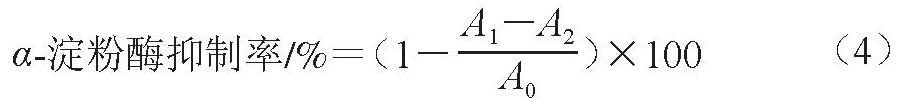
式中:A0为空白管吸光度;A1为样品管吸光度;A2为样品空白管吸光度。
α-葡萄糖苷酶抑制率测定参照罗钧匀等[24]的方法。各孔加50 μL样品和100 μL 0.2 U/mL α-葡萄糖苷酶溶液,样品空白孔以磷酸缓冲液代替α-葡萄糖苷酶溶液,空白孔以磷酸缓冲液代替样品,孵育10 min后,各孔各加50 μL 7.5 mmol/L对硝基苯酚-α-D-吡喃半乳糖苷溶液,振荡混匀,37 ℃孵育25 min后加50 μL 0.2 mol/L碳酸钠终止反应,在405 nm波长处测定吸光度,以阿卡波糖为阳性对照,α-葡萄糖苷酶抑制率按式(5)计算:
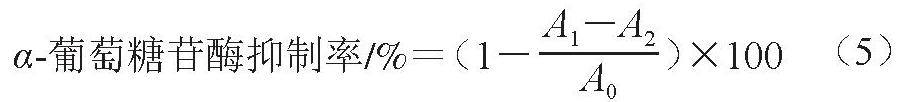
式中:A0为空白孔吸光度;A1为样品孔吸光度;A2为样品空白孔吸光度。
1.4 数据处理
采用MEGA 12.0软件中的邻接法建立系统发育树。每组实验重复3次,结果以x±s表示,采用Excel 2021软件进行基础数据整理与描述性统计,采用SPSS Statistics 26.0软件进行单因素方差分析,P<0.05表示差异显著,采用Origin 2024绘图。
2 结果与分析
2.1 高产蛋白酶菌株的筛选
2.1.1 高产蛋白酶菌株的初筛
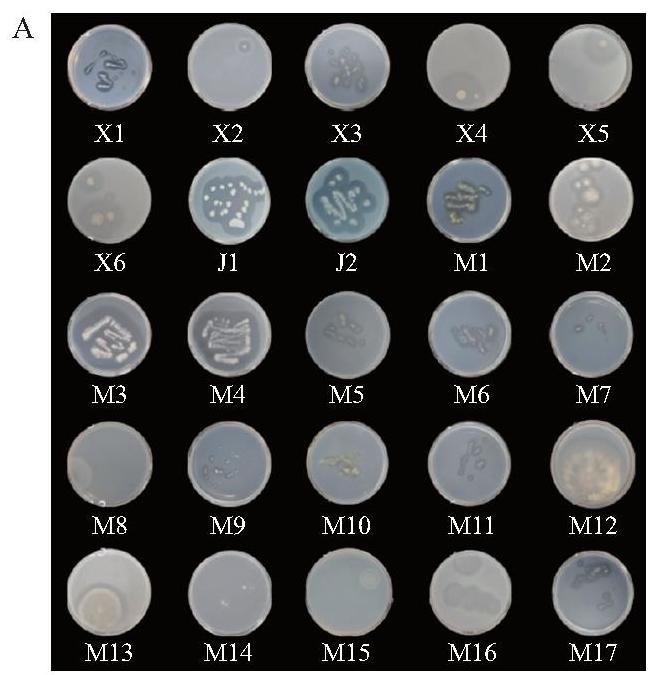
从酱香型白酒酒糟中共分离获得25株菌株。由图1A可知,不同菌株的水解圈大小不同,表明不同菌株产蛋白酶能力存在差异;由图1B可知,D/d值大于2.0的菌株共13株,这些菌株具有较强的蛋白酶分泌能力。
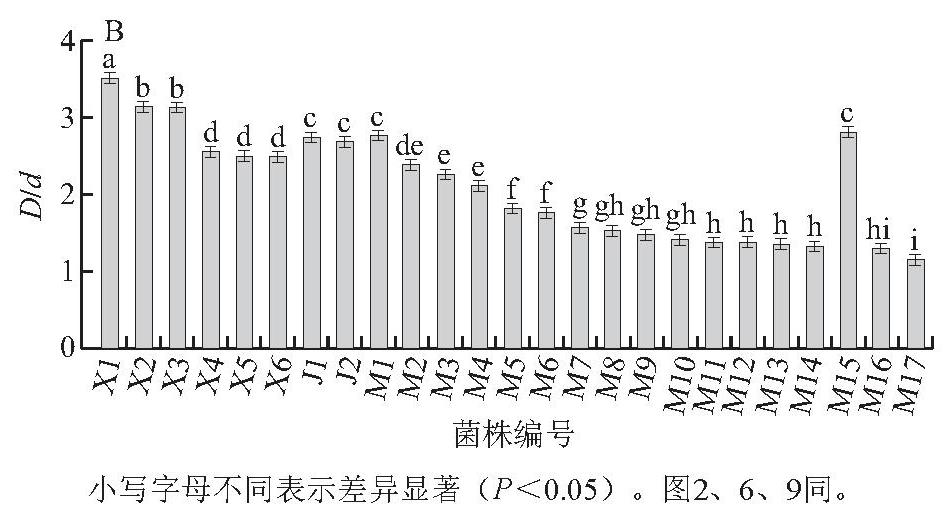
图1 25株初筛菌株的水解圈(A)及D/d值(B)
Fig.1 Hydrolysis circles (A) and ratios of hydrolysis circle diameter to colony diameter (B) of 25 primary screened strains
2.1.2 高产蛋白酶菌株的复筛
进一步对13株初筛菌株进行蛋白酶活性复筛。由图2可知,M15菌株蛋白酶活性最高,达(671.07±0.40)U/mL;J1菌株次之,为(466.78±0.10)U/mL,二者蛋白酶活性均显著高于其他菌株(P<0.05)。黄蓉等[25]发现,酿酒酵母蛋白酶活性可达(481.23±0.92)U/mL,与本研究筛选的酿酒酵母一样,均为高蛋白酶活酵母。因此,选择菌株M15和J1作为目标菌株进行后续研究。
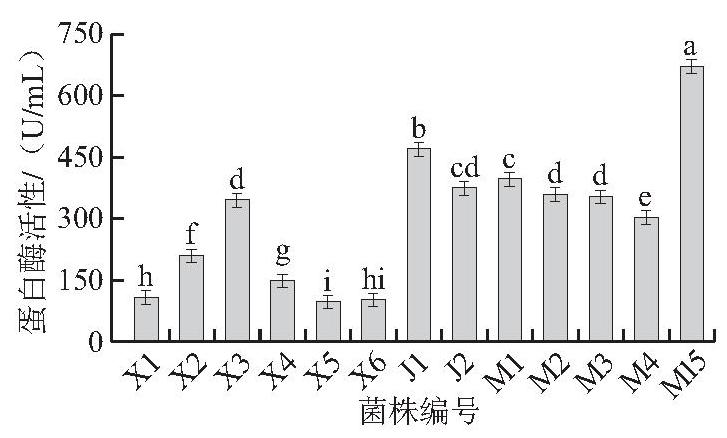
图2 13株产蛋白酶菌株所产蛋白酶活性
Fig.2 Protease activities of 13 protease-producing strains
2.2 高产蛋白酶菌株的鉴定
2.2.1 形态学观察
由图3A可知,菌株M15菌落呈典型黄绿色,隆起状,表面被覆厚密的气生菌丝,质地为絮状,为曲霉属真菌的菌落典型表型;由图3B可知,菌株M15具有较长的孢梗茎,顶囊结构较显著,产孢结构稀疏,排列为有规则的放射状,分生孢子形态较规则,与米曲霉(Aspergillus oryzae)的分类学形态特征完全吻合。
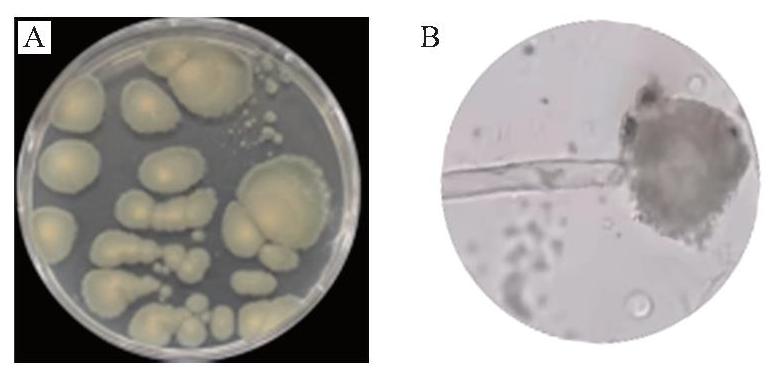
图3 菌株M15的菌落形态(A)和细胞形态(B)
Fig.3 Colonial morphology (A) and cellular morphology (B) of strain M15
由图4A可知,J1菌落呈乳白色,菌落形态为扁平隆起,边缘圆滑,表面光滑湿润而质地柔润,为典型的奶油状菌落,无气生菌丝或绒毛,为酵母类菌株的菌落典型表型;由图4B可知,菌株J1细胞为圆形或卵圆形,细胞大小均匀一致,细胞轮廓清晰,胞质较匀,部分细胞可见出芽痕,与酵母属菌株的典型鉴定特征完全吻合。
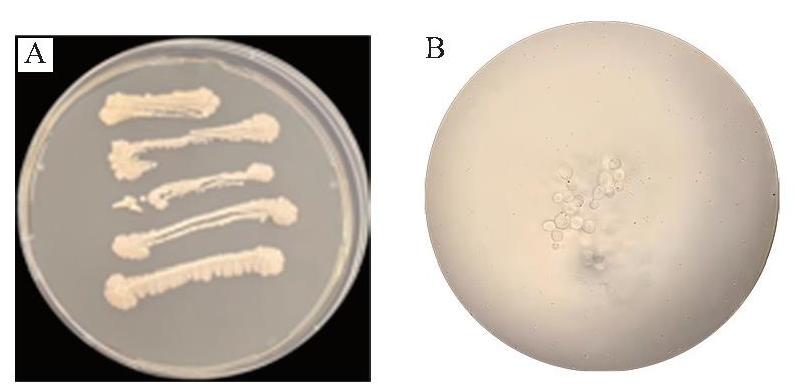
图4 菌株J1的菌落形态(A)和细胞形态(B)
Fig.4 Colonial morphology (A) and cellular morphology (B) of strain J1
2.2.2 分子生物学鉴定
由图5A可知,M15与A. oryzae TN184AUR18(MH681104.1)同源性为99%以上,亲缘关系最为密切,结合形态学结果,最终鉴定菌株M15为 A. oryzae;由图5B可知,J1与S. cerevisiae AUMC 10229(KX023222.1)同源性最高,结合形态学特征,鉴定菌株J1为S. cerevisiae。
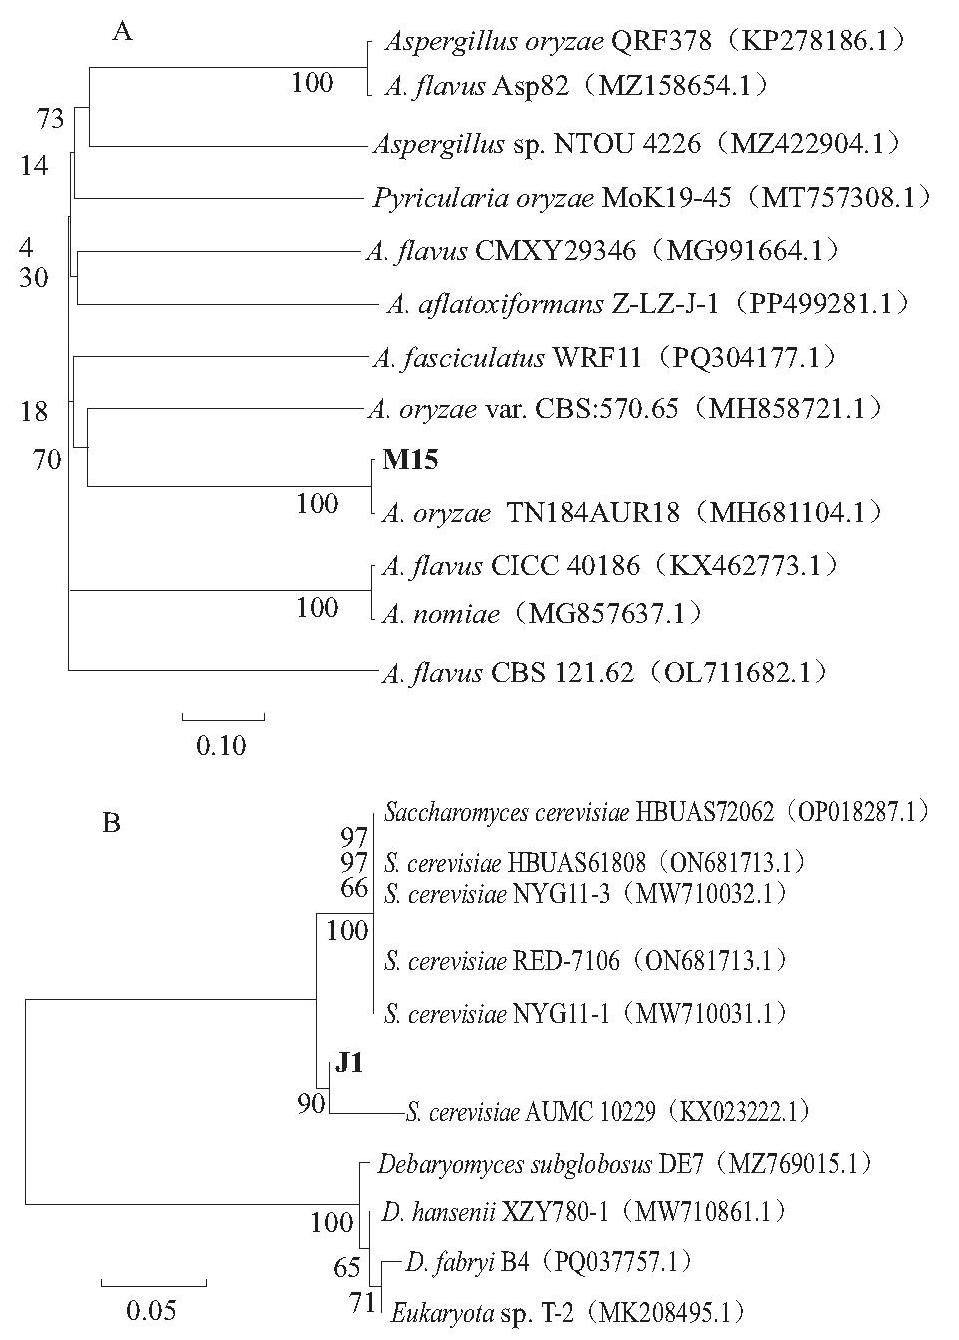
图5 基于ITS基因序列菌株M15(A)与J1(B)的系统发育树
Fig.5 Phylogenetic trees of strains M15 (A) and J1 (B) constructed based on ITS gene sequences
2.3 混菌发酵末轮次酒糟制备多肽的单因素试验结果
由图6A可知,当接种量升至5%时,多肽质量浓度达到最大值,为(22.08±0.21)mg/mL,接种量过低时,发酵不充分;接种量过高时,代谢负荷加重,虽加速发酵进程,但营养消耗增加,导致代谢产物积累减少[26];由图6B可知,初始pH 4.6时多肽质量浓度达到峰值,为(22.01±0.23)mg/mL,说明过酸或过碱均会影响菌种代谢和产蛋白酶能力[27];由图6C可知,发酵温度29 ℃时,多肽质量浓度为(21.98±0.22)mg/mL,发酵温度过高或过低均不利于菌株生长,进而影响发酵效果[27];由图6D可知,发培养时间延长至96 h时,多肽质量浓度达到峰值,为(22.03±0.21)mg/mL,后期可能因底物耗尽或代谢副产物积累导致产量下降[28];从图6E可知,不同米曲霉与酿酒酵母接种比例对多肽含量影响显著,随米曲霉占比增加,多肽质量浓度呈先升高后降低的趋势,在米曲霉与酿酒酵母接种比例为1∶1时,多肽质量浓度达到峰值,为(22.02±0.21)mg/mL,表明该比例下两菌协同作用最充分,能高效降解酒糟蛋白并积累多肽;米曲霉比例过低时,产酶不足,比例过高则易因营养竞争或代谢抑制导致多肽得率下降,因此1∶1为最优接种比例。
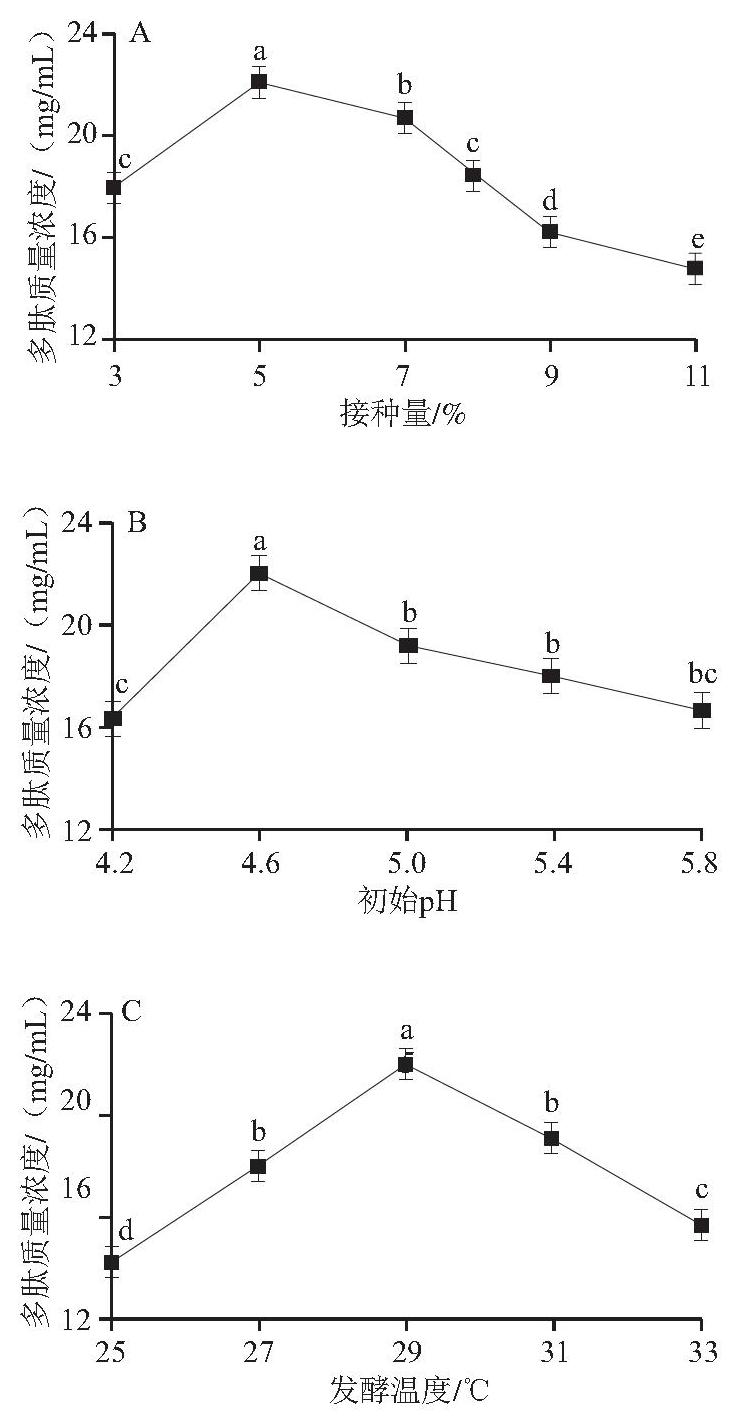
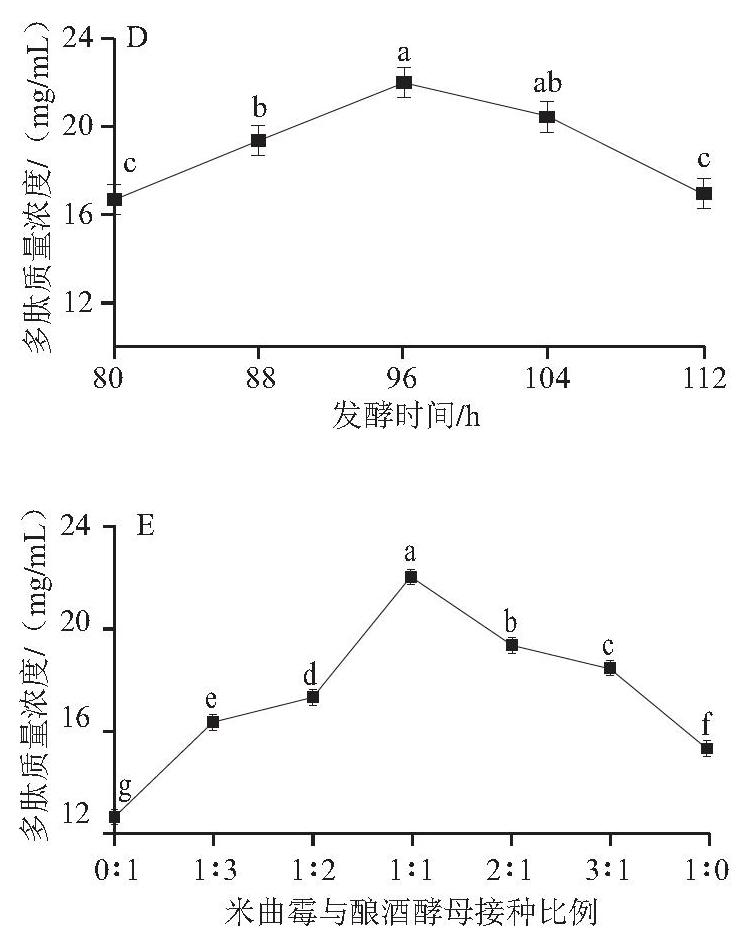
图6 接种量(A)、初始pH值(B)、发酵温度(C)、发酵时间(D)及 米曲霉与酿酒酵母接种比例(E)对多肽质量浓度的影响
Fig.6 Effects of inoculation dosage (A), initial pH (B), fermentation temperature (C), fermentation time (D), and inoculation volume ratio of A. oryzae to S. cerevisiae (E) on peptide content
2.4 混菌发酵末轮次酒糟制备多肽的响应面试验结果
2.4.1 响应面优化与模型分析
基于单因素试验结果,采用Box-Behnken模型进行响应面优化分析。如表2所示,共开展29组混菌发酵实验,通过回归拟合得到多肽质量浓度与4个因素之间的二次多项式回归方程:Y=22.45-0.77A-1.03B-1.96C+0.27AB+0.34AC+0.07AD+0.66BC+0.46BD+0.07CD-0.99A2-2.08B2-2.01C2-1.09D2。
表2 响应面试验设计及结果
Table2 Experimental design and results of response surface methodology
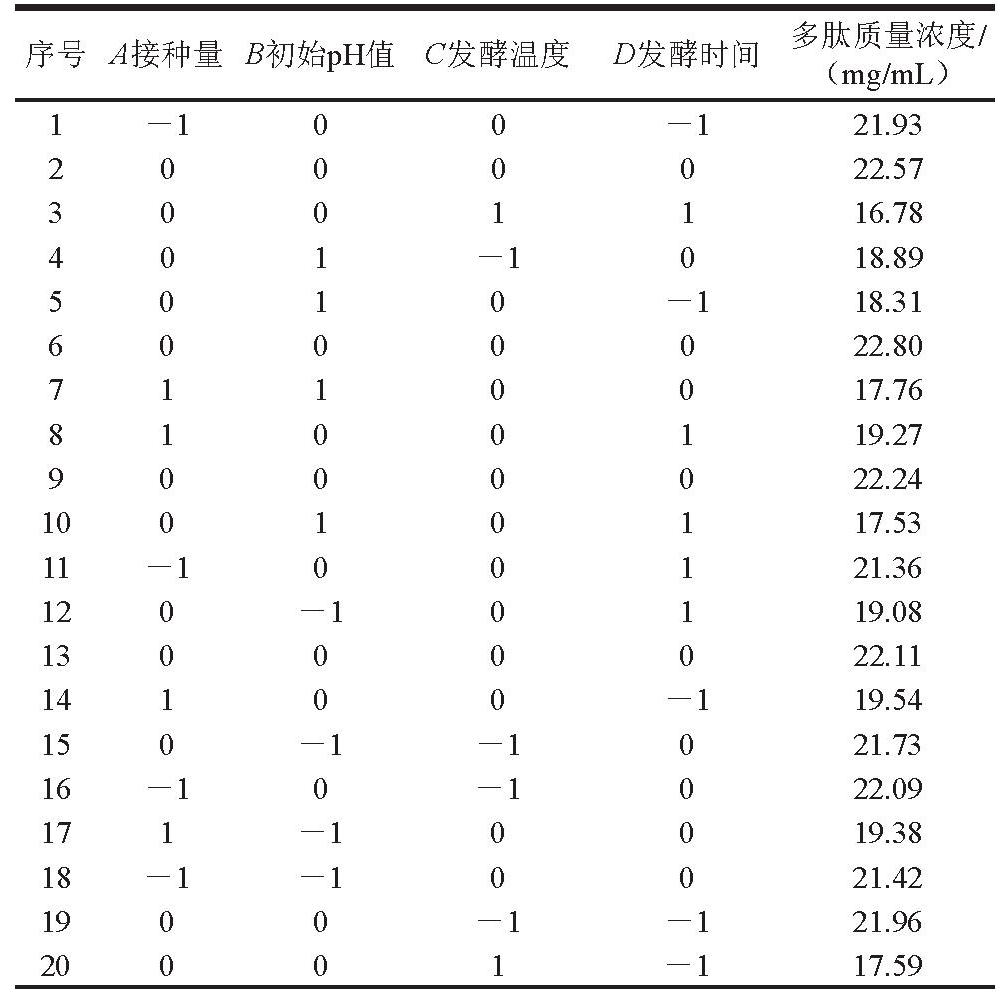
序号A接种量B初始pH值C发酵温度D发酵时间多肽质量浓度/(mg/mL)1-100-121.932000022.573001116.78401-1018.895010-118.316000022.807110017.768100119.279000022.2410010117.5311-100121.36120-10119.0813000022.1114100-119.54150-1-1021.7316-10-1022.09171-10019.3818-1-10021.421900-1-121.9620001-117.59
续表2
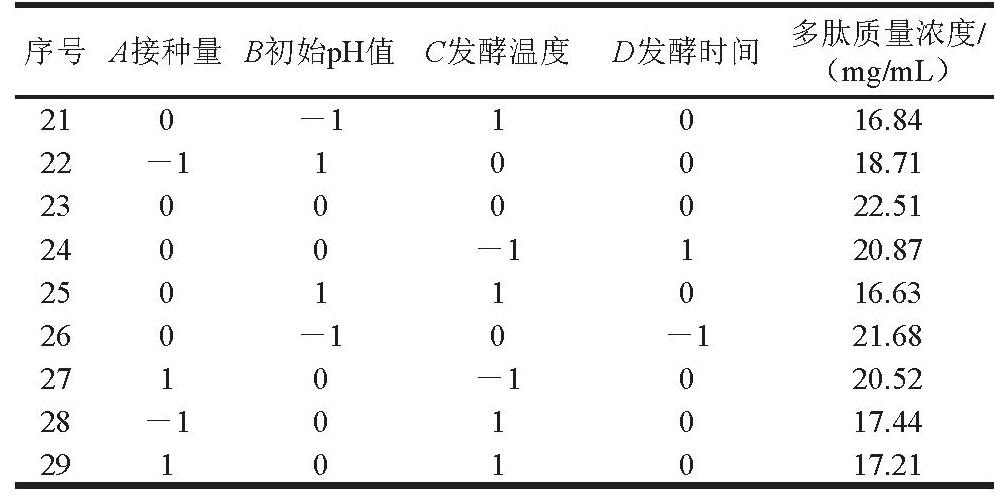
23000022.512400-1120.8725011016.6328-101017.4429101017.21序号A接种量B初始pH值C发酵温度D发酵时间多肽质量浓度/(mg/mL)210-11016.8422-110018.71260-10-121.682710-1020.52
由表3可知,模型F=39.31,且P<0.000 1,表明该回归模型极显著,能有效反映接种量、初始pH值、发酵温度和培养时间与多肽质量浓度之间的关系。同时,失拟项P=0.110 8>0.05,说明模型拟合较好,失拟项不显著。模型决定系数(R2)=0.975,表明实验值与模型拟合值相关性极强;校正决定系数( )=0.951,表明模型可解释95.1%的实验数据响应值变化,进一步验证了模型的可靠性,可用于后续工艺参数优化分析。由P值可知,BC交互作用显著,其他交互作用均不显著,表明初始pH与发酵温度交互作用对指标影响更为关键。
表3 响应面试验回归模型方差分析
Table3 Analysis of variance for regression model of response surface tests
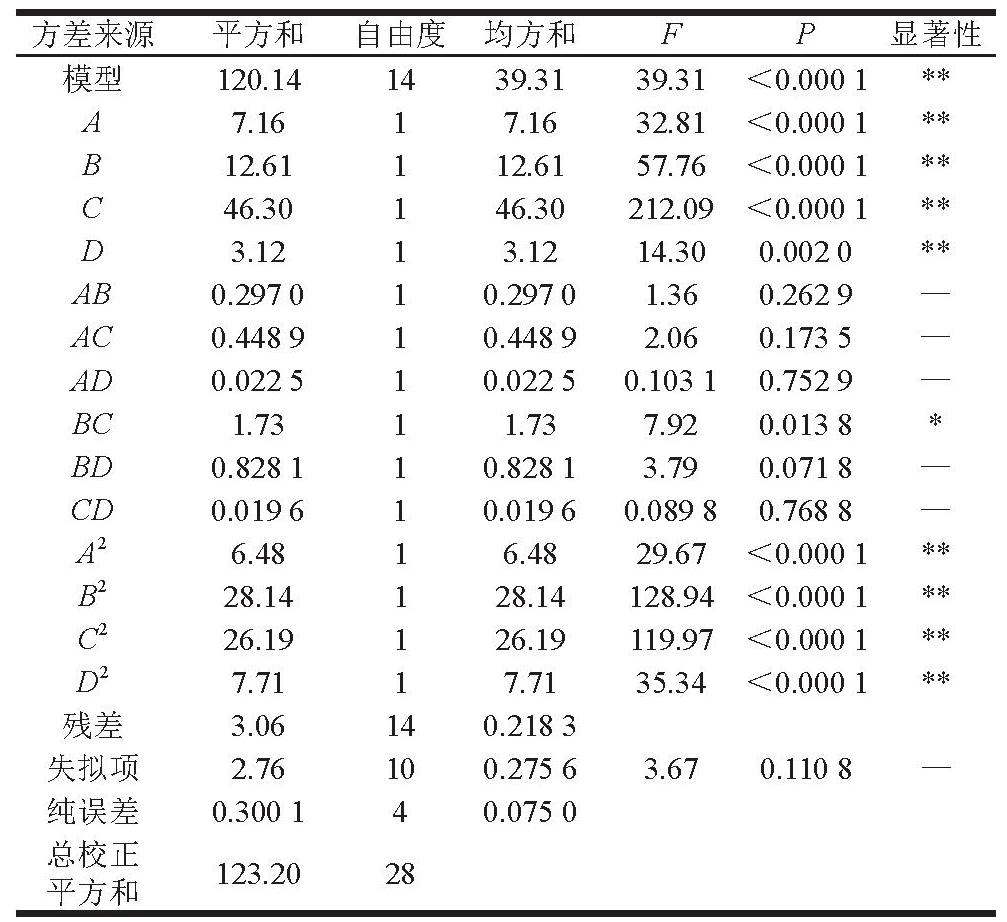
B12.61112.6157.76<0.000 1**AB0.297 010.297 01.360.262 9—BC1.7311.737.920.013 8*方差来源平方和自由度均方和FP显著性模型120.141439.3139.31<0.000 1**A7.1617.1632.81<0.000 1**C46.30146.30212.09<0.000 1**D3.1213.1214.300.002 0**AC0.448 910.448 92.060.173 5—AD0.022 510.022 50.103 10.752 9—BD0.828 110.828 13.790.071 8—CD0.019 610.019 60.089 80.768 8—A26.4816.4829.67<0.000 1**B228.14128.14128.94<0.000 1**C226.19126.19119.97<0.000 1**D27.7117.7135.34<0.000 1**残差3.06140.218 3失拟项2.76100.275 63.670.110 8—纯误差0.300 140.075 0总校正平方和123.2028
注:—.不显著(P≥0.05);*.显著(P<0.05);**.极显著(P<0.01)。
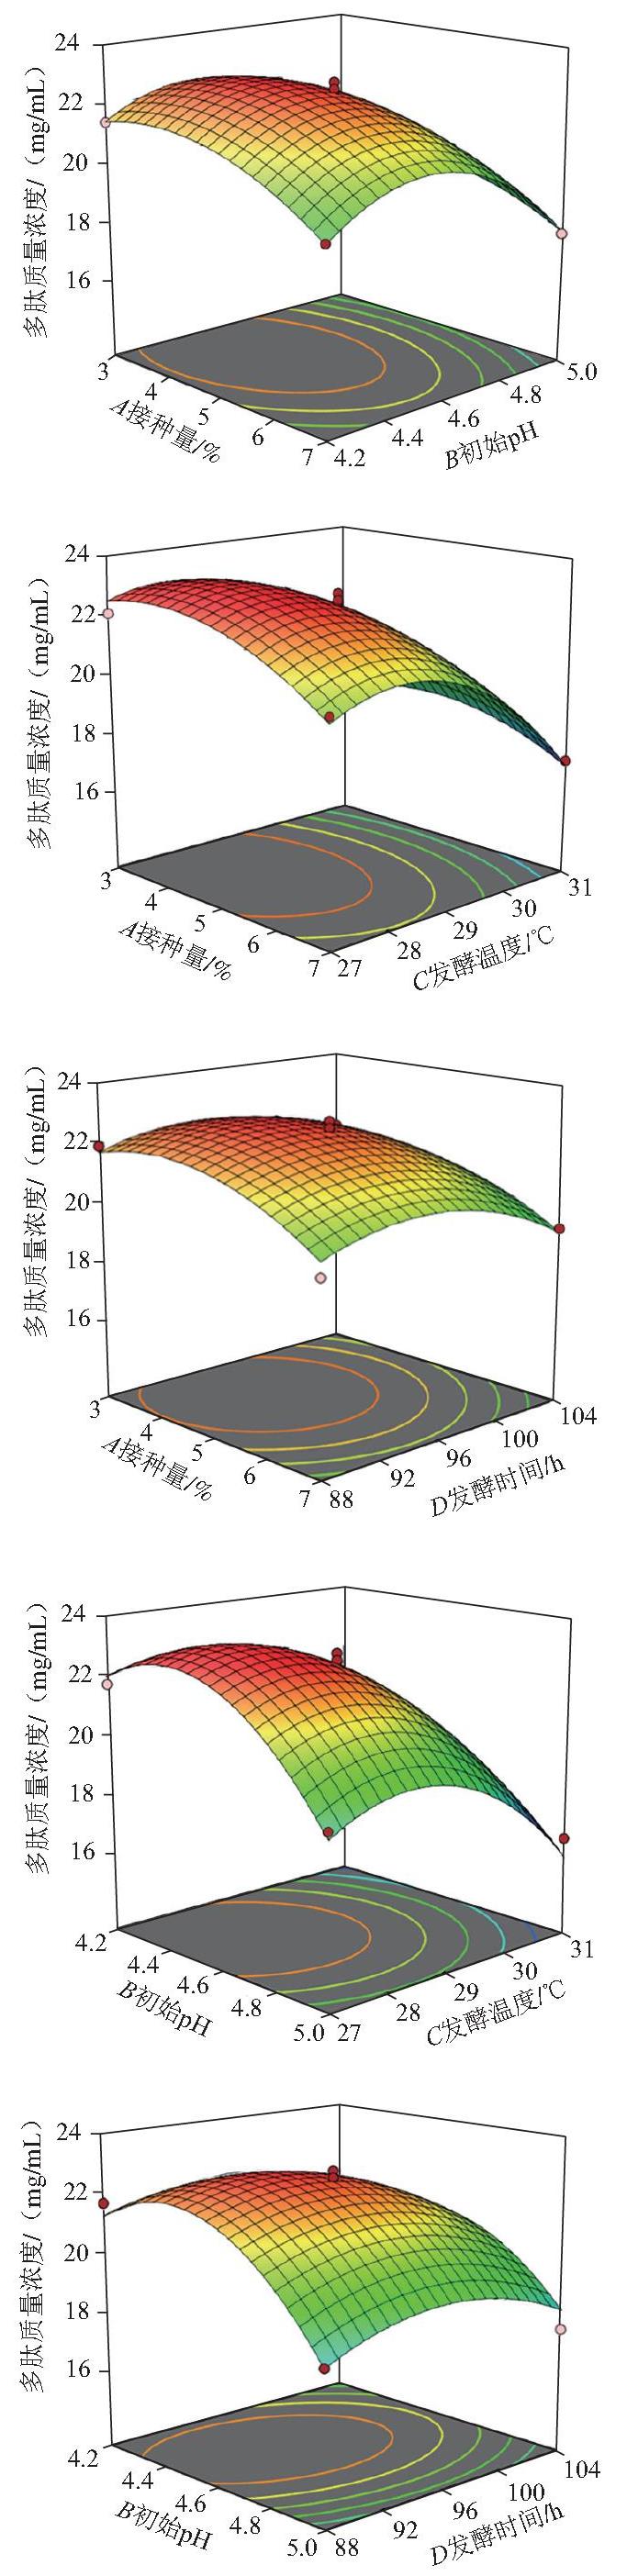
响应面图曲面越陡峭,因素交互作用对多肽质量浓度影响越显著,等高线越密集、越接近椭圆形表示因素交互作用对多肽质量浓度影响越显著[29]。如图7所示,初始pH值和发酵温度的交互作用对应的等高线为典型椭圆形,说明其交互作用较强,与方差分析结果一致(表3)。
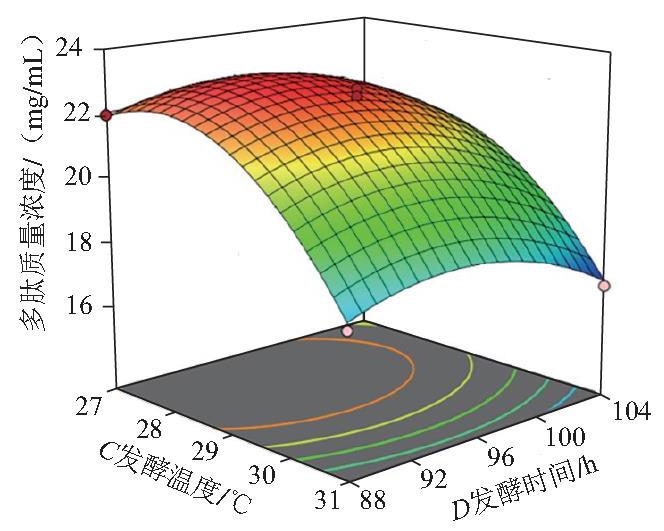
图7 各因素间交互作用对多肽质量浓度影响的响应曲面及等高线图
Fig.7 Response surface and contour plots illustrating the interactive effects of various factors on peptide concentration
2.4.2 最优条件的确定及验证
通过Design-Expert 13.0软件对响应面模型进行优化求解,得到最佳发酵工艺参数:接种量4.98%、初始pH 4.53、发酵温度27.74 ℃、发酵时间95.57 h。考虑到实际可操作性,将其修正为:接种量5%、初始pH 4.5、发酵温度28 ℃、发酵时间96 h。在该最优条件下进行3次验证实验,多肽质量浓度实测值为23.11 mg/mL,与模型理论预测值(22.45 mg/mL)相对误差仅为2.94%,证实该回归模型的拟合效果良好,具备较高的可靠性与实用价值。
2.4.3 最优条件下混菌发酵对酒糟蛋白质、多肽含量及蛋白酶活性的影响
由图8可知,在最优发酵条件下,混菌发酵过程中蛋白酶活性随菌体生长先升后降,于72 h达到峰值,蛋白质量浓度随发酵时间延长持续降低,多肽质量浓度则不断积累并在96 h达到最大值(23.09 mg/mL);混菌发酵蛋白酶活性虽略高于米曲霉单菌,但多肽产量更高,原因在于两菌协同生长使发酵环境更稳定、底物利用更充分,最终提升多肽生成与积累效率。
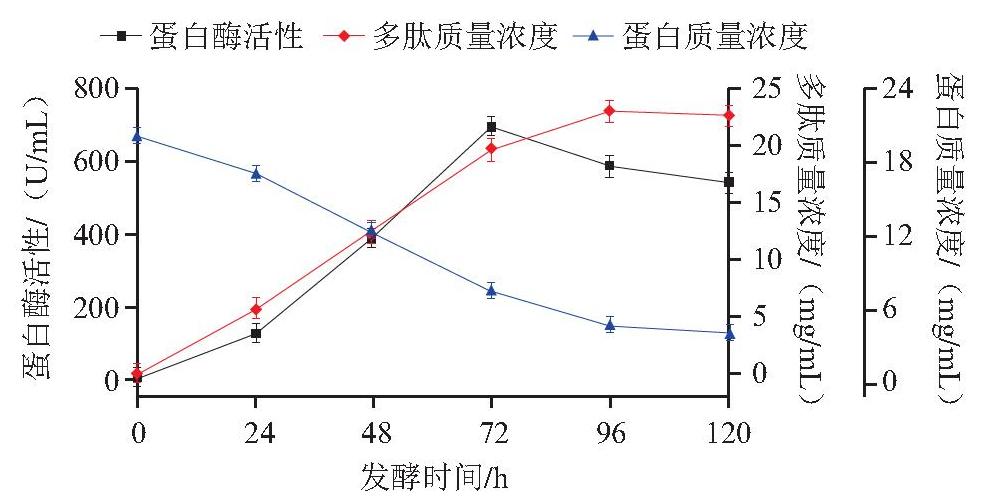
图8 最优条件下混菌发酵对酒糟蛋白质、多肽含量及蛋白酶活性的影响
Fig.8 Effects of mixed-culture fermentation under optimized conditions on protein content, peptide content and protease activity of distillers’ grains
2.5 末轮次酒糟多肽生物活性分析
如图9A所示,末轮次酒糟多肽对DPPH自由基与ABTS阳离子自由基的半抑制浓度(half maximal inhibitory concentration,IC50)分别为0.11、0.14 mg/mL,与阳性对照谷胱甘肽(DPPH自由基IC50:0.10 mg/mL,ABTS阳离子自由基IC50:0.15 mg/mL)水平相当,表明其抗氧化活性强。如图9B所示,多肽ACE抑制活性(IC50= 62.12 μg/mL)与卡托普利(IC50=57.2 μg/mL)无显著差异,与前期获得的灵芝菌丝多肽ACE抑制活性(IC50=62.50 μg/mL)[30]相近;如图9C所示,多肽对α-葡萄糖苷酶的IC50为16.0 μg/mL,对α-淀粉酶的IC50为2.1 μg/mL,与阳性对照阿卡波糖(α-葡萄糖苷酶IC50:15.0 μg/mL、α-淀 粉酶IC50:2.2 μg/mL)活性接近;多肽通过竞争性结合 α-葡萄糖苷酶/淀粉酶活性位点,阻断碳水化合物酶解;碱性氨基酸与酶活性中心的静电相互作用可增强其亲和力,短肽的空间适配性使其抑制活性与阿卡波糖接近,可有效延缓葡萄糖吸收。由此可见,本研究中制备的末轮次酒糟多肽有望应用于功能性食品与健康产品开发。
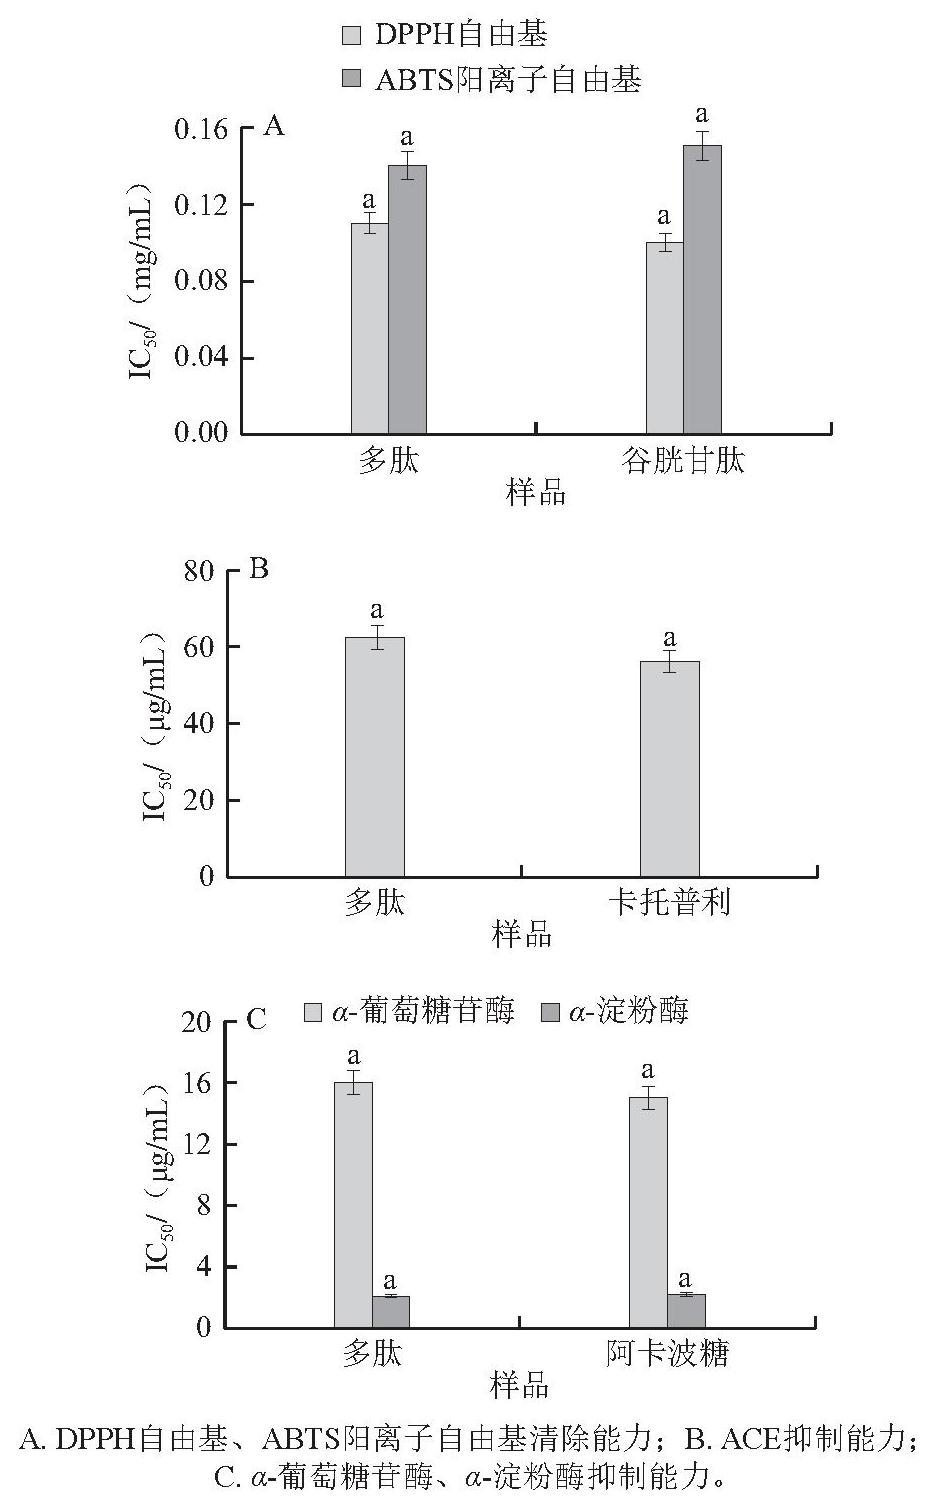
图9 末轮次酒糟多肽的生物活性
Fig.9 Bioactivity of peptides extracted from final-round distillers’ grains
3 结 论
本研究采用酱香型白酒末轮次酒糟为原料,分别用水解圈初筛法和蛋白酶活性复筛法筛选出2株高产蛋白酶菌株(M15和J1),基于形态学观察和分子生物学鉴定为A. oryzae和S. cerevisiae,蛋白酶活性分别为(671.07±0.40)U/mL和(466.78±0.10)U/mL。以多肽质量浓度为响应值,采用单因素试验和Box-Behnken响应面法优化混菌发酵工艺,最佳条件为:接种量5%、初始pH 4.5、发酵温度28 ℃、发酵时间96 h、米曲霉与酿酒酵母接种比例1∶1,多肽质量浓度为23.11 mg/mL,验证实验显示回归模型拟合可靠;生物活性检测结果表明,该多肽活性与阳性对照谷胱甘肽、卡托普利、阿卡波糖相近,具有潜在的抗氧化、降血压和降血糖活性,因而验证了混菌发酵制备多肽的可行性,为开发酒糟多肽及功能性食品提供理论支持。
[1] Liu Keshun. Chemical composition of distillers grains, a review[J].Journal of Agricultural and Food Chemistry, 2011, 59(5): 1508-1526.DOI:10.1021/jf103512z.
[2] Duan Jiawen, Yang Shiqi, Li Honghua, et al. Why the key aroma compound of soy sauce aroma type Baijiu has not been revealed yet?[J]. LWT-Food Science and Technology, 2022, 154: 112735.DOI:10.1016/j.lwt.2021.112735.
[3] 陶雪, 吕佳顺, 许华杰, 等. 酒糟综合利用研究进展及茅台实践[J]. 中国酿造, 2023, 42(6): 22-27. DOI:10.11882/j.issn.0254-5071.2023.06.005.
[4] 汪锦, 朱青, 孔小勇. 白酒酿造副产物资源化利用技术研究进展[J].酿酒科技, 2025(1): 97-102. DOI:10.13746/j.njkj.2024023.
[5] 曾庆儒, 谢玲, 龚小会, 等. 白酒酒糟在不同领域综合利用的研究进展[J]. 酿酒, 2025, 52(1): 47-52. DOI:10.3969/j.issn.1002-8110.2025.01.013.
[6] Duca F A, Zaved Waise T M, Peppler W T, et al. The metabolic impact of small intestinal nutrient sensing[J]. Nature Communications, 2021,12: 903. DOI:10.1038/s41467-021-21235-y.
[7] 何帮林, 赵秀娟, 王洪荣. 生物活性肽的功能和应用研究进展[J].中国饲料, 2022(24): 12-16. DOI:10.15906/j.cnki.cn11-2975/s.2022020027-11.
[8] Xu Qingbiao, Hong Hui, Wu Jianping, et al. Bioavailability of bioactive peptides derived from food proteins across the intestinal epithelial membrane: a review[J]. Trends in Food Science &Technology, 2019, 86: 399-411. DOI:10.1016/j.tifs.2019.02.050.
[9] Je J Y, Qian Zhongji, Byun H G, et al. Purification and characterization of an antioxidant peptide obtained from tuna backbone protein by enzymatic hydrolysis[J]. Process Biochemistry, 2007, 42(5): 840-846.DOI:10.1016/j.procbio.2007.02.006.
[10] Salampessy J, Reddy N, Kailasapathy K, et al. Functional and potential therapeutic ACE-inhibitory peptides derived from bromelain hydrolysis of trevally proteins[J]. Journal of Functional Foods, 2015,14: 716-725. DOI:10.1016/j.jff.2015.02.037.
[11] Xie Mengxi, Ma Yuanyuan, An Feiyu, et al. Ultrasound-assisted fermentation for antioxidant peptides preparation from okara:optimization, stability, and functional analyses[J]. Food Chemistry,2024, 439: 138078. DOI:10.1016/j.foodchem.2023.138078.
[12] 余锦欣. 紫红曲霉发酵芝麻粕产芝麻肽的工艺优化及其功能特性研究[D]. 福州: 福建师范大学, 2023. DOI:10.27019/d.cnki.gfjsu.2023.001889.
[13] Ulug S K, Jahandideh F, Wu Jianping. Novel technologies for the production of bioactive peptides[J]. Trends in Food Science &Technology, 2021, 108: 27-39. DOI:10.1016/j.tifs.2020.12.002.
[14] Dai Chunhua, Ma Haile, He Ronghai, et al. Improvement of nutritional value and bioactivity of soybean meal by solid-state fermentation with Bacillus subtilis[J]. LWT-Food Science and Technology, 2017, 86: 1-7.DOI:10.1016/j.lwt.2017.07.041.
[15] Sanjukta S, Rai A K, Muhammed A, et al. Enhancement of antioxidant properties of two soybean varieties of Sikkim Himalayan region by proteolytic Bacillus subtilis fermentation[J]. Journal of Functional Foods, 2015, 14: 650-658. DOI:10.1016/j.jff.2015.02.033.
[16] Seo S H, Cho S J. Changes in allergenic and antinutritional protein profiles of soybean meal during solid-state fermentation with Bacillus subtilis[J]. LWT-Food Science and Technology, 2016, 70: 208-212.DOI:10.1016/j.lwt.2016.02.035.
[17] 司维江, 刘建忠, 黄德利, 等. 白酒糟饲料化利用菌种的筛选及工艺优化[J]. 饲料研究, 2022, 45(8): 67-72. DOI:10.13557/j.cnki.issn1002-2813.2022.08.015.
[18] 赵品瑶, 陈巧灵, 王海浪, 等. 白酒糟资源利用及菌种发酵研究现状[J]. 现代食品, 2024, 30(4): 104-109. DOI:10.16736/j.cnki.cn41-1434/ts.2024.4.034.
[19] 郑莹, 盛新和, 张智. 一株高产蛋白酶乳酸菌筛选及其产酶条件 优化[J]. 中国酿造, 2025, 44(5): 226-232. DOI:10.11882/j.issn.0254- 5071.2025.05.033.
[20] 杨淼, 薛紫含, 杨旭冉, 等. 芝麻粕抗氧化肽的分离鉴定及其体外抗氧化活性[J/OL]. 食品工业科技, 1-21[2026-06-30]. https://doi.org/10.13386/j.issn1002-0306.2025090232.
[21] 张立娟, 姜瞻梅, 姚雪琳, 等. 双缩脲法检测大豆分离蛋白中蛋白质的研究[J]. 食品工业科技, 2008, 29(7): 241-242.
[22] Zhao Yunhao, Liu Xiangyue, Zhang Sijie, et al. Identification and free radical scavenging activity of oligopeptides from mixed-distillate fermented Baijiu grains and soy sauce residue[J]. Metabolites, 2024,14(6): 298. DOI:10.3390/metabo14060298.
[23] Lund M N, Ray C A. Control of Maillard reactions in foods: strategies and chemical mechanisms[J]. Journal of Agricultural and Food Chemistry, 2017, 65(23): 4537-4552. DOI:10.1021/acs.jafc.7b00882.
[24] 罗钧匀, 马文聪, 文艺涵, 等. 广佛手多糖对酸奶品质特性及降血糖活性的影响[J/OL]. 食品工业科技: 1-17[2026-04-22]. https://doi.org/10.13386/j.issn1002-0306.2025080242.
[25] 黄蓉, 董超, 余鸿飞, 等. 酿酒酵母表面展示技术表达酸性蛋白酶[J]. 中国食品学报, 2022, 22(2): 114-122. DOI:10.16429/j.1009-7848.2022.02.013.
[26] 任婷婷, 岳田利, 魏欣, 等. 益生菌发酵苹果浆工艺优化及发酵前后挥发性风味成分分析[J]. 食品科学, 2019, 40(8): 87-93.DOI:10.7506/spkx1002-6630-20180423-290.
[27] 邢君梅, 张重权, 王有琼, 等. 混菌固态发酵辣木粕的营养价值和功能特性[J]. 食品与生物技术学报, 2024, 43(5): 26-36. DOI:10.12441/spyswjs.20211227002.
[28] 陈林林, 张铭, 李伟, 等. 米糠源阿魏酰低聚糖的混菌发酵制备及生物活性研究[J/OL]. 食品工业科技, 1-17[2026-06-30]. https://doi.org/10.13386/j.issn1002-0306.2025070107.
[29] 方斐, 金文娣, 赵辙, 等. 基于响应面法的黄芪烘干工艺优化及其对抗氧化活性的影响[J]. 食品工业, 2025, 46(12): 11-18. DOI:10.3969/j.issn.1004-471X.2025.12.003.
[30] 伍强. 灵芝菌丝ACE抑制肽的鉴定、抑制机理及其降血压分子机制研究[D]. 长沙: 中南林业科技大学, 2020. DOI:10.27662/d.cnki.gznlc.2020.000524.