酒类酿造体系本质上是一个由多微生物协同与代谢过程不断变化的复制发酵体系。长期以来,酿酒酵母(Saccharomyces cerevisiae)因其较高的乙醇产率与良好的工业适应性,被广泛用于葡萄酒、啤酒、白酒等多种酒类的生产体系。然而,随着酒类产品向风味多样化和品质稳定化方向发展,传统依赖经验筛选的酵母选育模式已难以满足现代酿造需求。例如,在高糖或高渗发酵条件下,酵母易发生渗透胁迫,导致发酵效率下降并伴随挥发酸及高级醇异常积累,从而影响产品品质与发酵稳定性[1-3]。除酿酒酵母外,非酿酒酵母在风味构建和代谢调控方面展现出独特优势,尤其在产酯、降酸及香气前体转化过程中具有重要作用,但受限于基因组信息不完善及遗传操作体系尚不成熟,其工业应用仍受到一定限制。因此,酵母发酵性能与风味形成能力的本质与其遗传背景、代谢调控网络及环境适应机制密切相关。因此,从基因组层面解析酵母遗传特征与酿造性状之间的关联,已成为提升发酵效率、优化风味品质及实现菌株定向改良的重要研究方向。
近年来,随着基因组学和比较基因组学研究的快速发展,酿造酵母遗传基础的解析不断深入。研究表明,不同酿造体系中酵母菌株在结构变异、亚端粒区重排及代谢关键基因拷贝数变化等方面存在显著分化,这些遗传差异构成了其发酵性能与风味特征的分子基础[4]。与此同时,高质量基因组组装和泛基因组资源的不断积累,为工业酿造菌株的遗传特征解析及酿造性状挖掘提供了重要支撑。在此基础上,随着合成生物学与基因组编辑技术的发展,酵母研究也逐步从基因组解析向基因组理性设计转变。以人工合成酵母基因组计划(Sc2.0)为代表,研究者已实现对酿酒酵母染色体的系统重构。而Sc3.0则进一步推动酵母基因组研究的模块化与系统化设计。2024年中国科学院戴俊彪团队成功将酿酒酵母基因组中高度重复的rDNA区域从约150个拷贝深度精简至仅8个拷贝,细胞仍可维持正常存活,表明酵母基因组具有较高的可塑性与重构潜力[5]。相关研究不仅深化了对酵母基因组结构与功能关系的认识,也为耐高温、耐乙醇及风味定向调控等工业酿造菌株的理性改造提供了新的理论基础与技术路径。
基于上述研究进展,酵母基因组学研究已由早期的结构解析逐步拓展至功能挖掘、复杂性状关联分析与工程应用阶段。然而,当前研究仍存在一定局限性,如不同酿造体系中关键性状的遗传基础尚未完全解析,多基因协同调控机制仍缺乏系统性认识,基于基因组信息的菌株性能预测和理性设计仍面临较大挑战。因此,有必要在整合多组学数据的基础上,进一步解析酵母基因组变异与酿造性状之间的关联。本文围绕酒类酿造需求,系统综述酿酒酵母与非酿酒酵母的基因组研究进展,重点分析其遗传多样性、测序技术应用、基因型-表型关联及菌株改良策略,以期为酒类酿造菌种选育、发酵过程优化及产品品质提升提供参考。
1 酒类酿造中酵母基因组研究进展
1.1 酿酒酵母基因组
酿酒酵母是酒类酿造的核心微生物,其基因组研究奠定了现代酿造微生物的分子基础。实验室模式菌株酿酒酵母S288c作为首个完成测序的真核生物,其基因组大小约为12.1 Mbp,包含16条染色体,注释约6 400个基因[6],为酿酒酵母功能基因鉴定及调控网络分析提供了标准参考框架。然而,随着工业酿造研究的深入,逐渐发现实验室菌株在遗传组成和表型特征上与实际工业发酵菌株存在显著差异。因此,从基因组层面解析不同酒类酿造体系中工业菌株的遗传结构及驯化特征,已成为当前研究的重要方向。比较基因组学研究表明,葡萄酒、啤酒、清酒等不同酿造体系的酿酒酵母商业菌株在基因组结构和基因组成上与S288c表现出明显分化。例如,清酒酵母菌株K7与S288c在整体结构上相似,但端粒区存在明显基因增减与倒位,同时还鉴定出AWA1、BIO6等清酒生产特有的功能基因[7];葡萄酒酵母EC1118基因组中约97%序列可与S288c对齐,但仍包含多个S288c缺失的大片段,这些大片段包含30多个基因,多与糖源运输、代谢以及压力响应等密切相关[8];白酒酵母MT1基因组与S288c相比,同样表现出显著差异,其基因组中富集多碳源利用及环境胁迫响应相关基因,呈现出与高温、高乙醇及低pH值条件适应相关的遗传特征[9]。除上述典型案例外,更多代表性工业菌株的基因组特征与酿造环境适应性已通过系统比较归纳(表1)。由此可见,不同工业酿酒酵母在长期人工选择与特定发酵环境适应过程中,通过结构变异、亚端粒区重排、外源片段引入、基因扩增及功能基因重塑,形成了具有酒种特异性的基因组特征。这些遗传差异不仅反映了不同工业菌株的驯化背景和生态位适应过程,也为后续解析其发酵性能、环境耐受性及风味形成差异提供了重要基础。在基因组变异解析的基础上,基因编辑、全基因组关联分析和适应性进化等技术进一步推动了工业相关遗传位点的识别,并利用野生酵母群体遗传多样性为工业菌株改良提供新的基因 资源[10-14]。总体而言,酿酒酵母基因组研究已从单一的参考基因组构建,历经种内结构变异的大规模解析,逐步拓展至工业相关遗传特征识别与菌株定向改良阶段,为工业菌株筛选及精准育种提供了重要理论依据。
表1 不同酒类工业酿酒酵母的基因组特征及适应性差异
Table1 Genomic traits and adaptive differences of industrial S. cerevisiae strains for various alcoholic beverages
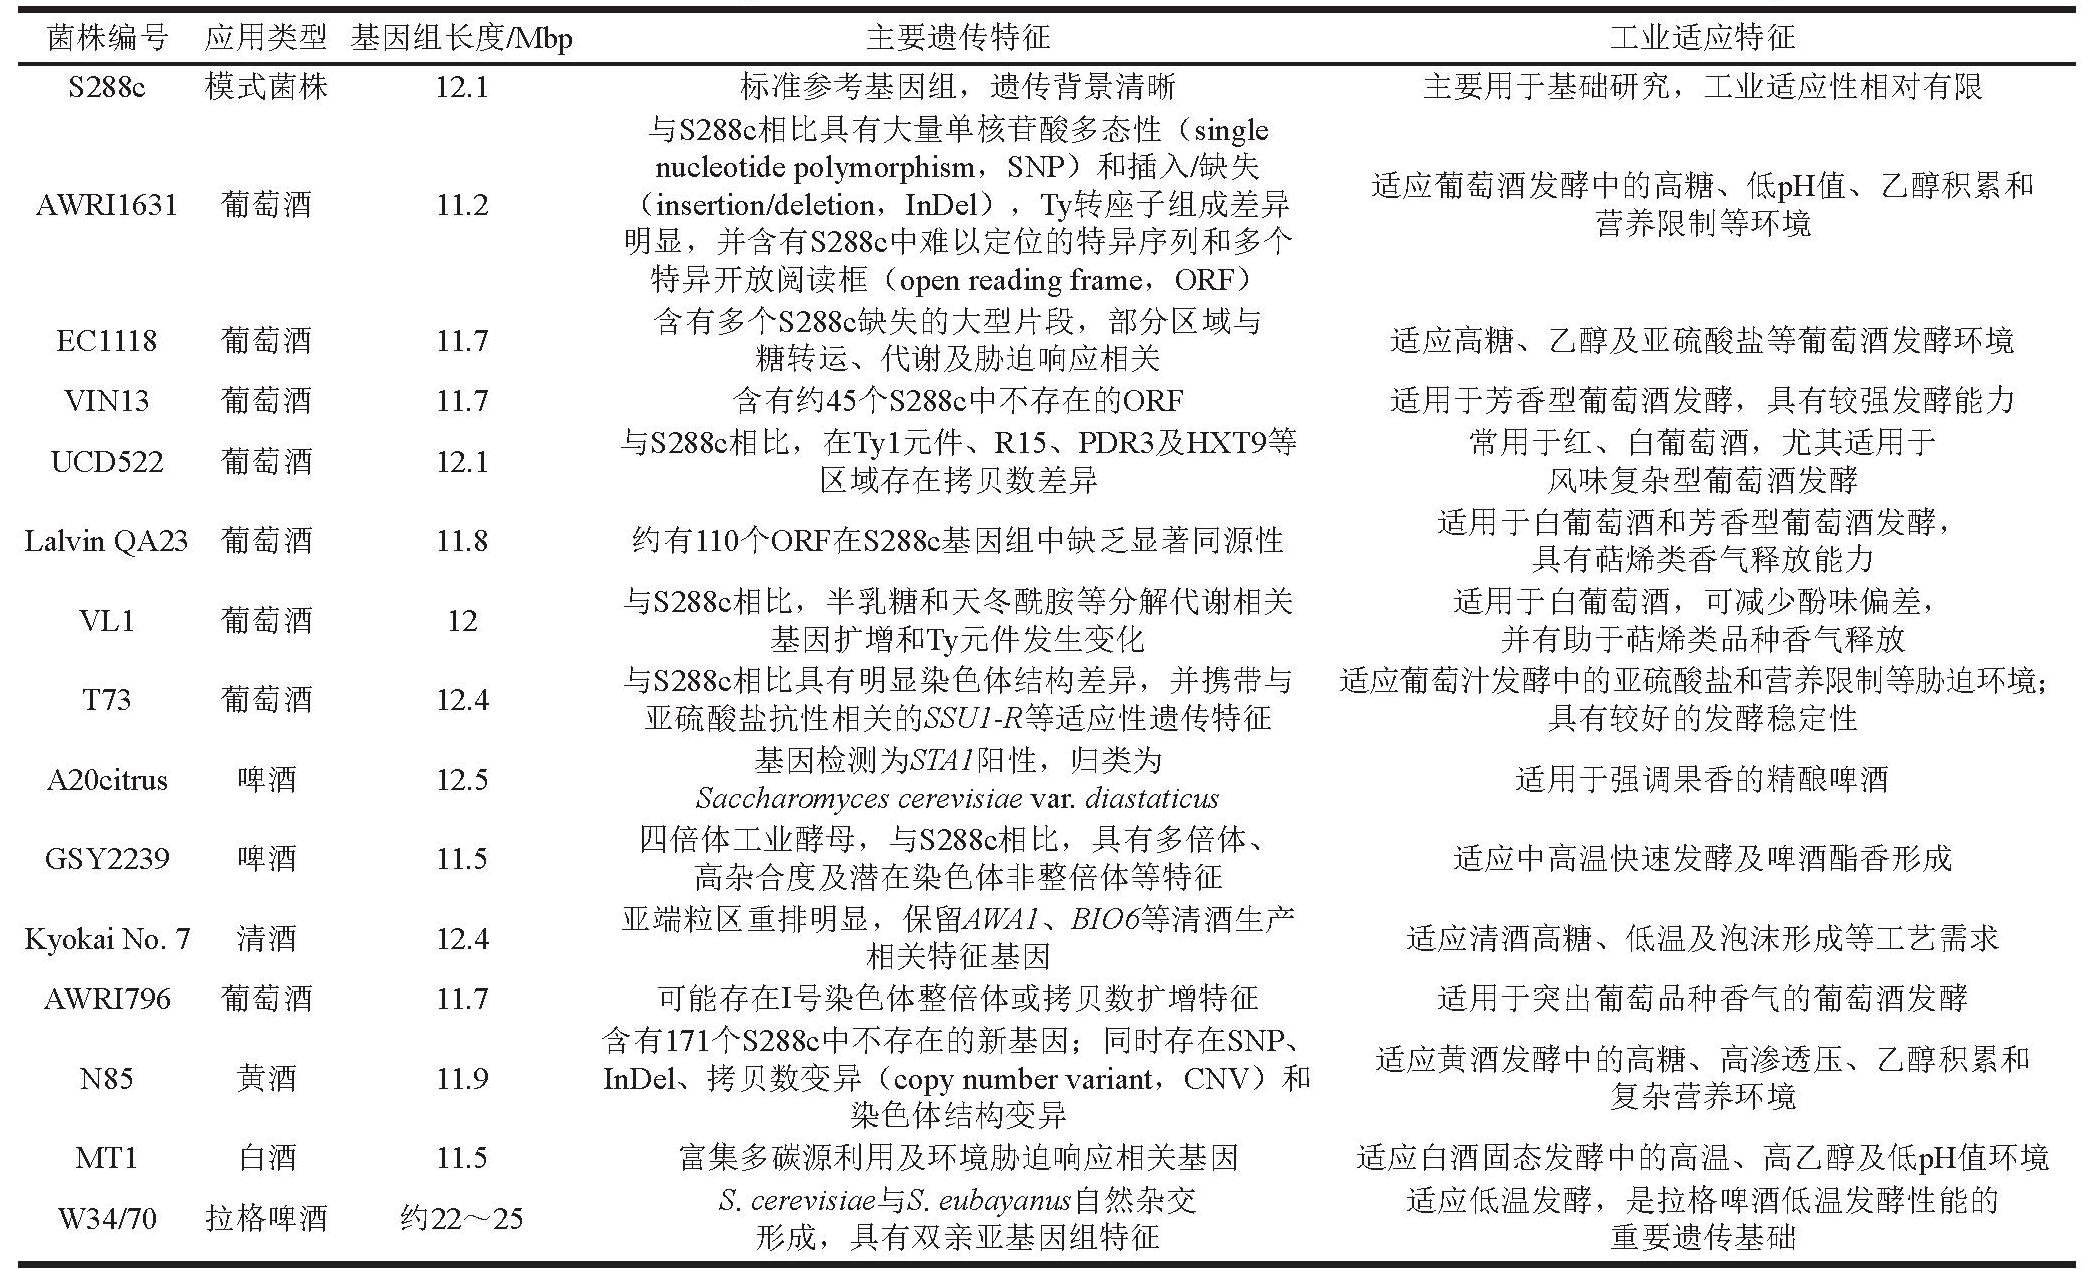
菌株编号应用类型基因组长度/Mbp主要遗传特征工业适应特征S288c模式菌株12.1标准参考基因组,遗传背景清晰主要用于基础研究,工业适应性相对有限与S288c相比具有大量单核苷酸多态性(single nucleotide polymorphism,SNP)和插入/缺失AWRI1631葡萄酒11.2(insertion/deletion,InDel),Ty转座子组成差异适应葡萄酒发酵中的高糖、低pH值、乙醇积累和明显,并含有S288c中难以定位的特异序列和多个营养限制等环境特异开放阅读框(open reading frame,ORF)EC1118葡萄酒11.7含有多个S288c缺失的大型片段,部分区域与糖转运、代谢及胁迫响应相关适应高糖、乙醇及亚硫酸盐等葡萄酒发酵环境VIN13葡萄酒11.7含有约45个S288c中不存在的ORF适用于芳香型葡萄酒发酵,具有较强发酵能力UCD522葡萄酒12.1与S288c相比,在Ty1元件、R15、PDR3及HXT9等常用于红、白葡萄酒,尤其适用于区域存在拷贝数差异风味复杂型葡萄酒发酵Lalvin QA23葡萄酒11.8约有110个ORF在S288c基因组中缺乏显著同源性适用于白葡萄酒和芳香型葡萄酒发酵,具有萜烯类香气释放能力VL1葡萄酒12与S288c相比,半乳糖和天冬酰胺等分解代谢相关适用于白葡萄酒,可减少酚味偏差,基因扩增和Ty元件发生变化并有助于萜烯类品种香气释放T73葡萄酒12.4与S288c相比具有明显染色体结构差异,并携带与适应葡萄汁发酵中的亚硫酸盐和营养限制等胁迫环境;亚硫酸盐抗性相关的SSU1-R等适应性遗传特征具有较好的发酵稳定性A20citrus啤酒12.5基因检测为STA1阳性,归类为Saccharomyces cerevisiae var. diastaticus适用于强调果香的精酿啤酒GSY2239啤酒11.5四倍体工业酵母,与S288c相比,具有多倍体、高杂合度及潜在染色体非整倍体等特征适应中高温快速发酵及啤酒酯香形成Kyokai No. 7清酒12.4亚端粒区重排明显,保留AWA1、BIO6等清酒生产相关特征基因适应清酒高糖、低温及泡沫形成等工艺需求AWRI796葡萄酒11.7可能存在I号染色体整倍体或拷贝数扩增特征适用于突出葡萄品种香气的葡萄酒发酵含有171个S288c中不存在的新基因;同时存在SNP、N85黄酒11.9InDel、拷贝数变异(copy number variant,CNV)和适应黄酒发酵中的高糖、高渗透压、乙醇积累和染色体结构变异复杂营养环境MT1白酒11.5富集多碳源利用及环境胁迫响应相关基因适应白酒固态发酵中的高温、高乙醇及低pH值环境W34/70拉格啤酒约22~25S. cerevisiae与S. eubayanus自然杂交适应低温发酵,是拉格啤酒低温发酵性能的形成,具有双亲亚基因组特征重要遗传基础
注:数据来源于NCBI Assembly数据库及相关文献整理;基因组长度为公开数据库或文献报道值,不同版本组装结果可能存在一定差异。
鉴于单一参考基因组难以全面反映工业菌株的遗传多样性,泛基因组被引入用于系统解析酿酒酵母基因组组成与变异。泛基因组通常由核心基因组和可变的附属基因组组成。近年来,随着酿酒酵母群体基因组数据的快速积累,泛基因组研究进一步提升了对酵母遗传多样性和生态适应机制的解析能力。Wang Haoyu等[15]基于1 807株高质量酿酒酵母基因组构建Sce-pan1807泛基因组。较此前版本在基因代表性和覆盖度上进一步提升,可更全面地揭示酿酒酵母群体中的核心基因、附属基因、基因得失。该研究还结合菌株特异性基因组尺度代谢模型、转录组和代谢通量分析,从基因组与系统生物学层面揭示了不同来源酿酒酵母的适应性分化,为工业酿酒酵母遗传资源挖掘、生态位适应研究及精准育种提供了重要参考。从现有研究来看,附属基因组扩展、亚端粒区高变性及结构重排是酿酒酵母适应不同酿造环境的重要遗传基础,泛基因组研究为解析工业菌株遗传多样性、生态位适应及后续酿造性状关联分析提供了新的研究框架。
进一步解析附属基因的演化来源及其对复杂酿造性状的贡献,需结合酿酒酵母的系统发育背景。酿酒酵母隶属于S. sensu stricto复合群,该复合体包括 S. paradoxus、S. mikatae、S. kudriavzevii、S. uvarum与S. eubayanus等多个近缘物种。该复合群的比较研究为理解酿酒酵母的起源、遗传分化与驯化机制提供了重要依据,也为发掘具有潜在工业价值的新型酵母资源奠定了基础。许多工业菌株往往是该复合群内不同物种自然杂交的产物。例如,拉格啤酒酵母S. pastorianus由 S. cerevisiae与S. eubayanus杂交形成,其低温发酵能力与风味特性很大程度上源于其双亲的互补基因组[16]。因此,在复合群框架下开展比较研究有助于理解基因组创新机制并发掘潜在工业菌株资源。
总体来看,酿酒酵母基因组研究在遗传多样性解析、驯化信号识别、泛基因组构建及工业相关遗传特征识别方面取得显著进展。这些研究不仅深化了对酿酒酵母进化历史与酿造适应机制的认识,也为工业菌株的分子设计、标记辅助育种与精准改良提供了重要理论支撑[17-18]。 随着泛基因组、多物种系统发育信息及合成生物学策略的融合,未来酿酒酵母研究将逐步由基因组变异解析向工业性能预测和精准育种拓展,从而更好地服务于酒类酿造及生物制造。
1.2 非酿酒酵母基因组
非酿酒酵母广泛存在于酿造原料、酒曲及发酵环境中,是酒类微生态体系的重要组成部分,包含粟酒裂殖酵母(Schizosaccharomyces pombe)、拜耳接合酵母(Zygosaccharomyces bailii)、东方伊萨酵母(Issatchenkia orientalis)及克鲁维酵母(Kluyveromyces spp.)、有孢汉逊酵母(Hanseniaspora spp.)及毕赤酵母(Pichia spp.)等多个类群。与酿酒酵母相比,非酿酒酵母在物种组成、基因组结构和代谢潜力方面表现出更高的多样性,在产酯、降酸、萜烯类香气释放、有机酸代谢及复杂发酵环境适应等方面具有独特优势,是构建酒类复杂风味的重要功能微生物。近年来,随着全基因组测序与比较基因组学技术的发展,非酿酒酵母研究逐渐由传统的物种鉴定和表型筛选转向基因组结构解析、功能基因挖掘及基因型-表型关联分析(表2)。
表2 主要非酿酒酵母的基因组特征及应用方向
Table2 Genomic profiles and application prospects of dominant non-Saccharomyces yeasts
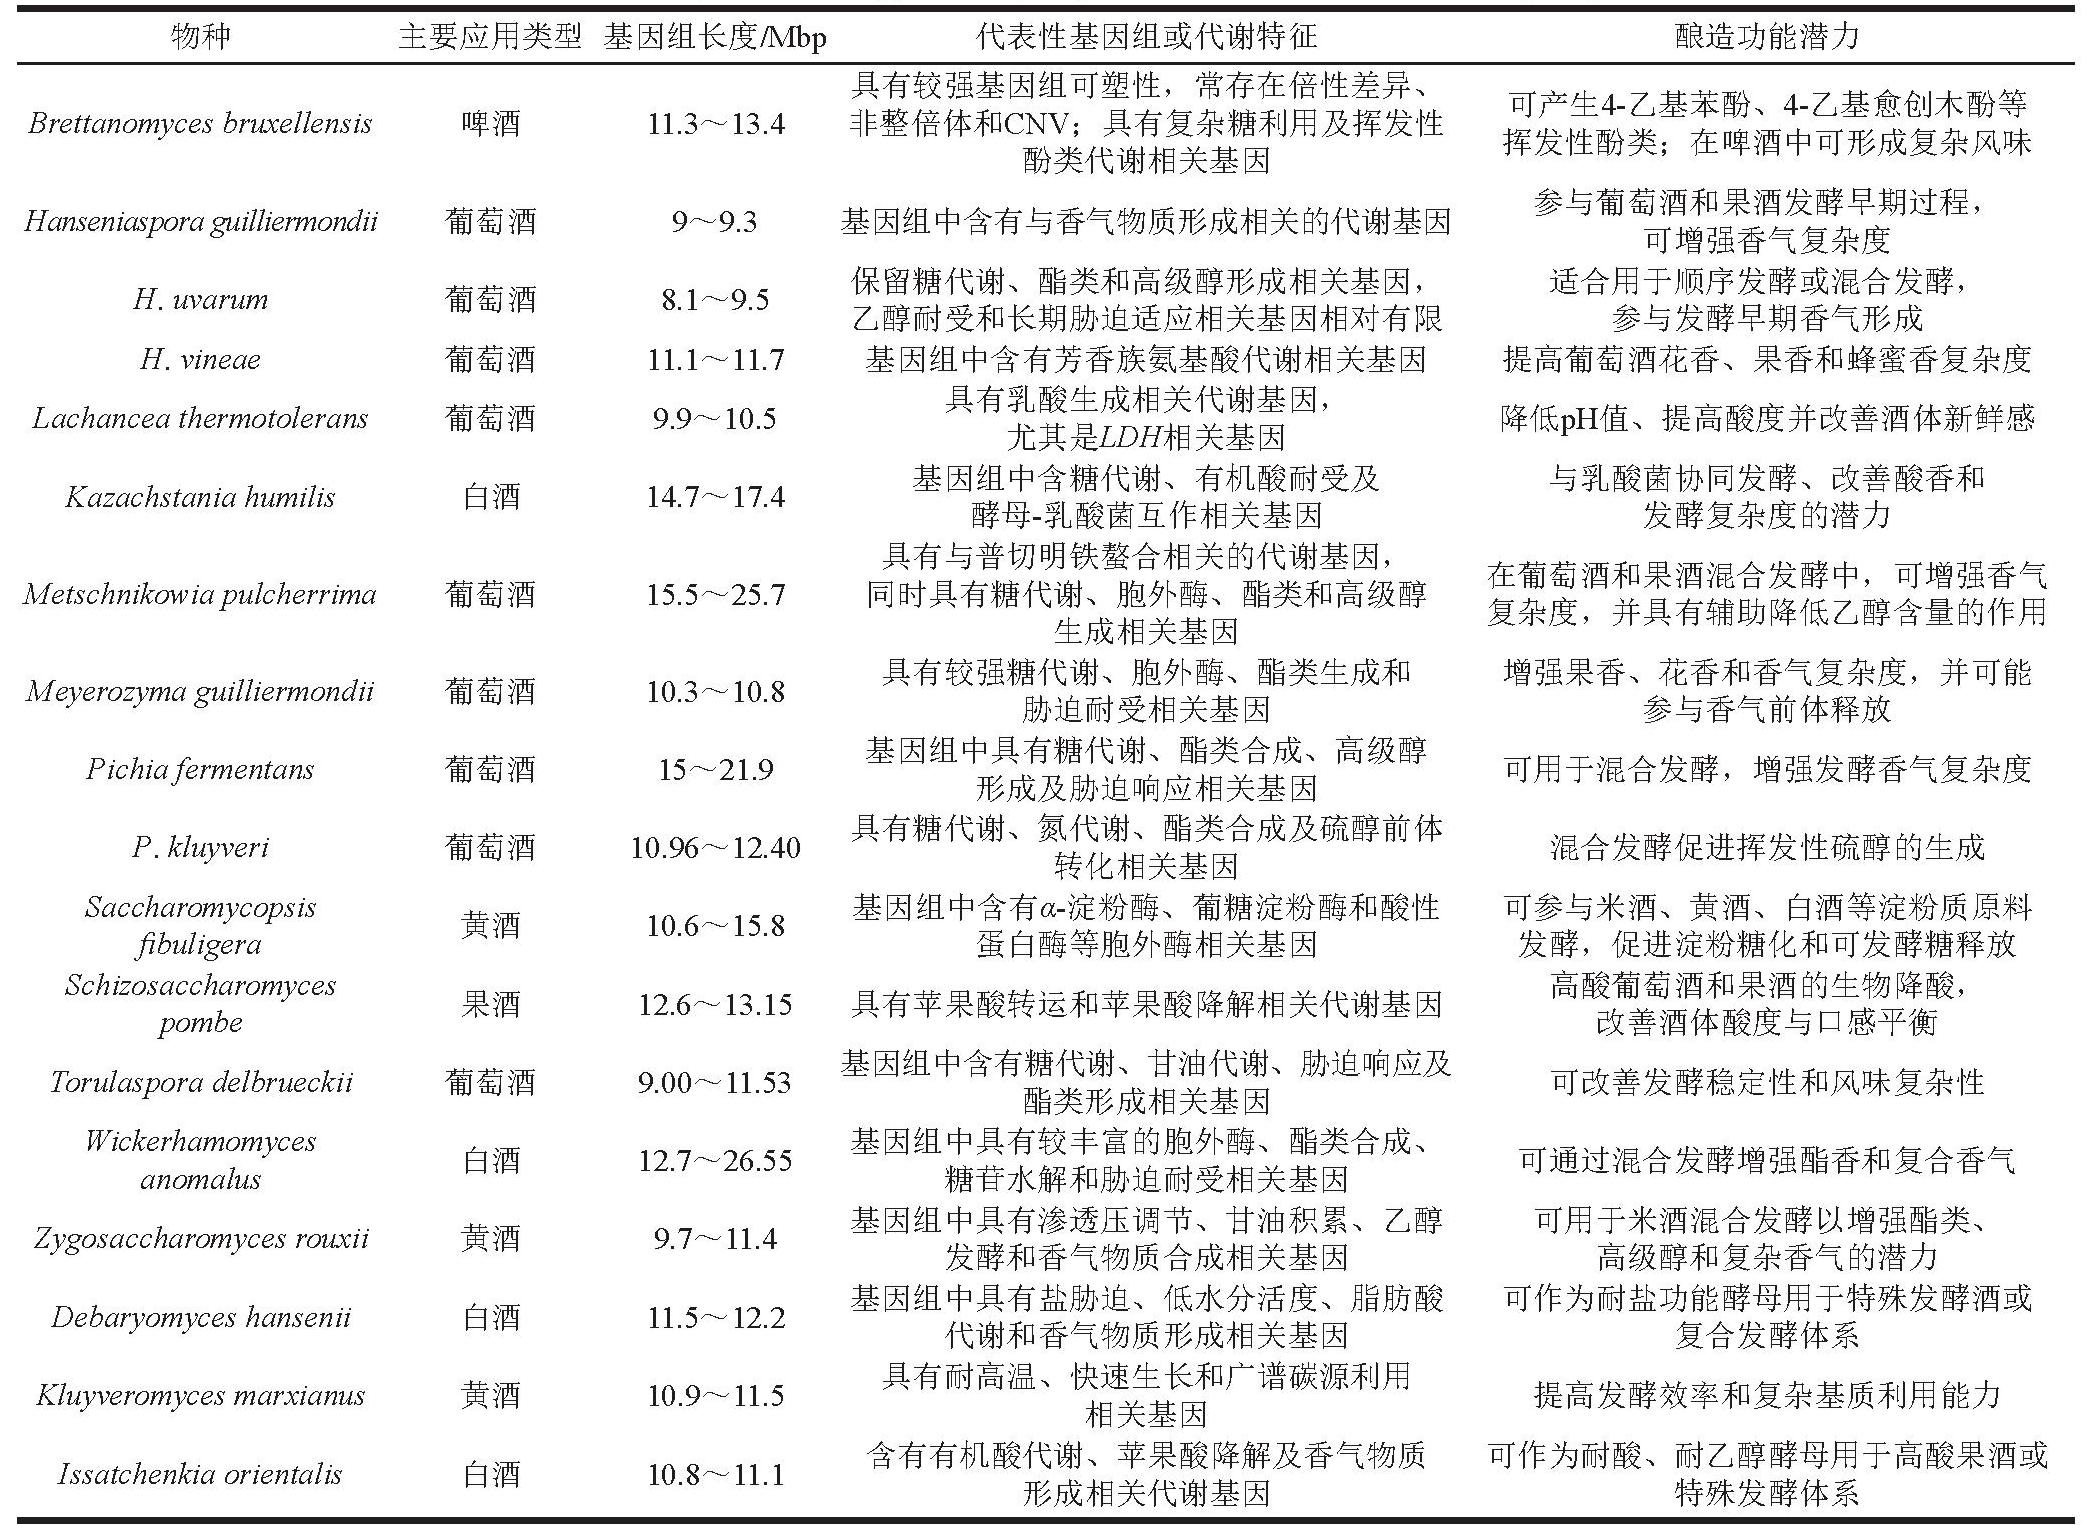
物种主要应用类型基因组长度/Mbp代表性基因组或代谢特征酿造功能潜力具有较强基因组可塑性,常存在倍性差异、Brettanomyces bruxellensis啤酒11.3~13.4非整倍体和CNV;具有复杂糖利用及挥发性可产生4-乙基苯酚、4-乙基愈创木酚等酚类代谢相关基因挥发性酚类;在啤酒中可形成复杂风味Hanseniaspora guilliermondii葡萄酒9~9.3基因组中含有与香气物质形成相关的代谢基因参与葡萄酒和果酒发酵早期过程,可增强香气复杂度H. uvarum葡萄酒8.1~9.5保留糖代谢、酯类和高级醇形成相关基因,适合用于顺序发酵或混合发酵,乙醇耐受和长期胁迫适应相关基因相对有限参与发酵早期香气形成H. vineae葡萄酒11.1~11.7基因组中含有芳香族氨基酸代谢相关基因提高葡萄酒花香、果香和蜂蜜香复杂度Lachancea thermotolerans葡萄酒9.9~10.5具有乳酸生成相关代谢基因,尤其是LDH相关基因降低pH值、提高酸度并改善酒体新鲜感Kazachstania humilis白酒14.7~17.4基因组中含糖代谢、有机酸耐受及 与乳酸菌协同发酵、改善酸香和酵母-乳酸菌互作相关基因发酵复杂度的潜力具有与普切明铁螯合相关的代谢基因,Metschnikowia pulcherrima葡萄酒15.5~25.7同时具有糖代谢、胞外酶、酯类和高级醇在葡萄酒和果酒混合发酵中,可增强香气生成相关基因复杂度,并具有辅助降低乙醇含量的作用Meyerozyma guilliermondii葡萄酒10.3~10.8具有较强糖代谢、胞外酶、酯类生成和增强果香、花香和香气复杂度,并可能胁迫耐受相关基因参与香气前体释放Pichia fermentans葡萄酒15~21.9基因组中具有糖代谢、酯类合成、高级醇形成及胁迫响应相关基因可用于混合发酵,增强发酵香气复杂度P. kluyveri葡萄酒10.96~12.40具有糖代谢、氮代谢、酯类合成及硫醇前体转化相关基因混合发酵促进挥发性硫醇的生成Saccharomycopsis fibuligera黄酒10.6~15.8基因组中含有α-淀粉酶、葡糖淀粉酶和酸性可参与米酒、黄酒、白酒等淀粉质原料蛋白酶等胞外酶相关基因发酵,促进淀粉糖化和可发酵糖释放Schizosaccharomyces pombe果酒12.6~13.15具有苹果酸转运和苹果酸降解相关代谢基因高酸葡萄酒和果酒的生物降酸,改善酒体酸度与口感平衡Torulaspora delbrueckii葡萄酒9.00~11.53基因组中含有糖代谢、甘油代谢、胁迫响应及酯类形成相关基因可改善发酵稳定性和风味复杂性Wickerhamomyces anomalus白酒12.7~26.55基因组中具有较丰富的胞外酶、酯类合成、糖苷水解和胁迫耐受相关基因可通过混合发酵增强酯香和复合香气Zygosaccharomyces rouxii黄酒9.7~11.4基因组中具有渗透压调节、甘油积累、乙醇可用于米酒混合发酵以增强酯类、发酵和香气物质合成相关基因高级醇和复杂香气的潜力Debaryomyces hansenii白酒11.5~12.2基因组中具有盐胁迫、低水分活度、脂肪酸可作为耐盐功能酵母用于特殊发酵酒或代谢和香气物质形成相关基因复合发酵体系Kluyveromyces marxianus黄酒10.9~11.5具有耐高温、快速生长和广谱碳源利用相关基因提高发酵效率和复杂基质利用能力Issatchenkia orientalis白酒10.8~11.1含有有机酸代谢、苹果酸降解及香气物质可作为耐酸、耐乙醇酵母用于高酸果酒或形成相关代谢基因特殊发酵体系
注:数据来源于NCBI Assembly数据库及相关文献整理;基因组长度为公开数据库或文献报道范围,不同菌株和组装版本间可能存在差异。
由表2可见,非酿酒酵母不同类群在基因组长度、代谢特征及酿造应用方向上存在明显差异。在风味形成方面,部分非酿酒酵母表现出显著的基因组特异性。以葡萄园有孢汉逊酵母(H. vineae)为例,该酵母因发酵过程中高产乙酸酯、赋予酒体花果香气而受到关注。其基因组中鉴定出多个与醇乙酰转移酶相关的候选基因,为其乙酸酯形成能力提供遗传基础;同时,该菌株在部分高级醇和酯类代谢相关基因组成上与酿酒酵母存在差异,提示其可能具有不同的风味代谢特征[19];类似地,H. guilliermondii基因组中鉴定出特异性醇乙酰转移酶相关基因,表明该类群在酯类风味形成方面具有一定遗传潜力[20]。这些研究表明,非酿酒酵母的功能基因组成差异是其参与酒类风味形成的重要遗传基础。除风味相关特征外,非酿酒酵母在酸度调控和环境耐受性方面同样表现出显著的基因组特异性。例如,美极梅奇酵母 (M. pulcherrima)基因组中存在普切明酸合成及铁离子代谢相关的功能基因簇,提示其在微生物竞争和生物控制中具有潜在作用[21]。此外,部分非酿酒酵母能够在高酸、高温等条件下维持稳定代谢活性,体现出其在特殊发酵环境中的应用潜力。这些结果表明,非酿酒酵母的基因组差异不仅反映其系统发育和生态来源差异,也构成其在不同酒类发酵体系中发挥差异化功能的遗传基础。
与此同时,随着基因组编辑技术的发展,非酿酒酵母的遗传改良逐步成为可能[22-23]。然而,与酿酒酵母相比,大多数非酿酒酵母仍缺乏成熟稳定的遗传操作体系,限制了其功能基因验证及代谢调控研究的深入开展。近年来,CRISPR/Cas9等基因编辑技术已在 K. marxianus等少数非酿酒酵母中实现应用[24],为后续非酿酒酵母功能基因验证和菌株改良提供了技术基础。总体而言,非酿酒酵母基因组研究已由基因组测序和结构比较逐步拓展至功能基因挖掘、遗传工具构建及工业应用潜力评估阶段。随着高质量参考基因组、群体基因组数据和遗传操作体系的不断完善,非酿酒酵母有望在混合发酵、风味优化、酸度调控和新型酒类开发中发挥更加重要的作用。
2 测序技术推动酿造酵母基因组解析
2.1 参考基因组构建与工业菌株重测序
酿酒酵母基因组研究最早受益于早期DNA测序技术。1996年,实验室模式菌株S. cerevisiae S288c完成全基因组测序,成为首个被完整解析的真核生物基因组[25], 为酵母基因注释、代谢通路解析、调控网络研究和工业菌株比较基因组学分析提供了标准参考框架。此后,S288c长期作为工业酿酒酵母遗传变异识别的重要参照。
随着第2代高通量测序技术的发展,酵母基因组研究由单一参考基因组解析逐步进入大规模群体基因组研究阶段。短读长测序具有通量高、成本低和准确性较高等优势,可用于工业酵母全基因组重测序、SNP/InDel检测和CNV初步识别,在酒类酿造酵母研究中推动了葡萄酒、啤酒、清酒和白酒酵母遗传多样性的系统解析。通过对大量工业菌株进行重测序可构建高分辨率变异图谱,比较不同酒种来源酵母在糖利用、环境适应和驯化相关区域的遗传差异;进一步结合全基因组关联分析和数量性状定位,可筛选与发酵性能、环境耐受和风味相关性状有关的候选遗传位点,为工业菌株筛选和分子标记辅助育种提供依据[11,26-27]。
对于非酿酒酵母,第2代测序也促进了Hanseniaspora、Torulaspora、Pichia等类群参考基因组和功能注释资源的积累,使其基因组结构、代谢潜力和酿造应用价值得到初步解析。然而,短读长测序在重复序列、亚端粒区、高度杂合区域、大型结构变异及杂交多倍体基因组解析方面存在局限,难以完全揭示复杂工业酵母的基因组结构特征。因此,长读长测序在酿造酵母复杂基因组解析中的作用日益突出[28]。
2.2 长读长测序促进复杂工业酵母基因组精细解析
第3代测序技术以PacBio单分子实时测序和牛津纳米孔技术(Oxford nanopore technologies,ONT)为代表,其主要优势在于能够获得长读长甚至超长读长序列。与第2代短读长测序相比,长读长测序可跨越重复序列、亚端粒区和大片段结构变异区域,从而提高基因组组装连续性和复杂区域解析能力。随着PacBio HiFi读段准确性提高及ONT测序质量不断提升,第3代测序已成为复杂工业酵母基因组解析和高质量参考基因组构建的重要技术[29]。工业酿造酵母通常具有较复杂的基因组结构。长期人工驯化和发酵环境选择可导致亚端粒区重排、外源片段引入、基因扩增、染色体非整倍体及CNV;拉格啤酒酵母等工业菌株还具有杂交或多倍体基因组背景。这些特征与工业菌株对不同发酵环境的适应密切相关,但仅依赖短读长测序难以准确解析。长读长测序可更完整地组装染色体结构,识别大型插入缺失、倒位、易位、重复序列扩增和亚端粒区变异,从而加深对工业酵母基因组可塑性和驯化机制的认识[5,30]。
在酿酒酵母研究中,长读长测序已被用于解析葡萄酒、啤酒、清酒和白酒等工业菌株的基因组结构差异,尤其有助于识别与糖转运、环境胁迫响应、细胞壁结构和风味前体代谢相关的结构变异区域。在拉格啤酒酵母S. pastorianus等杂交工业酵母中,该技术有助于区分亲本亚基因组并解析低温发酵适应相关的结构变异[30]。对于非酿酒酵母,长读长测序则有助于构建高质量参考基因组,为胞外酶、酯类形成、有机酸代谢和环境适应相关基因簇的识别提供基础[28]。
2.3 多技术联合与泛基因组解析
随着测序技术和组装算法的发展,单一测序平台已逐渐转向多技术联合应用。长读长测序可提供高连续性序列,短读长测序可用于碱基校正,高通量染色体构象捕获技术和光学图谱可辅助染色体挂载和大型结构关系解析,从而获得更高质量的染色体水平基因组组装结果,为工业酵母基因组结构解析奠定基础。高质量基因组组装进一步推动了泛基因组的发展。与单一线性参考基因组相比,泛基因组能够更全面地呈现不同菌株之间的核心基因、附属基因、基因得失和结构变异特征。长读长测序在解析复杂结构变异、亚端粒区和附属基因组方面具有优势,可为工业酵母泛基因组构建提供更完整的结构信息。近年来,大规模酿酒酵母泛基因组资源进一步扩展了对酵母遗传多样性和生态位适应机制的认识,也为工业菌株遗传资源挖掘和精准育种提供了重要依据。
总体而言,测序技术的更新使酿造酵母基因组研究从早期参考基因组构建,逐步迈入群体变异解析、复杂结构变异识别、染色体水平组装和泛基因组研究阶段。未来,长读长测序及多组学数据整合将进一步促进酵母基因组信息与酿造性状之间的关联解析,为工业菌株筛选、定向改良和发酵过程优化提供技术支撑。
3 酒类酿造中酵母基因组驱动的酿造性状解析与应用
3.1 酿酒酵母基因组驱动的酿造性状解析与应用
基因组测序及多组学技术的不断发展,使酿酒酵母的关键酿造性状得以在分子层面进行系统解析。基于比较基因组学、全基因组关联分析及转录组等方法,研究者逐步揭示了发酵效率、风味形成及环境耐受等性状的遗传调控机制,从而推动酒类酿造由经验驱动向精准调控转变。
发酵效率是衡量工业菌株性能的关键指标,其核心在于酵母对碳源的吸收与代谢能力。以啤酒酿造为例,高效利用麦芽糖与麦芽三糖直接影响发酵速率和发酵完全度。比较基因组分析表明,啤酒酵母中MAL基因簇(包括MAL11、MAL12、MAL13)常发生多拷贝扩增,并伴随启动子区调控元件增强,从而提高麦芽糖与麦芽三糖的转运与利用效率[31]。这种CNV可通过提高转运蛋白表达水平和增强糖摄取速率进一步影响糖酵解通量及乙醇生成效率。在此基础上,将基因组分析与适应性进化相结合,通过对葡萄酒酵母进行定向筛选获得具备啤酒发酵能力的新菌株,并结合全基因组测序与CNV分析发现,进化菌株中IMA1、MAL13和MAL11等与糖代谢相关基因发生扩增,从而提升了糖利用效率和发酵速率[32]。该研究表明,碳源利用相关基因的CNV是影响发酵性能的重要遗传基础,可作为菌株筛选与定向育种的分子标记。除发酵效率外,酵母对复杂发酵环境的耐受能力同样决定其工业应用稳定性。酒类发酵过程中常伴随高糖、高乙醇、高渗透压、低pH值和有机酸积累等多重胁迫,酵母需通过细胞壁重塑、膜稳态维持、质子外排等多条途径维持细胞稳态。在白酒固体发酵中,以菌株NCUF309.5-44为例,全基因组和转录组分析发现1 087个SNP、698个InDel,这些变异富集在细胞壁完整性、膜稳态维持、质子外排及糖酵解/糖异生等多条功能通路,从而增强其在乳酸胁迫条件下的适应能力[33],提示酿酒酵母对复杂发酵环境的适应并非由单一基因决定,而是受结构变异、表达调控及多基因网络协同作用的共同影响,相关基因或通路可为耐受性提升和工业菌株改良提供候选靶点。例如,发酵效率不仅与糖转运和糖酵解相关基因有关,还受到氮代谢、能量代谢和胁迫响应等通路的共同影响;风味形成也往往依赖氨基酸代谢、乙酰辅酶A供给、脂肪酸代谢及酯化反应等多个模块的协同调控。在发酵效率和环境耐受的基础上,不同酒类酿造体系还对酵母风味形成、絮凝性、泡沫稳定性及酸度调控等性状提出差异化需求。啤酒酵母中MAL、FLO和ATF等基因常与糖利用效率、絮凝特性及酯类风味形成相关;葡萄酒酵母多在亚硫酸盐耐受、酸胁迫响应及香气前体代谢方面表现出遗传特化;白酒酵母则在高温耐受、酸耐受及高级醇代谢相关基因中呈现适应性选择信号,以适应特定工艺需求。由此可见,不同酒类发酵体系对酵母关键性状的选择压力不同,导致其相关功能基因和调控网络呈现酒种特异性分化。
表3系统总结了不同酒类中酿酒酵母关键性状及关联基因,可为工业菌株筛选、分子标记辅助育种、适应性进化筛选及定向遗传改造提供候选靶点资源。综上,酿酒酵母基因组研究通过解析关键功能基因及其调控网络,为发酵效率提升、环境耐受增强及风味调控提供重要分子基础,推动酒类酿造向精准化调控与定向育种发展。
表3 不同酒类中酿酒酵母的关键酿造性状及关联核心基因概览
Table3 Summary of key brewing traits and their corresponding core genes of S. cerevisiae isolated from diverse alcoholic fermentation systems
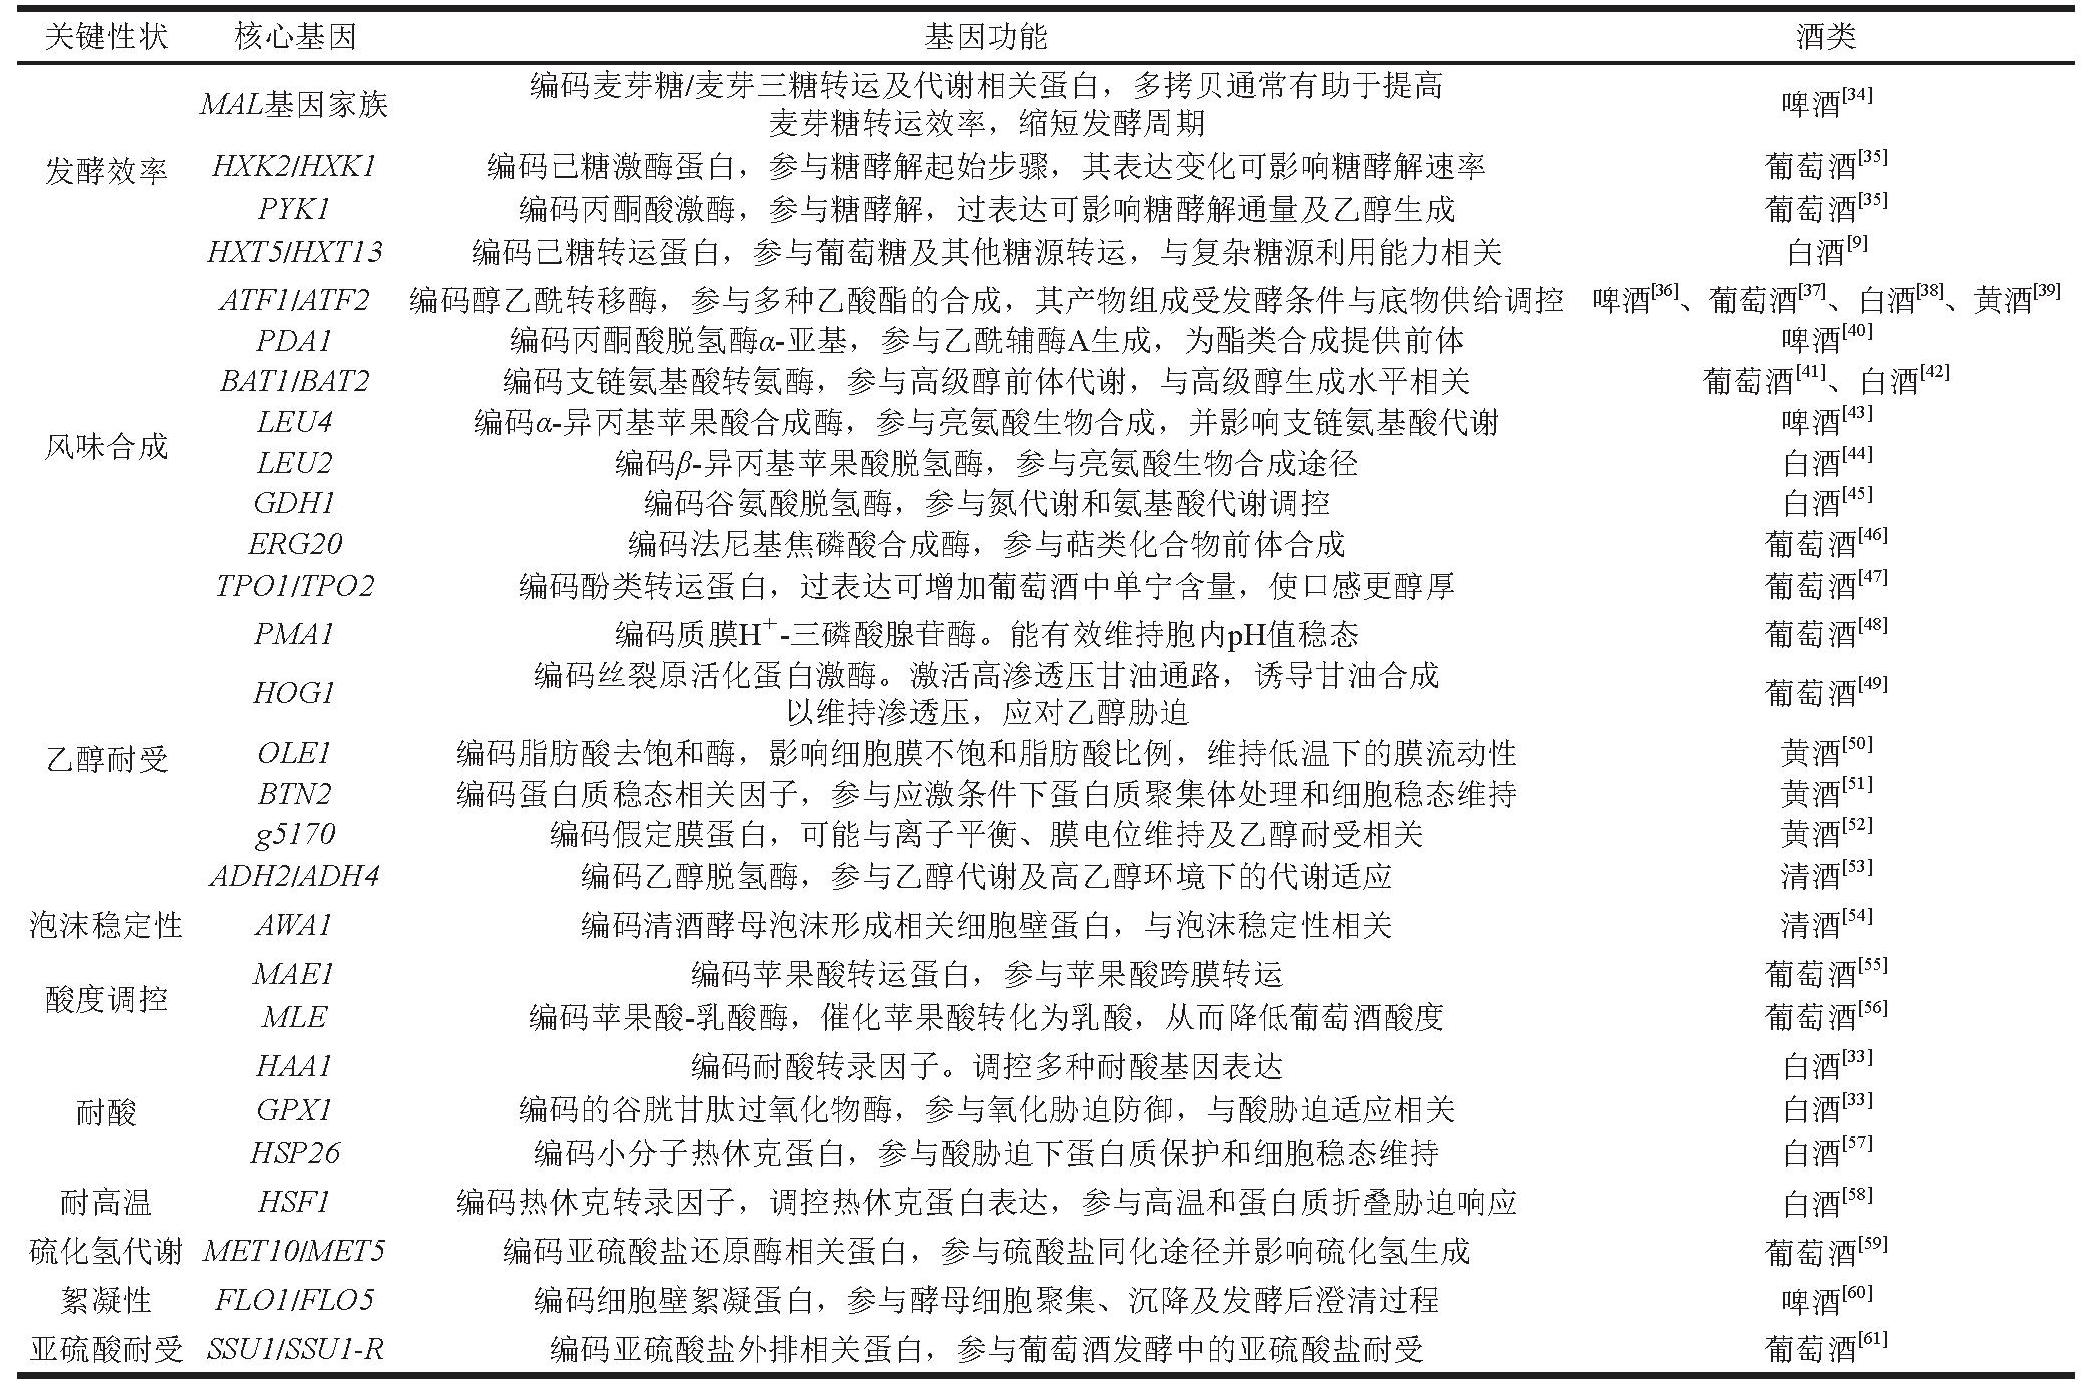
关键性状核心基因基因功能酒类MAL基因家族编码麦芽糖/麦芽三糖转运及代谢相关蛋白,多拷贝通常有助于提高麦芽糖转运效率,缩短发酵周期啤酒[34]发酵效率HXK2/HXK1编码己糖激酶蛋白,参与糖酵解起始步骤,其表达变化可影响糖酵解速率葡萄酒[35]PYK1编码丙酮酸激酶,参与糖酵解,过表达可影响糖酵解通量及乙醇生成葡萄酒[35]HXT5/HXT13编码己糖转运蛋白,参与葡萄糖及其他糖源转运,与复杂糖源利用能力相关白酒[9]ATF1/ATF2编码醇乙酰转移酶,参与多种乙酸酯的合成,其产物组成受发酵条件与底物供给调控啤酒[36]、葡萄酒[37]、白酒[38]、黄酒[39]PDA1编码丙酮酸脱氢酶α-亚基,参与乙酰辅酶A生成,为酯类合成提供前体啤酒[40]BAT1/BAT2编码支链氨基酸转氨酶,参与高级醇前体代谢,与高级醇生成水平相关葡萄酒[41]、白酒[42]LEU4编码α-异丙基苹果酸合成酶,参与亮氨酸生物合成,并影响支链氨基酸代谢啤酒[43]风味合成LEU2编码β-异丙基苹果酸脱氢酶,参与亮氨酸生物合成途径白酒[44]GDH1编码谷氨酸脱氢酶,参与氮代谢和氨基酸代谢调控白酒[45]ERG20编码法尼基焦磷酸合成酶,参与萜类化合物前体合成葡萄酒[46]TPO1/TPO2编码酚类转运蛋白,过表达可增加葡萄酒中单宁含量,使口感更醇厚葡萄酒[47]PMA1编码质膜H+-三磷酸腺苷酶。能有效维持胞内pH值稳态葡萄酒[48]HOG1编码丝裂原活化蛋白激酶。激活高渗透压甘油通路,诱导甘油合成以维持渗透压,应对乙醇胁迫葡萄酒[49]乙醇耐受OLE1编码脂肪酸去饱和酶,影响细胞膜不饱和脂肪酸比例,维持低温下的膜流动性黄酒[50]BTN2编码蛋白质稳态相关因子,参与应激条件下蛋白质聚集体处理和细胞稳态维持黄酒[51]g5170编码假定膜蛋白,可能与离子平衡、膜电位维持及乙醇耐受相关黄酒[52]ADH2/ADH4编码乙醇脱氢酶,参与乙醇代谢及高乙醇环境下的代谢适应清酒[53]泡沫稳定性AWA1编码清酒酵母泡沫形成相关细胞壁蛋白,与泡沫稳定性相关清酒[54]酸度调控MAE1编码苹果酸转运蛋白,参与苹果酸跨膜转运葡萄酒[55]MLE编码苹果酸-乳酸酶,催化苹果酸转化为乳酸,从而降低葡萄酒酸度葡萄酒[56]HAA1编码耐酸转录因子。调控多种耐酸基因表达白酒[33]耐酸GPX1编码的谷胱甘肽过氧化物酶,参与氧化胁迫防御,与酸胁迫适应相关白酒[33]HSP26编码小分子热休克蛋白,参与酸胁迫下蛋白质保护和细胞稳态维持白酒[57]耐高温HSF1编码热休克转录因子,调控热休克蛋白表达,参与高温和蛋白质折叠胁迫响应白酒[58]硫化氢代谢MET10/MET5编码亚硫酸盐还原酶相关蛋白,参与硫酸盐同化途径并影响硫化氢生成葡萄酒[59]絮凝性FLO1/FLO5编码细胞壁絮凝蛋白,参与酵母细胞聚集、沉降及发酵后澄清过程啤酒[60]亚硫酸耐受SSU1/SSU1-R编码亚硫酸盐外排相关蛋白,参与葡萄酒发酵中的亚硫酸盐耐受葡萄酒[61]
3.2 非酿酒酵母基因组驱动的功能挖掘与应用
随着非酿酒酵母基因组测序、比较基因组学及转录组分析的不断深入,其风味形成、酸度调控、环境适应及低醇发酵等功能潜力得到解析。与传统依赖表型筛选不同,基因组研究能够从功能基因分布、基因家族扩增、代谢通路完整性及胁迫响应网络等层面揭示非酿酒酵母的酿造特性,为混合发酵菌种设计和功能菌株选育提供分子依据。
风味调控与生物转化能力是非酿酒酵母在酒类酿造中的核心功能,其本质依赖于特定代谢通路及功能基因的协同作用。在葡萄酒发酵体系中,以P. kluyveri为例,全基因组测序与比较基因组分析表明,该菌株氧化还原和酯类合成相关基因家族发生扩增,这一特征与苯乙酸乙酯、乙酸异戊酯等香气物质的生成能力增强相关[62]。这些基因组差异可能通过影响酯类合成相关底物供给和酶促反应过程促进挥发性酯类积累,从而增强香气复杂性。除风味形成外,非酿酒酵母在酸度调控和复杂环境适应方面同样具有应用价值。在白酒发酵体系中,以 S. pombe为例,基因组与转录组分析表明,该菌株在乙酸同化及胁迫响应相关基因(如ACCAT1、HMGCR1)中表现出显著上调,并能够在高酸环境中维持稳定代谢活性,从而提高发酵稳定性[63]。该结果表明,非酿酒酵母对复杂发酵环境的适应并非由单一基因决定,而是受碳代谢、有机酸代谢、氧化还原平衡及胁迫响应等多基因网络的共同影响,相关基因或通路可作为提升发酵稳定性的潜在分子靶点。因此,评价非酿酒酵母的酿造潜力时,不宜仅依据单个功能基因的存在与否,而应结合关键代谢通路完整性、基因表达响应及实际发酵表型进行综合判断。不同酒类酿造体系对非酿酒酵母功能的需求同样存在差异。葡萄酒体系更关注其在酸度调节及香气释放方面的作用;白酒体系则侧重其在复杂环境适应及发酵稳定性中的贡献;而低醇酒发酵则利用其高甘油生成及低乙醇产量特性。不同功能基因的差异分布构成了非酿酒酵母在各类发酵体系中发挥差异化作用的遗传基础。表4总结了不同酒类中主要非酿酒酵母的核心性状及关联基因,可为混合发酵菌种设计、功能菌株筛选及发酵过程调控提供参考。综上,非酿酒酵母基因组研究通过揭示风味形成、酸度调控、环境适应及低醇发酵等性状的遗传基础,为混合发酵菌种设计和功能菌株选育提供了重要依据。随着多组学解析和遗传操作体系的不断完善,非酿酒酵母有望在风味优化、乙醇含量调控及新型酒类产品开发中发挥更重要作用。
表4 不同酒类中非酿酒酵母的关键酿造性状及关联核心基因概览
Table4 Summary of key brewing traits and their corresponding core genes of non-Saccharomyces yeasts isolated from diverse alcoholic fermentation systems
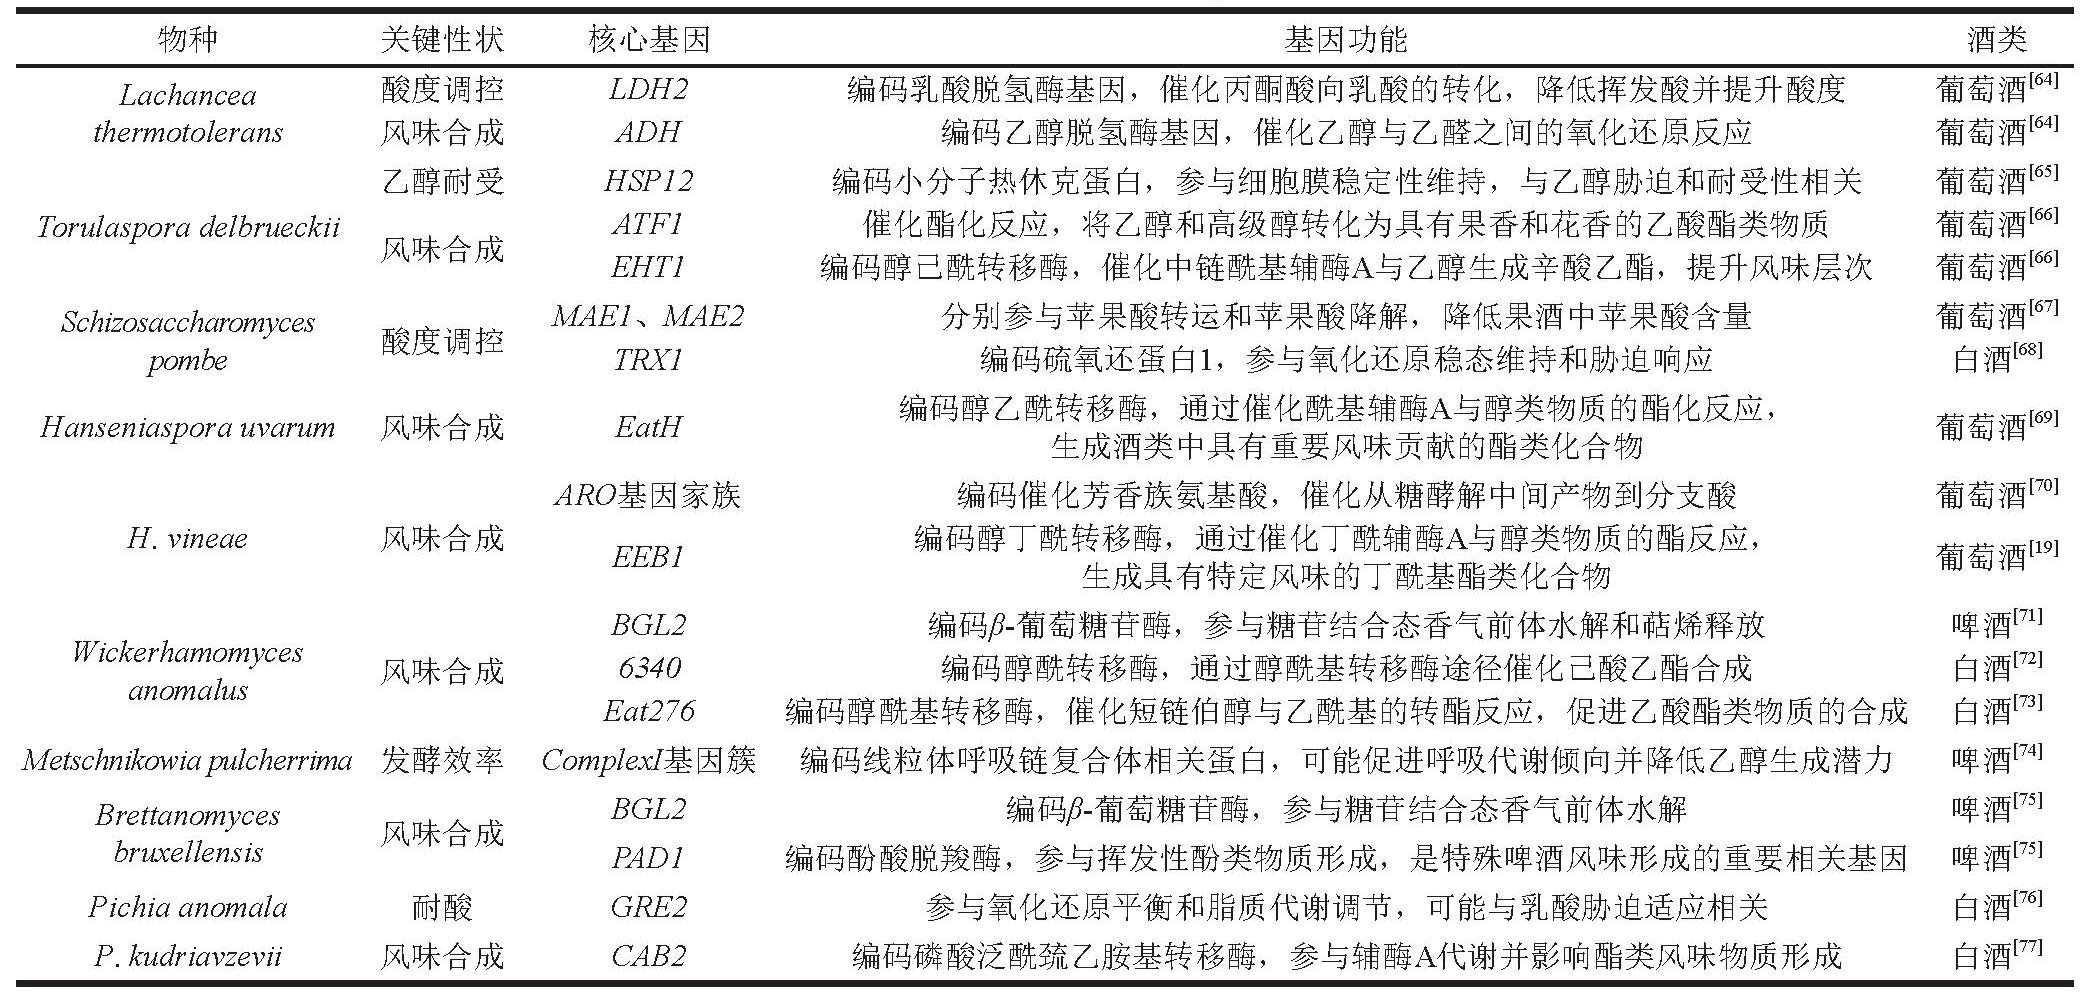
物种关键性状核心基因基因功能酒类Lachancea 酸度调控LDH2编码乳酸脱氢酶基因,催化丙酮酸向乳酸的转化,降低挥发酸并提升酸度葡萄酒[64]thermotolerans风味合成ADH编码乙醇脱氢酶基因,催化乙醇与乙醛之间的氧化还原反应葡萄酒[64]乙醇耐受HSP12编码小分子热休克蛋白,参与细胞膜稳定性维持,与乙醇胁迫和耐受性相关葡萄酒[65]Torulaspora delbrueckii风味合成ATF1催化酯化反应,将乙醇和高级醇转化为具有果香和花香的乙酸酯类物质葡萄酒[66]EHT1编码醇己酰转移酶,催化中链酰基辅酶A与乙醇生成辛酸乙酯,提升风味层次葡萄酒[66]Schizosaccharomyces pombe酸度调控MAE1、MAE2分别参与苹果酸转运和苹果酸降解,降低果酒中苹果酸含量葡萄酒[67]TRX1编码硫氧还蛋白1,参与氧化还原稳态维持和胁迫响应白酒[68]Hanseniaspora uvarum风味合成EatH编码醇乙酰转移酶,通过催化酰基辅酶A与醇类物质的酯化反应,生成酒类中具有重要风味贡献的酯类化合物葡萄酒[69]ARO基因家族编码催化芳香族氨基酸,催化从糖酵解中间产物到分支酸葡萄酒[70]H. vineae风味合成EEB1编码醇丁酰转移酶,通过催化丁酰辅酶A与醇类物质的酯反应,生成具有特定风味的丁酰基酯类化合物葡萄酒[19]BGL2编码β-葡萄糖苷酶,参与糖苷结合态香气前体水解和萜烯释放啤酒[71]Wickerhamomyces anomalus风味合成6340编码醇酰转移酶,通过醇酰基转移酶途径催化己酸乙酯合成白酒[72]Eat276编码醇酰基转移酶,催化短链伯醇与乙酰基的转酯反应,促进乙酸酯类物质的合成白酒[73]Metschnikowia pulcherrima发酵效率ComplexI基因簇编码线粒体呼吸链复合体相关蛋白,可能促进呼吸代谢倾向并降低乙醇生成潜力啤酒[74]Brettanomyces bruxellensis风味合成BGL2编码β-葡萄糖苷酶,参与糖苷结合态香气前体水解啤酒[75]PAD1编码酚酸脱羧酶,参与挥发性酚类物质形成,是特殊啤酒风味形成的重要相关基因啤酒[75]Pichia anomala耐酸GRE2参与氧化还原平衡和脂质代谢调节,可能与乳酸胁迫适应相关白酒[76]P. kudriavzevii风味合成CAB2编码磷酸泛酰巯乙胺基转移酶,参与辅酶A代谢并影响酯类风味物质形成白酒[77]
4 结 语
尽管酿酒酵母与非酿酒酵母的基因组研究已取得显著进展,但仍存在若干关键问题。首先,复杂酿造性状(如风味形成和环境耐受)通常由多基因协同调控,其遗传基础和调控网络仍不清晰,限制了基于基因组信息的性状预测与理性设计;其次,不同酿造体系中菌株的适应机制差异显著,但跨体系的比较研究仍相对不足;此外,非酿酒酵母遗传操作体系尚不完善,制约了其功能基因验证及工程改造。未来,酿酒酵母基因组研究将进一步向多组学整合与合成生物学等方向发展。通过整合基因组、转录组及代谢组等数据,可构建关键性状的多层次调控模型,从而实现对发酵过程的精准调控[78]。在此基础上,结合基因组尺度代谢模型和机器学习算法,有望建立酵母基因型-表型预测模型,为工业菌株筛选和分子标记辅助育种提供技术支撑[79];随着基因编辑技术及合成生物学的发展,酿酒酵母有望实现由经验筛选转向定向设计。通过对碳源利用、香气物质合成及胁迫响应相关基因的精准调控,可构建适应高糖、高乙醇及复杂发酵环境的高性能菌株,从而提升发酵效率并稳定产品质量。此外,长读长测序及泛基因组技术的发展将进一步完善工业菌株的遗传信息解析,为菌种改良提供更加全面的分子基础[80]。对于非酿酒酵母,未来应重点加强高质量参考基因组构建、群体基因组分析、功能注释完善及遗传操作体系开发。非酿酒酵母在产酯、降酸、香气前体转化和低醇发酵等方面具有独特优势,但其应用仍受限于功能基因验证不足和发酵稳定性不高等因素。通过多组学联合分析和基因编辑工具优化,可为功能菌株筛选和混合发酵菌种设计提供依据。
此外,酒类发酵是酵母、细菌等微生物共同参与的复杂微生态过程。未来应结合微生物组学和代谢组学方法,深入解析酿酒酵母与非酿酒酵母之间,以及酵母与乳酸菌等微生物之间的代谢互作关系,揭示其在风味形成和发酵稳定性中的协同机制。在应用层面,构建稳定可控的混合发酵体系,将有助于实现风味定向调控与产品差异化开发[81]。总体而言,酵母基因组研究正逐步由基础解析走向性状预测、菌株设计和工程应用。未来,通过高质量基因组资源建设、多组学整合、人工智能预测模型、基因编辑技术及产学研协同创新共同推动,有望加快酵母基因组研究成果在酒类酿造中的转化应用,为菌种选育、发酵过程优化、产品品质提升和酒类酿造产业高质量发展提供重要技术支撑。
[1] Chen Anqi, Qu Tianzhi, Smith J R, et al. Osmotic tolerance in Saccharomyces cerevisiae: implications for food and bioethanol industries[J]. Food Bioscience, 2024, 60: 104451. DOI:10.1016/j.fbio.2024.104451.
[2] Burphan T, Tatip S, Limcharoensuk T, et al. Enhancement of ethanol production in very high gravity fermentation by reducing fermentationinduced oxidative stress in Saccharomyces cerevisiae[J]. Scientific Reports, 2018, 8: 13069. DOI:10.1038/s41598-018-31558-4.
[3] Chen Anqi, Si Qiqi, Xu Qingyun, et al. Evaluation of stress tolerance and fermentation performance in commercial yeast strains for industrial applications[J]. Foods, 2025, 14(1): 142. DOI:10.3390/foods14010142.
[4] Steenwyk J, Rokas A. Extensive copy number variation in fermentation-related genes among Saccharomyces cerevisiae wine strains[J]. G3: Genes Genomes Genetics, 2017, 7(5): 1475-1485. DOI:10.1534/g3.117.040105.
[5] Jiang Shuangying, Cai Zelin, Wang Yun, et al. High plasticity of ribosomal DNA organization in budding yeast[J]. Cell Reports, 2024, 43(2): 113742. DOI:10.1016/j.celrep.2024.113742.
[6] Goffeau A, Barrell B G, Bussey H, et al. Life with 6 000 genes[J].Science, 1996, 274: 546-567. DOI:10.1126/science.274.5287.546.
[7] Akao T, Yashiro I, Hosoyama A, et al. Whole-genome sequencing of sake yeast Saccharomyces cerevisiae kyokai No. 7[J]. DNA Research, 2011, 18(6): 423-434. DOI:10.1093/dnares/dsr029.
[8] Novo M, Bigey F, Beyne E, et al. Eukaryote-to-eukaryote gene transfer events revealed by the genome sequence of the wine yeast Saccharomyces cerevisiae EC1118[J]. Proceedings of the National Academy of Sciences of the United States of America, 2009, 106(38): 16333-16338. DOI:10.1073/pnas.0904673106.
[9] Lu Xiaowei, Wu Qun, Zhang Yan, et al. Genomic and transcriptomic analyses of the Chinese Maotai-flavored liquor yeast MT1 revealed its unique multi-carbon co-utilization[J]. BMC Genomics, 2015, 16(1): 1064. DOI:10.1186/s12864-015-2263-0.
[10] Giannakou K, Cotterrell M, Delneri D. Genomic adaptation of Saccharomyces species to industrial environments[J]. Frontiers in Genetics, 2020, 11: 916. DOI:10.3389/fgene.2020.00916.
[11] Kessi-Pérez E I, Molinet J, Martínez C. Disentangling the genetic bases of Saccharomyces cerevisiae nitrogen consumption and adaptation to low nitrogen environments in wine fermentation[J]. Biological Research, 2020, 53(1): 2. DOI:10.1186/s40659-019-0270-3.
[12] Lola D, Kalloniati C, Tzamourani A, et al. The use of autochthonous Saccharomyces cerevisiae strains as a strategy to enhance aroma variability and typicity of Savatiano wines; RNAseq-based transcriptome comparison of indigenous strains under winemaking conditions[J]. International Journal of Food Microbiology, 2025, 440: 111249. DOI:10.1016/j.ijfoodmicro.2025.111249.
[13] Reiter T, Montpetit R, Byer S, et al. Saccharomyces cerevisiae gene expression during fermentation of pinot noir wines at an industrially relevant scale[J]. Applied and Environmental Microbiology, 2021, 87(11): e00036-21. DOI:10.1128/aem.00036-21.
[14] Scott W T, Henriques D, Smid E J, et al. Dynamic genome-scale modeling of Saccharomyces cerevisiae unravels mechanisms for ester formation during alcoholic fermentation[J]. Biotechnology and Bioengineering, 2023, 120(7): 1998-2012. DOI:10.1002/bit.28421.
[15] Wang Haoyu, Nielsen J, Zhou Yongjin, et al. Yeast adapts to diverse ecological niches driven by genomics and metabolic reprogramming[J]. Proceedings of the National Academy of Sciences of the United States of America, 2025, 122(32): e2502044122.DOI:10.1073/pnas.2502044122.
[16] Borneman A R, Pretorius I S. Genomic insights into the Saccharomyces sensu stricto complex[J]. Genetics, 2015, 199(2): 281-291. DOI:10.1534/genetics.114.173633.
[17] Gibson B, Geertman J A, Hittinger C T, et al. New yeasts: new brews: modern approaches to brewing yeast design and development[J]. FEMS Yeast Research, 2017, 17(4): fox038. DOI:10.1093/femsyr/fox038.
[18] Lengeler K B, Stovicek V, Fennessy R T, et al. Never change a brewing yeast? Why not, there are plenty to choose from[J]. Frontiers in Genetics, 2020, 11: 582789. DOI:10.3389/fgene.2020.582789.
[19] Giorello F, Valera M J, Martin V, et al. Genomic and transcriptomic basis of Hanseniaspora vineae’s impact on flavor diversity and wine quality[J]. Applied and Environmental Microbiology, 2019, 85:e01959-e01918. DOI:10.1128/aem.01959-18.
[20] Seixas I, Santos D, Vasconcelos I, et al. Insights into the transcriptional regulation of poorly characterized alcohol acetyltransferase-encoding genes (HgAATs) shed light into the production of acetate esters in the wine yeast Hanseniaspora guilliermondii[J]. FEMS Yeast Research,2023, 23: foad021. DOI:10.1093/femsyr/foad021.
[21] Gore-Lloyd D, Sumann I, Brachmann A O, et al. Snf2 controls pulcherriminic acid biosynthesis and antifungal activity of the biocontrol yeast Metschnikowia pulcherrima[J]. Molecular Microbiology, 2019, 112(1): 317-332. DOI:10.1111/mmi.14272.
[22] Löbs A K, Schwartz C, Wheeldon I. Genome and metabolic engineering in non-conventional yeasts: current advances and applications[J]. Synthetic and Systems Biotechnology, 2017, 2(3):198-207. DOI:10.1016/j.synbio.2017.08.002.
[23] Chadani T, Ohnuki S, Isogai A, et al. Genome editing to generate sake yeast strains with eight mutations that confer excellent brewing characteristics[J]. Cells, 2021, 10(6): 1299. DOI:10.3390/cells10061299.
[24] Cernak P, Estrela R, Poddar S, et al. Engineering Kluyveromyces marxianus as a robust synthetic biology platform host[J]. MBio, 2018,9(5): e01410-18. DOI:10.1128/mbio.01410-18.
[25] Johnston M. Genome sequencing: the complete code for a eukaryotic cell[J]. Current Biology, 1996, 6(5): 500-503. DOI:10.1016/S0960-9822(02)00526-2.
[26] Peter J, De Chiara M, Friedrich A, et al. Genome evolution across 1 011 Saccharomyces cerevisiae isolates[J]. Nature, 2018, 556: 339-344. DOI:10.1038/s41586-018-0030-5.
[27] Peltier E, Friedrich A, Schacherer J, et al. Quantitative trait nucleotides impacting the technological performances of industrial Saccharomyces cerevisiae strains[J]. Frontiers in Genetics, 2019, 10:683. DOI:10.3389/fgene.2019.00683.
[28] Yue Jiaxing, Li Jing, Aigrain L, et al. Contrasting evolutionary genome dynamics between domesticated and wild yeasts[J]. Nature Genetics,2017, 49(6): 913-924. DOI:10.1038/ng.3847.
[29] Weller C A, Andreev I, Chambers M J, et al. Highly complete long-read genomes reveal pangenomic variation underlying yeast phenotypic diversity[J]. Genome Research, 2023, 33(5): 729-740.DOI:10.1101/gr.277515.122.
[30] Salazar A N, Gorter De Vries A R, Van Den Broek M, et al.Chromosome level assembly and comparative genome analysis confirm lager-brewing yeasts originated from a single hybridization[J].BMC Genomics, 2019, 20(1): 916. DOI:10.1186/s12864-019-6263-3.
[31] Duval E H, Alves S L, Dunn B, et al. Microarray karyotyping of maltose-fermenting Saccharomyces yeasts with differing maltotriose utilization profiles reveals copy number variation in genes involved in maltose and maltotriose utilization[J]. Journal of Applied Microbiology, 2010, 109(1): 248-259. DOI:10.1111/j.1365-2672.2009.04656.x.
[32] Contreras Á, Villalobos-Cid M, Valdés C, et al. Obtaining new brewing yeasts using regional Chilean wine yeasts through an adaptive evolution program[J]. Frontiers in Microbiology, 2025, 16: 1599904.DOI:10.3389/fmicb.2025.1599904.
[33] Fan Haowei, Wan Yin, Cai Wenqin, et al. Deciphering the molecular adapting mechanism of lactic acid-tolerant Saccharomyces cerevisiae through genomic and transcriptomic analysis[J]. Foods, 2025, 14(12):2027. DOI:10.3390/foods14122027.
[34] Hatanaka H, Toyonaga H, Ishida Y, et al. Functional diversity and plasticity in the sugar preferences of Saccharomyces MALT transporters in domesticated yeasts[J]. FEMS Yeast Research, 2022, 22: foac055. DOI:10.1093/femsyr/foac055.
[35] Chu Qi, Sun Shuyang, Xing Xin, et al. Transcriptional analysis and key genes associated with sugar, amino acid and organic acid metabolism in Saccharomyces cerevisiae during wine-making combined with Torulaspora delbrueckii[J]. LWT-Food Science and Technology, 2024, 198: 116007. DOI:10.1016/j.lwt.2024.116007.
[36] Schneiderbanger H, Koob J, Poltinger S, et al. Gene expression in wheat beer yeast strains and the synthesis of acetate esters: gene expression wheat beer yeast strains[J]. Journal of the Institute of Brewing, 2016, 122(3): 403-411. DOI:10.1002/jib.337.
[37] Liu Peitong, Zhang Boqin, Duan Changqing, et al. Pre-fermentative supplementation of unsaturated fatty acids alters the effect of overexpressing ATF1 and EEB1 on esters biosynthesis in red wine[J]. LWT-Food Science and Technology, 2020, 120: 108925. DOI:10.1016/j.lwt.2019.108925.
[38] Pang Xiaona, Chen Chang, Huang Xiaoning, et al. Influence of indigenous lactic acid bacteria on the volatile flavor profile of lightflavor Baijiu[J]. LWT-Food Science and Technology, 2021, 147: 111540. DOI:10.1016/j.lwt.2021.111540.
[39] 刘娅, 刘双平, 刘甜甜, 等. 低产杂醇高产酯酵母菌株的选育和共酵对黄酒品质的影响及机制分析[J]. 食品科学技术学报, 2024, 42(4):31-44. DOI:10.12301/spxb202400190.
[40] García-García J C, G-García M E, Carbonero-Pacheco J, et al.Nitrogen metabolism in two flor yeast strains at mid-second bottle fermentation in sparkling wine production[J]. Applied Sciences, 2025,15(10): 5579. DOI:10.3390/app15105579.
[41] 闫统帅, 周世水, 秦泽鑫, 等. BAT2基因缺失葡萄酒酵母的构建及其对葡萄酒高级醇的影响[J]. 中国酿造, 2022, 41(9): 37-42.DOI:10.11882/j.issn.0254-5071.2022.09.007.
[42] 张翠英, 张艳英, 齐亚楠, 等. 低产高级醇酿酒酵母工程菌株在小曲酒酿造中的应用[J]. 酿酒科技, 2013(7): 62-64.
[43] Shen Xiaojuan, Chen I H, Chen W H, et al. Field-isolated brewing yeast produces wheat beer flavor without wheat ingredients[J]. LWT-Food Science and Technology, 2024, 199: 116088. DOI:10.1016/j.lwt.2024.116088.
[44] Li Wei, Chen Shijia, Wang Jianhui, et al. Genetic engineering to alter carbon flux for various higher alcohol productions by Saccharomyces cerevisiae for Chinese Baijiu fermentation[J]. Applied Microbiology and Biotechnology, 2018, 102(4): 1783-1795. DOI:10.1007/s00253-017-8715-5.
[45] Cheng Cheng, Wang Weibin, Sun Menglin, et al. Deletion of NGG1 in a recombinant Saccharomyces cerevisiae improved xylose utilization and affected transcription of genes related to amino acid metabolism[J]. Frontiers in Microbiology, 2022, 13: 960114. DOI:10.3389/fmicb.2022.960114.
[46] Camesasca L, Minteguiaga M, Fariña L, et al. Overproduction of isoprenoids by Saccharomyces cerevisiae in a synthetic grape juice medium in the absence of plant genes[J]. International Journal of Food Microbiology, 2018, 282: 42-48. DOI:10.1016/j.ijfoodmicro.2018.05.025.
[47] Brion C, Ambroset C, Sanchez I, et al. Differential adaptation to multi-stressed conditions of wine fermentation revealed by variations in yeast regulatory networks[J]. BMC Genomics, 2013, 14(1): 681. DOI:10.1186/1471-2164-14-681.
[48] Walker M E, Nguyen T D, Liccioli T, et al. Genome-wide identification of the fermentome; genes required for successful and timely completion of wine-like fermentation by Saccharomyces cerevisiae[J].BMC Genomics, 2014, 15(1): 552. DOI:10.1186/1471-2164-15-552.
[49] Jiang Jiao, Yu Hongfei, Lei Xingmeng, et al. Impact of combined wine-related stressors on Saccharomyces cerevisiae and mapping of the associated QTLs[J]. Food Innovation and Advances, 2025, 4(3):342-351. DOI:10.48130/fia-0025-0032.
[50] Yang Yijin, Xia Yongjun, Hu Wuyao, et al. Membrane fluidity of Saccharomyces cerevisiae from Huangjiu (Chinese rice wine) is variably regulated by OLE1 to offset the disruptive effect of ethanol[J].Applied and Environmental Microbiology, 2019, 85(23): e01620-19.DOI:10.1128/aem.01620-19.
[51] Fang Ruosi, Xia Ting, Wu Shuhui, et al. Btn2p influences arginine metabolism and ethanol tolerance in Saccharomyces cerevisiae during Huangjiu fermentation[J]. Food Bioscience, 2025, 65: 105958.DOI:10.1016/j.fbio.2025.105958.
[52] 王明月, 余雯雯, 张璐, 等. 黄酒酵母一个新基因的鉴定及其对酵母抗逆性能的影响[J]. 中国细胞生物学学报, 2018, 40(8): 1334-1342.DOI:10.11844/cjcb.2018.08.0063.
[53] Spiropoulos A, Tanaka J, Flerianos I, et al. Characterization of hydrogen sulfide formation in commercial and natural wine isolates of Saccharomyces[J]. American Journal of Enology and Viticulture, 2000,51(3): 233-248. DOI:10.5344/ajev.2000.51.3.233.
[54] Shimoi H, Sakamoto K, Okuda M, et al. The AWA1 gene is required for the foam-forming phenotype and cell surface hydrophobicity of sake yeast[J]. Applied and Environmental Microbiology, 2002, 68(4):2018-2025. DOI:10.1128/aem.68.4.2018-2025.2002.
[55] Peltier E, Vion C, Abou Saada O, et al. Flor yeasts rewire the central carbon metabolism during wine alcoholic fermentation[J]. Frontiers in Fungal Biology, 2021, 2: 733513. DOI:10.3389/ffunb.2021.733513.
[56] Zhang Xiuyan, Hou Xiaoyan, Liang Fang, et al. Surface display of malolactic enzyme from Oenococcus oeni on Saccharomyces cerevisiae[J]. Applied Biochemistry and Biotechnology, 2013, 169(8):2350-2361. DOI:10.1007/s12010-013-0138-x.
[57] Xie Caiyun, Su Ranran, Wu Bo, et al. Response mechanisms of different Saccharomyces cerevisiae strains to succinic acid[J]. BMC Microbiology, 2024, 24(1): 158. DOI:10.1186/s12866-024-03314-4.
[58] Han Dayong, Han Peijie, Rumbold K, et al. Adaptive gene content and allele distribution variations in the wild and domesticated populations of Saccharomyces cerevisiae[J]. Frontiers in Microbiology, 2021, 12:631250. DOI:10.3389/fmicb.2021.631250.
[59] Mulders S E V, Ghequire M, Daenen L, et al. Flocculation gene variability in industrial brewer’s yeast strains[J]. Applied Microbiology and Biotechnology, 2010, 88(6): 1321-1331. DOI:10.1007/s00253-010-2843-5.
[60] Ignacia D G L, Bennis N X, Wheeler C, et al. Functional analysis of Saccharomyces cerevisiae FLO genes through optogenetic control[J].FEMS Yeast Research, 2025, 25: foaf057. DOI:10.1093/femsyr/foaf057.
[61] Onetto C A, Kutyna D R, Kolouchova R, et al. SO2 and copper tolerance exhibit an evolutionary trade-off in Saccharomyces cerevisiae[J]. PLoS Genetics, 2023, 19(3): e1010692. DOI:10.1371/journal.pgen.1010692.
[62] Huang Lingxuan, Yang Chao, Ge Qian, et al. Integrative genomics reveals Pichia kluyveri’s potential for enhanced flavor compounds production during alcoholic fermentation[J]. Food Microbiology, 2026,136: 105007. DOI:10.1016/j.fm.2025.105007.
[63] Song Zhewei, Du Hai, Zhang Menghui, et al. Schizosaccharomyces pombe can reduce acetic acid produced by Baijiu spontaneous fermentation microbiota[J]. Microorganisms, 2019, 7(12): 606. DOI:10.3390/microorganisms7120606.
[64] Sgouros G, Mallouchos A, Filippousi M E, et al. Molecular characterization and enological potential of a high lactic acidproducing Lachancea thermotolerans vineyard strain[J]. Foods, 2020, 9(5): 595. DOI:10.3390/foods9050595.
[65] Tronchoni J, Curiel J A, Morales P, et al. Early transcriptional response to biotic stress in mixed starter fermentations involving Saccharomyces cerevisiae and Torulaspora delbrueckii[J]. International Journal of Food Microbiology, 2017, 241: 60-68. DOI:10.1016/j.ijfoodmicro.2016.10.017.
[66] Tondini F, Lang T, Chen Liang, et al. Linking gene expression and oenological traits: comparison between Torulaspora delbrueckii and Saccharomyces cerevisiae strains[J]. International Journal of Food Microbiology, 2019, 294: 42-49. DOI:10.1016/j.ijfoodmicro.2019.01.014.
[67] Benito Á, Jeffares D, Palomero F, et al. Selected Schizosaccharomyces pombe strains have characteristics that are beneficial for winemaking[J]. PLoS ONE, 2016, 11(3): e0151102. DOI:10.1371/journal.pone.0151102.
[68] 戎梓溢. 粟酒裂殖酵母耐酸基因的挖掘及高耐酸菌株的构建[D].天津: 天津科技大学, 2022. DOI:10.27359/d.cnki.gtqgu.2022.001003.
[69] Ni Bingqian, Fu Zhilei, Zhao Jingrong, et al. Characterization and mechanism study of a novel ethanol acetyltransferase from Hanseniaspora uvarum (EatH) with good thermostability, pH stability,and broad alcohol substrate specificity[J]. Journal of Agricultural and Food Chemistry, 2025, 73(11): 6828-6841. DOI:10.1021/acs.jafc.4c12376.
[70] Benito Á, Calderón F, Benito S. The influence of non-Saccharomyces species on wine fermentation quality parameters[J]. Fermentation,2019, 5(3): 54. DOI:10.3390/fermentation5030054.
[71] 王金晶, 高欣彤, 李崎, 等. 一株能增加酒类酿造香气的异常威克汉姆酵母菌株: CN202311748977.7[P]. 2024-04-02.
[72] Shi Xin, Wang Xin, Hou Xiaoge, et al. Gene mining and flavour metabolism analyses of Wickerhamomyces anomalus Y-1 isolated from a Chinese liquor fermentation starter[J]. Frontiers in Microbiology,2022, 13: 891387. DOI:10.3389/fmicb.2022.891387.
[73] 李秀婷, 富志磊, 倪冰倩, 等. 一种异常威克汉姆酵母醇酰基转移酶Eat276及其编码基因在水相体系中合成乙酸酯的应用:CN202210637600.3[P]. 2024-06-18.
[74] Pettersen J P, Castillo S, Jouhten P, et al. Genome-scale metabolic models reveal determinants of phenotypic differences in non-Saccharomyces yeasts[J]. BMC Bioinformatics, 2023, 24(1): 438.DOI:10.1186/s12859-023-05506-7.
[75] Colomer M S, Chailyan A, Fennessy R T, et al. Assessing population diversity of Brettanomyces yeast species and identification of strains for brewing applications[J]. Frontiers in Microbiology, 2020, 11: 637.DOI:10.3389/fmicb.2020.00637.
[76] 洪丽霞. 异常毕赤酵母的乳酸胁迫生长代谢影响机制及其在白酒酿造中的应用研究[D]. 南昌: 南昌大学, 2022. DOI:10.27232/d.cnki.gnchu.2022.004731.
[77] 李惠源. 库德毕赤酵母FJZ基因组学及应用研究[D]. 晋中: 山西农业大学, 2021. DOI:10.7666/D03225909.
[78] Minebois R, Lairón-Peris M, Barrio E, et al. Metabolic differences between a wild and a wine strain of Saccharomyces cerevisiae during fermentation unveiled by multi-omic analysis[J]. Environmental Microbiology, 2021, 23(6): 3059-3076. DOI:10.1111/1462-2920.15523.
[79] Du Yuanhang, Wang Minyu, Yang Linhui, et al. Optimization and scaleup of fermentation processes driven by models[J]. Bioengineering,2022, 9(9): 473. DOI:10.3390/bioengineering9090473.
[80] Li Linbo, Yuan Chenyang, Zhang Lei, et al. The impact of simultaneous inoculation with Torulaspora delbrueckii and Hanseniaspora uvarum combined with Saccharomyces cerevisiae on chemical and sensory quality of Sauvignon Blanc wines[J]. Frontiers in Microbiology, 2024,15: 1413650. DOI:10.3389/fmicb.2024.1413650.
[81] Binati R L, Salvetti E, Bzducha-Wróbel A, et al. Non-conventional yeasts for food and additives production in a circular economy perspective[J]. FEMS Yeast Research, 2021, 21(7): foab052.DOI:10.1093/femsyr/foab052.